Chaînes causales
58 récits cause à effet — le fil argumentatif du corpus. Recherchez une chaîne ou choisissez une strate : son argument s'affiche ici, dans cette page.
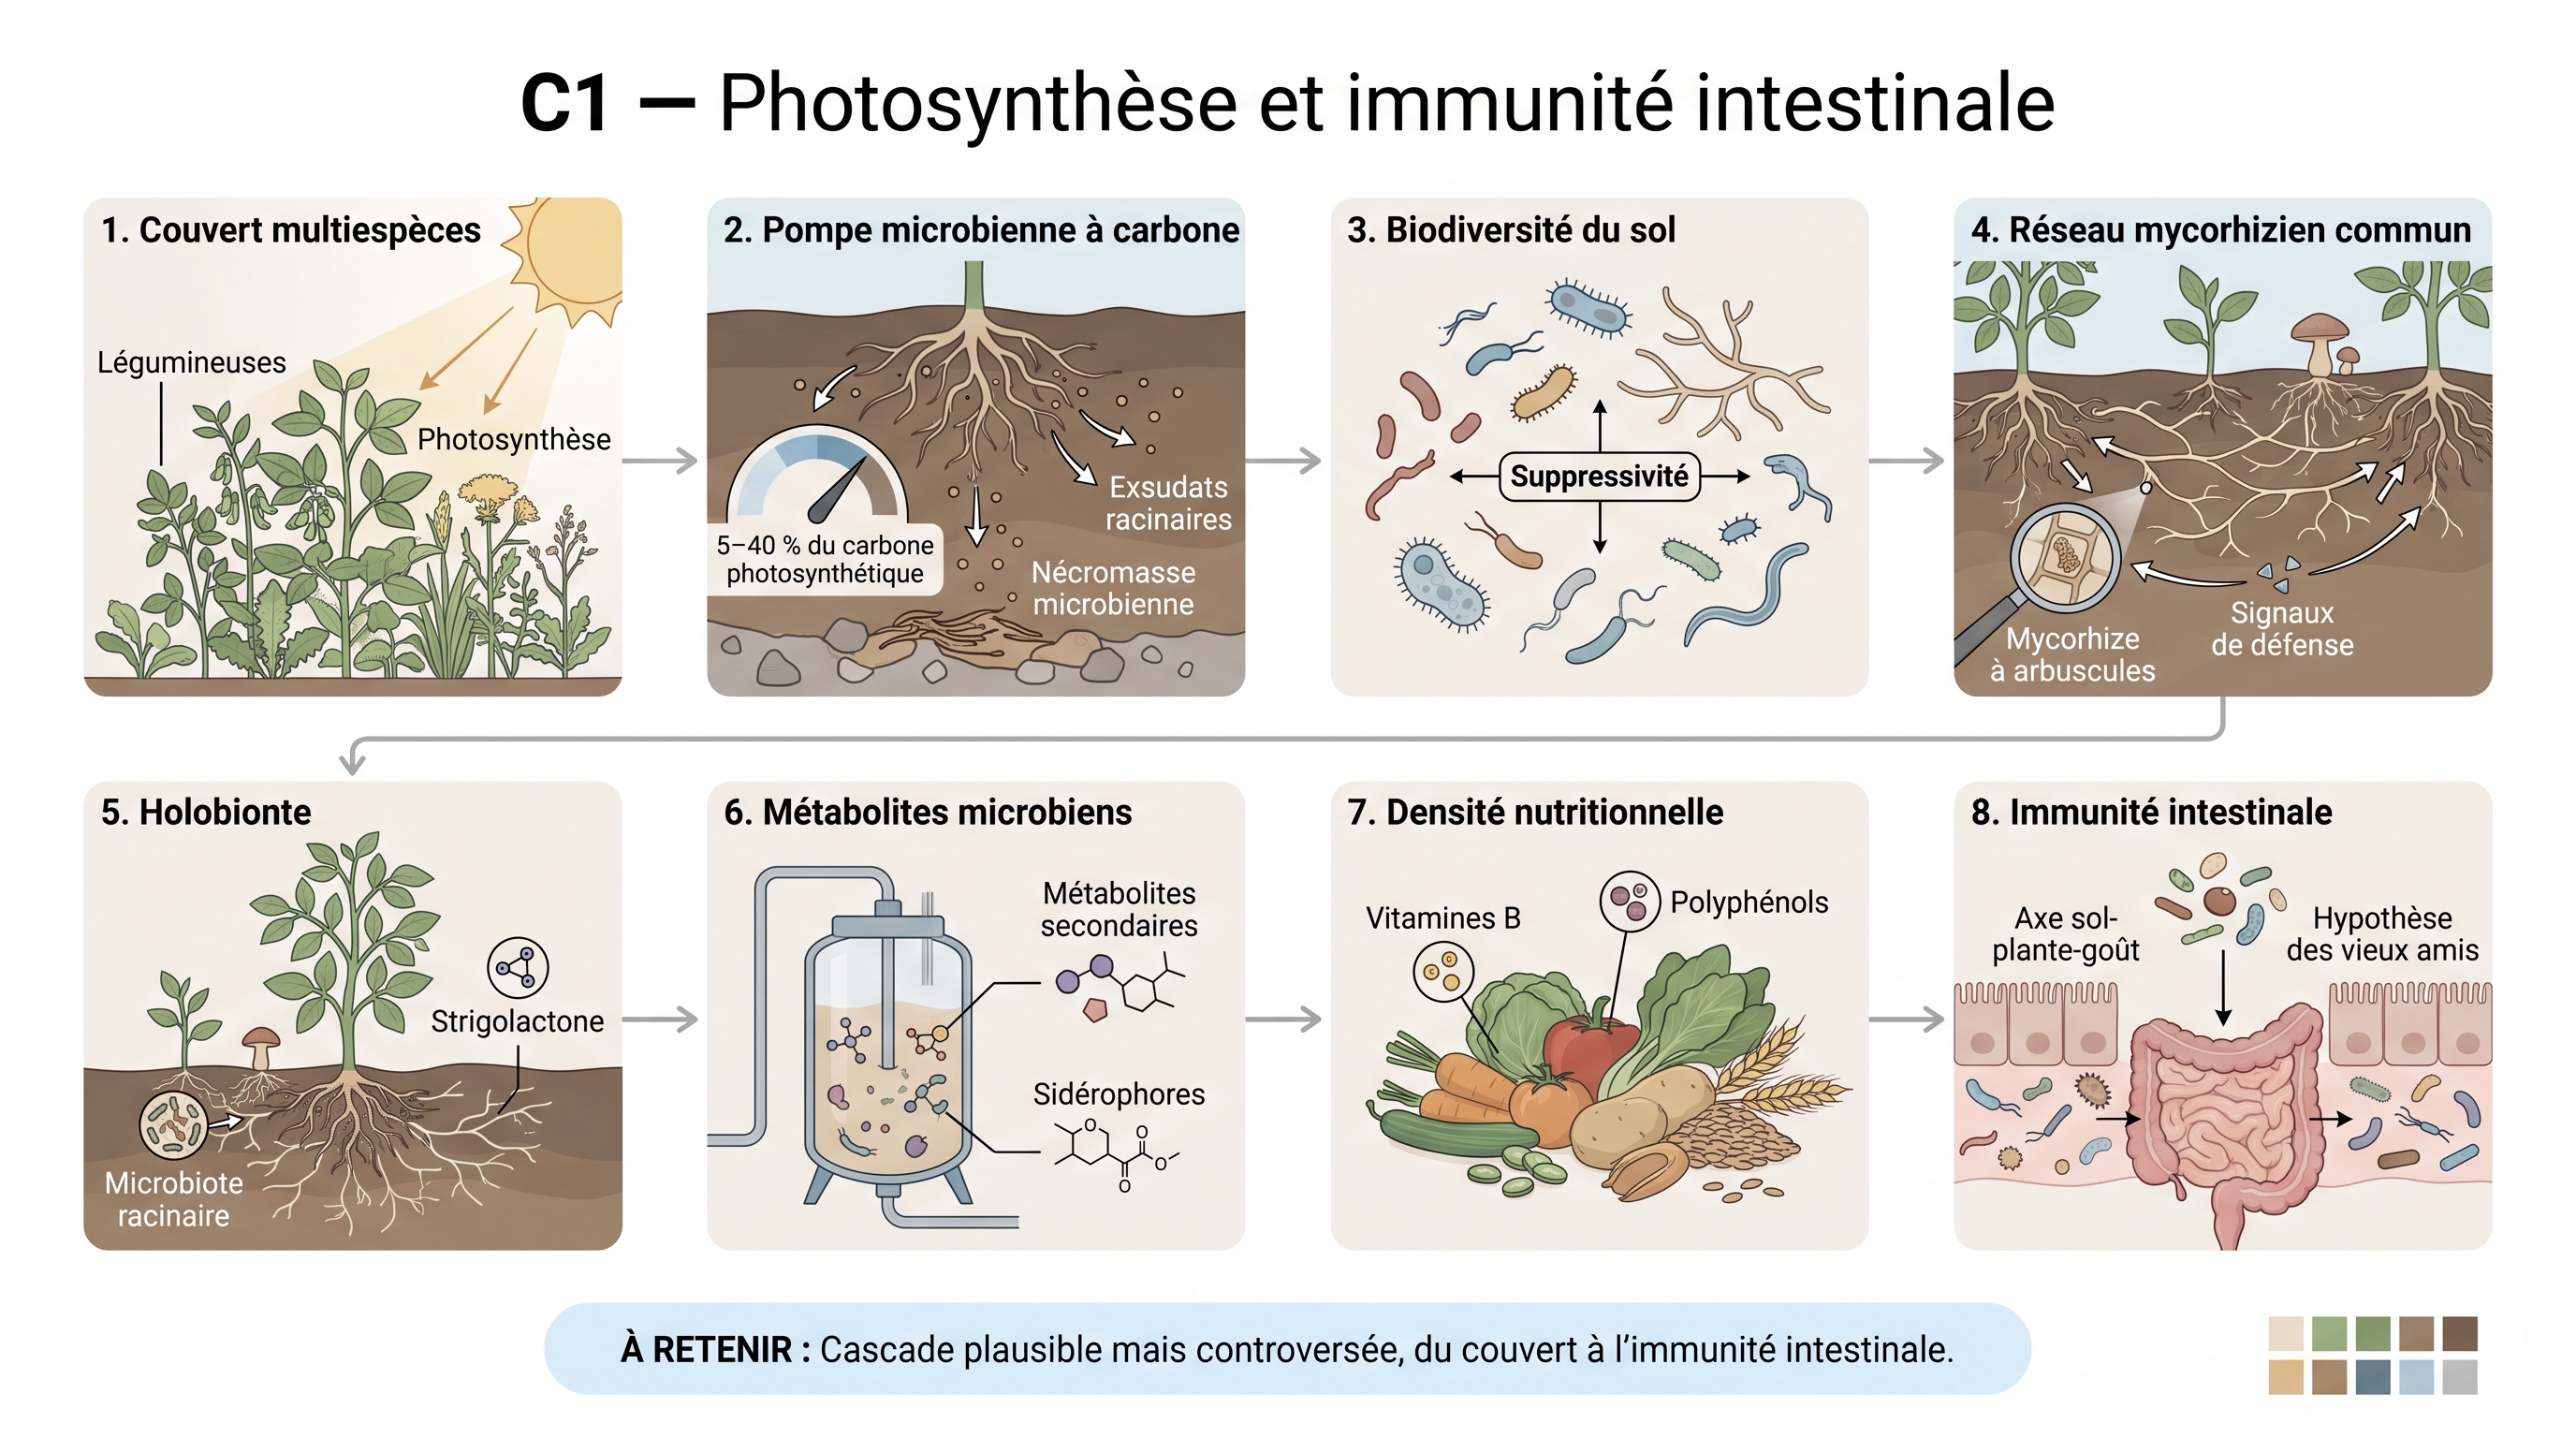
C1 : Photosynthèse du couvert → Immunité intestinale humaine
Argument
Un choix de couvert agricole peut se répercuter, maillon biologique après maillon, jusqu'à l'immunité de nos intestins. Un couvert mêlant plusieurs familles fait tourner la photosynthèse et injecte du carbone ; les racines l'exsudent en sucres qui nourrissent la « pompe microbienne », qui transforme ce carbone en matière organique stable et en vie microbienne. Cette diversité rend le sol résistant aux maladies, où les mycorhizes, champignons alliés des racines, relient les plantes et font circuler eau, nutriments et signaux. Plante et microbes forment un « holobionte », bioréacteur qui fabrique vitamines et composés protecteurs. L'aliment, plus dense nutritionnellement, livrerait ces « vieux amis » à notre microbiote, entraînant nos défenses. Cascade plausible mais controversée.
Illustration : Fig. C1-A · Chaîne causale C1…
Science
- couvert multiespèces (P2) : Point de départ : le couvert multi-espèces (légumineuses + graminées + crucifères) maximise l'aire foliaire et fait tourner à plein régime la photosynthèse, seul processus qui injecte du carbone atmosphérique dans le système sol.
→ fiche #69 · fiche #215 (pivot) - pompe microbienne à carbone (S4) : Le carbone fixé par le couvert est transféré aux racines puis aux exsudats (5-40% du C photosynthétique) : la pompe microbienne à carbone transforme ce flux labile en nécromasse et MAOM, et nourrit simultanément la biomasse microbienne active.
→ fiche #4 (cadre) · fiche #63 · fiche #65 - biodiversité du sol (S2) : La pompe alimentée par des exsudats chimiquement variés sature des niches écologiques multiples et fait émerger une forte diversité microbienne (Chao1, Shannon élevés), support de la redondance fonctionnelle et de la suppressivité générale.
→ fiche #21 (cadre) · fiche #24 (cadre) · fiche #26 · fiche #63 +6 - Réseau Mycorhizien (S3) : Au sein de cette diversité, les champignons mycorhiziens à arbuscules tissent un réseau inter-racinaire (common mycorrhizal network) qui relie les plantes du couvert, distribue N, P, eau et signaux (le transfert de carbone entre plantes reste débattu), et transporte les signaux de défense — infrastructure intégratrice du microbiome du sol.
→ fiche #15 · fiche #66 - Holobionte (V2) : Plante + rhizomicrobiome + CMN cessent d'être des entités séparables : ils forment un holobionte, unité d'évolution et de physiologie, où la plante pilote activement le recrutement (LCO, strigolactones, flavonoïdes) et capitalise les services de son microbiome associé.
→ fiche #1 · fiche #21 (cadre) · fiche #79 (cadre) - Métabolites secondaires microbiens (V3) : L'holobionte fonctionne comme un bioréacteur : les micro-organismes de la rhizosphère et des fermentations produisent antibiotiques naturels, sidérophores, vitamines B, acides organiques et précurseurs de polyphénols — métabolites bioactifs qui seront transférés à la plante et à son consommateur.
→ fiche #299 · fiche #308 - densité nutritionnelle (H1) : Les métabolites secondaires microbiens et les micronutriments mobilisés par l'holobionte se concentrent dans l'aliment : la densité nutritionnelle (polyphénols, vitamines B, Fe, Zn, Se) devient le marqueur agronomique mesurable d'un sol vivant dans l'assiette.
→ fiche #64 · fiche #80 · fiche #83 (pivot) - axe sol-plante-goût (H2) : Par l'axe sol-plante-goût, l'aliment dense transfère polyphénols, métabolites anti-inflammatoires et micro-organismes vivants au microbiote intestinal : ces 'vieux amis' entraînent l'immunité intestinale, restaurent la suppressivité symbiotique et réduisent le besoin d'antibiotiques — bouclant la chaîne photosynthèse → immunité humaine.
→ fiche #13 · fiche #40 (pivot)
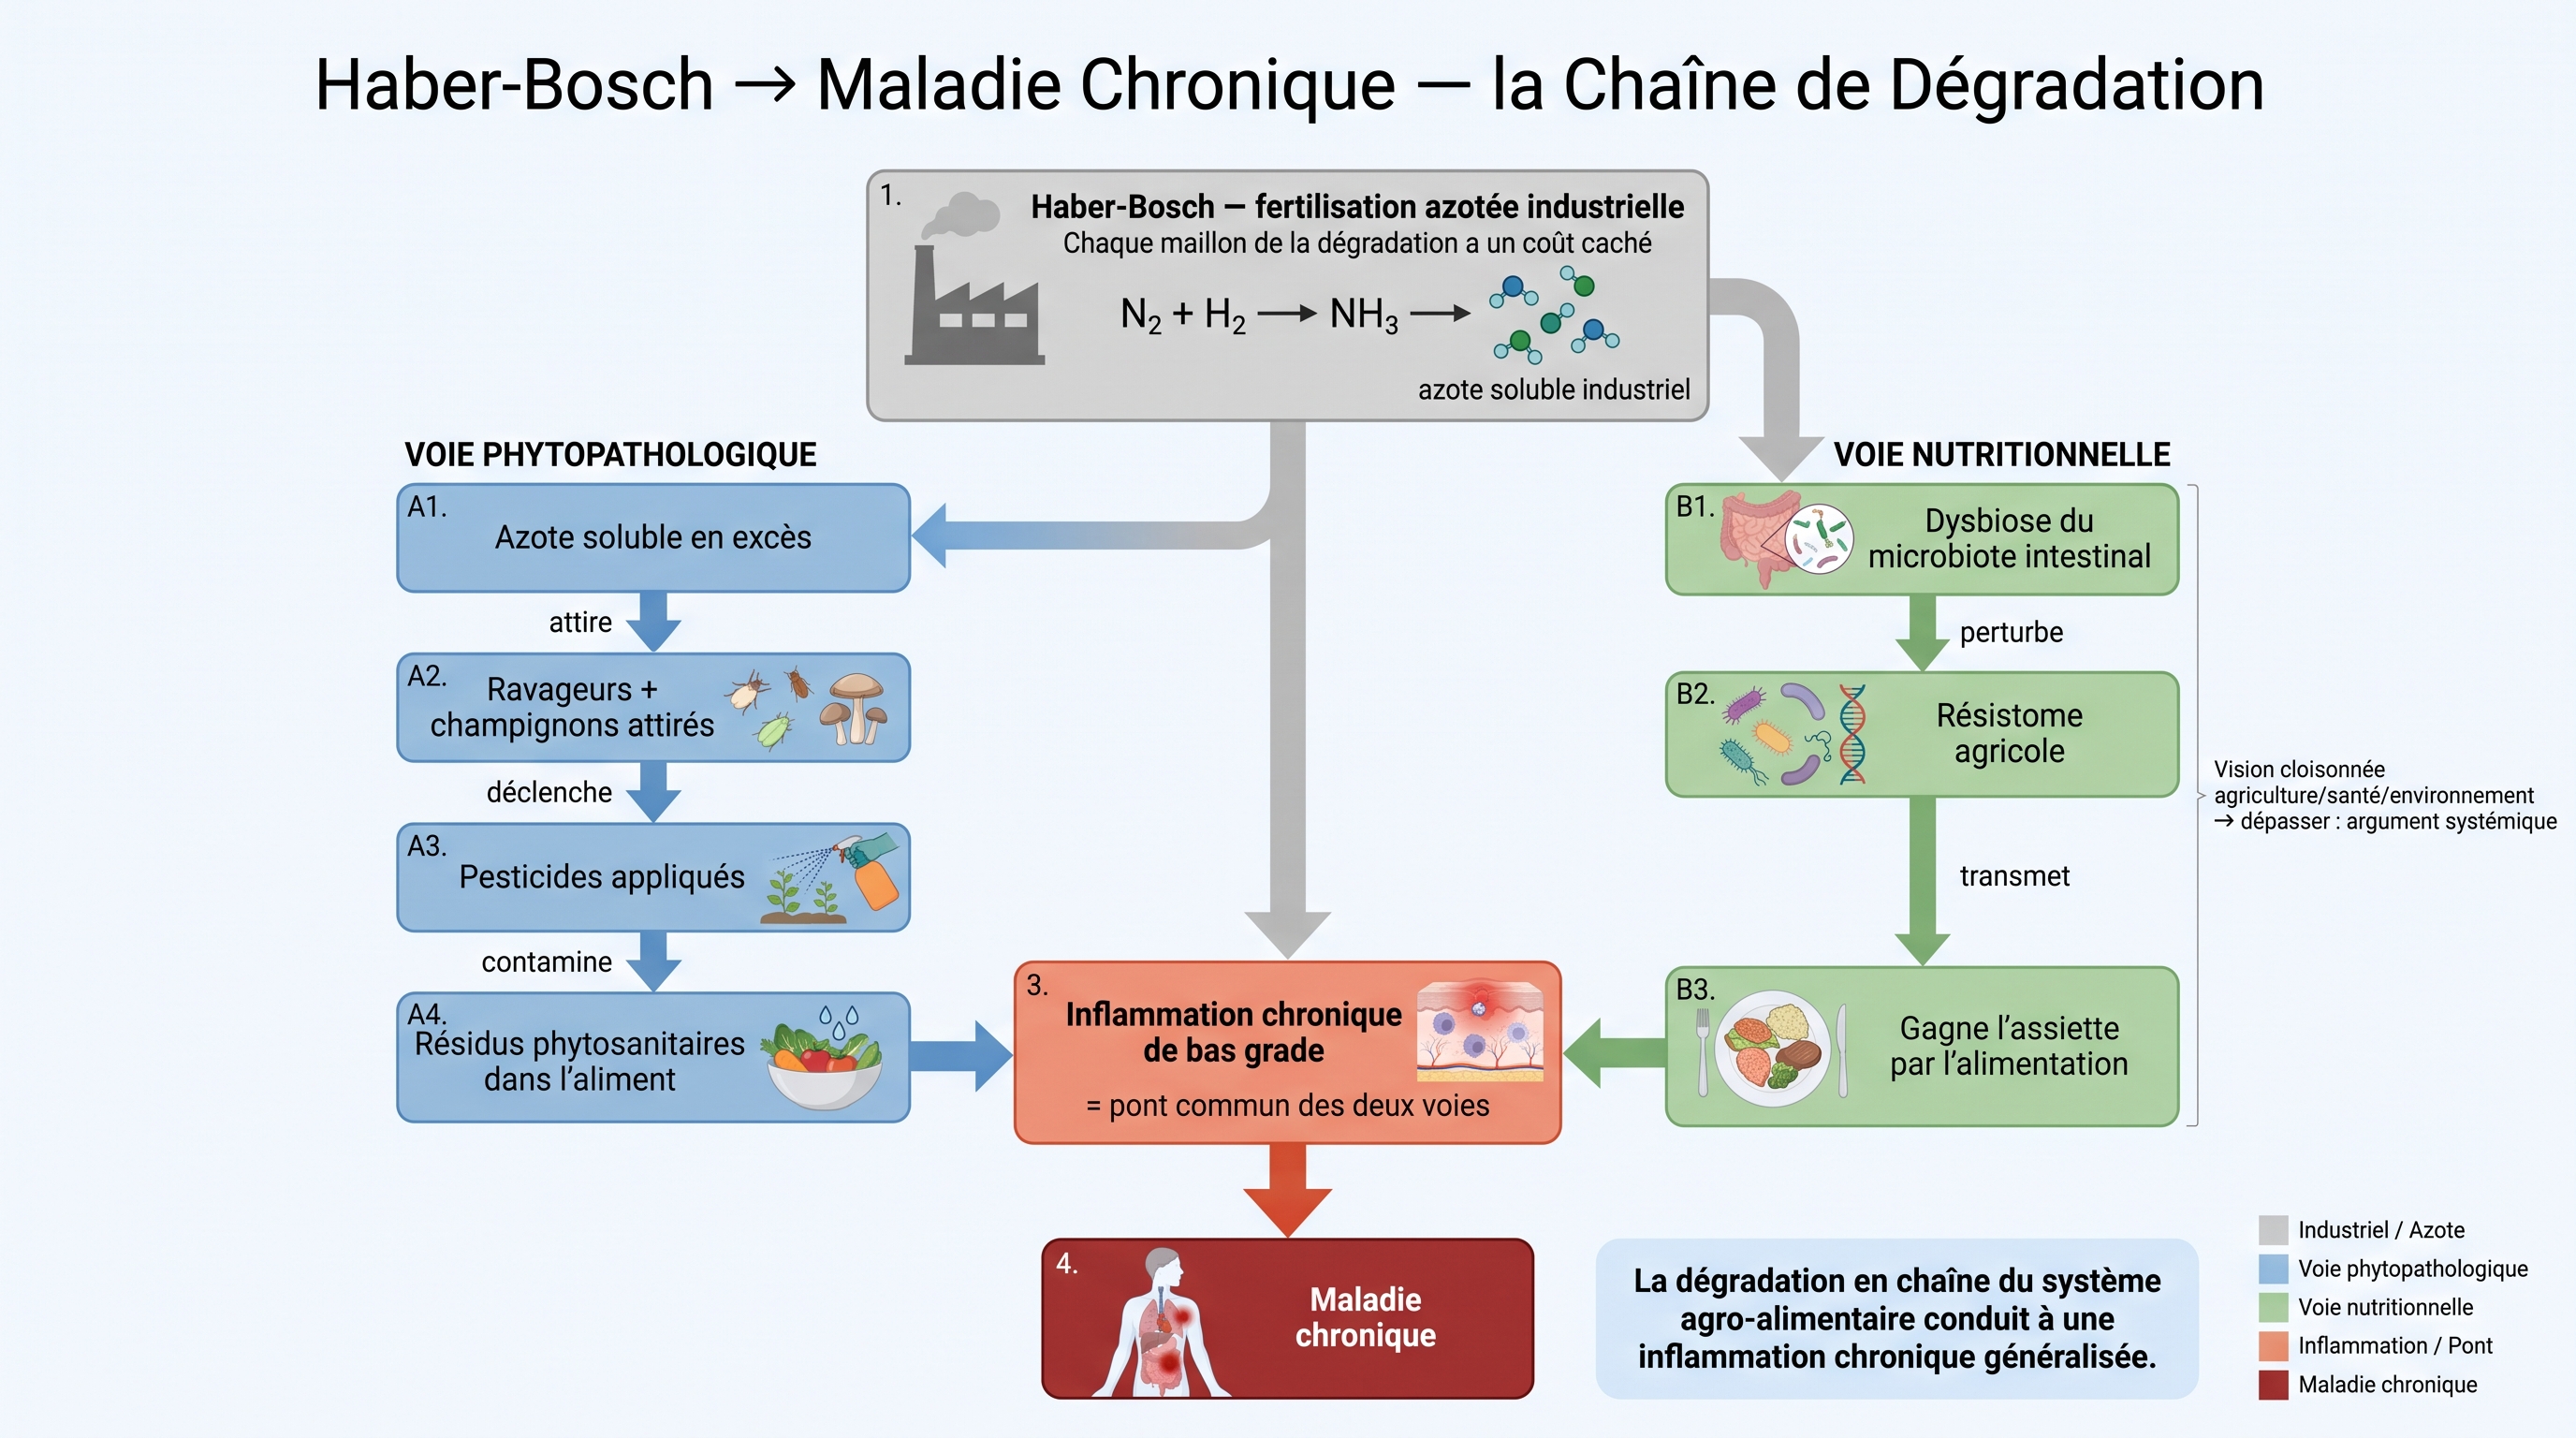
C2 : Haber-Bosch → Maladie chronique (chaîne de dégradation)
Argument
Chaque maillon de la dégradation d'un sol a un coût caché, jusqu'à la maladie chronique. Le point de départ est un procédé industriel, Haber-Bosch, qui fabrique l'azote de synthèse au prix d'une énergie fossile considérable et déverse dans les sols un azote minéral inédit à l'échelle de l'évolution. Ce flux favorise les microbes « opportunistes », effondrant la diversité du sol ; les mycorhizes, champignons alliés des racines, se rétractent. La plante, dopée à l'azote, produit une biomasse abondante mais pauvre en nutriments — un « effet de dilution » qui met la faim cachée dans l'assiette. Un aliment appauvri prive notre flore intestinale de ses substrats : une « dysbiose » s'installe, qui entretient une inflammation sourde et favorise l'antibiorésistance.
Illustration : Fig. C2-A · C2 — Haber-Bosch → Maladie chronique : la chaîne de dégradation…
Science
- Haber-Bosch (F2) : Point de départ : le procédé Haber-Bosch transforme l'azote atmosphérique en NH3 de synthèse au prix d'une dépendance fossile massive (forte dépendance fossile (1-2% de l’énergie mondiale)), injectant dans les sols un flux de N minéral inédit à l'échelle évolutive.
→ fiche #84 - Copiotrophes (S2) : Le N minéral massif du maillon précédent favorise sélectivement les copiotrophes r-stratèges qui dominent les ressources labiles, écrasent les oligotrophes et effondrent la diversité fonctionnelle du microbiome (Shannon, Chao1 en chute).
→ fiche #79 (cadre) · fiche #84 - champignon mycorhizien à arbuscules (S3) : La domination copiotrophe et l'abondance de N disponible suppriment le signal strigolactone et rendent la symbiose mycorhizienne non rentable pour la plante : les réseaux CMA se contractent, la glomaline se raréfie, l'architecture biologique du sol perd son ossature fongique.
→ fiche #19 · fiche #27 · fiche #28 · fiche #29 +2 - Effet d’amorçage (S4) : Privé de ses partenaires fongiques et dopé au N labile, le microbiome copiotrophe attaque la MO stable pour y extraire l'énergie et l'azote résiduels (N-mining) : le priming effect déstocke le COS, libère du CO2 et du N2O, et rompt le cycle biogéochimique.
→ fiche #4 (cadre) · fiche #11 · fiche #30 · fiche #76 +4 - Loi de la Trophobiose (V2) : Le sol déstocké et le N excédentaire saturent la plante en azote soluble non assimilé en protéines : selon la Loi de la Trophobiose (Chaboussou), ce déséquilibre métabolique attire ravageurs et pathogènes, imposant en retour un recours accru aux pesticides.
→ fiche #12 · fiche #84 · fiche #87 - effet de dilution (H1) : La plante déséquilibrée par la trophobiose produit un rendement en biomasse élevé mais une matrice appauvrie en micronutriments et en métabolites secondaires : c'est l'effet de dilution, qui transfère la dégradation du sol dans l'assiette sous forme de faim cachée.
→ fiche #64 · fiche #84 - dysbiose (H2) : Les aliments dilués (pauvres en fibres fermentescibles, polyphénols, métabolites microbiens) privent le microbiote intestinal de ses substrats : la diversité chute, les SCFA protecteurs s'effondrent, la dysbiose s'installe comme écho digestif de l'appauvrissement du sol.
→ fiche #13 · fiche #84 - inflammation chronique de bas grade (H2) : La dysbiose entretient une inflammation systémique chronique low-grade (CRP, IL-6 élevées sans symptômes aigus). Cette inflammation augmente la perméabilité intestinale, expose le résistome intestinal aux antibiotiques résiduels, et accélère le développement de l'antibiorésistance. Voie indirecte agrochimie → AMR via inflammation.
→ fiche #131 (pivot) · fiche #221 - antibiorésistance (H3) : La dysbiose, conjuguée au résistome du sol agricole transféré via la chaîne alimentaire, culmine dans la résistance antimicrobienne : expression la plus documentée du fardeau de maladie chronique né huit maillons plus tôt du baril de gaz naturel Haber-Bosch.
→ fiche #11 · fiche #24 (cadre) · fiche #79 (cadre) · fiche #80 +2
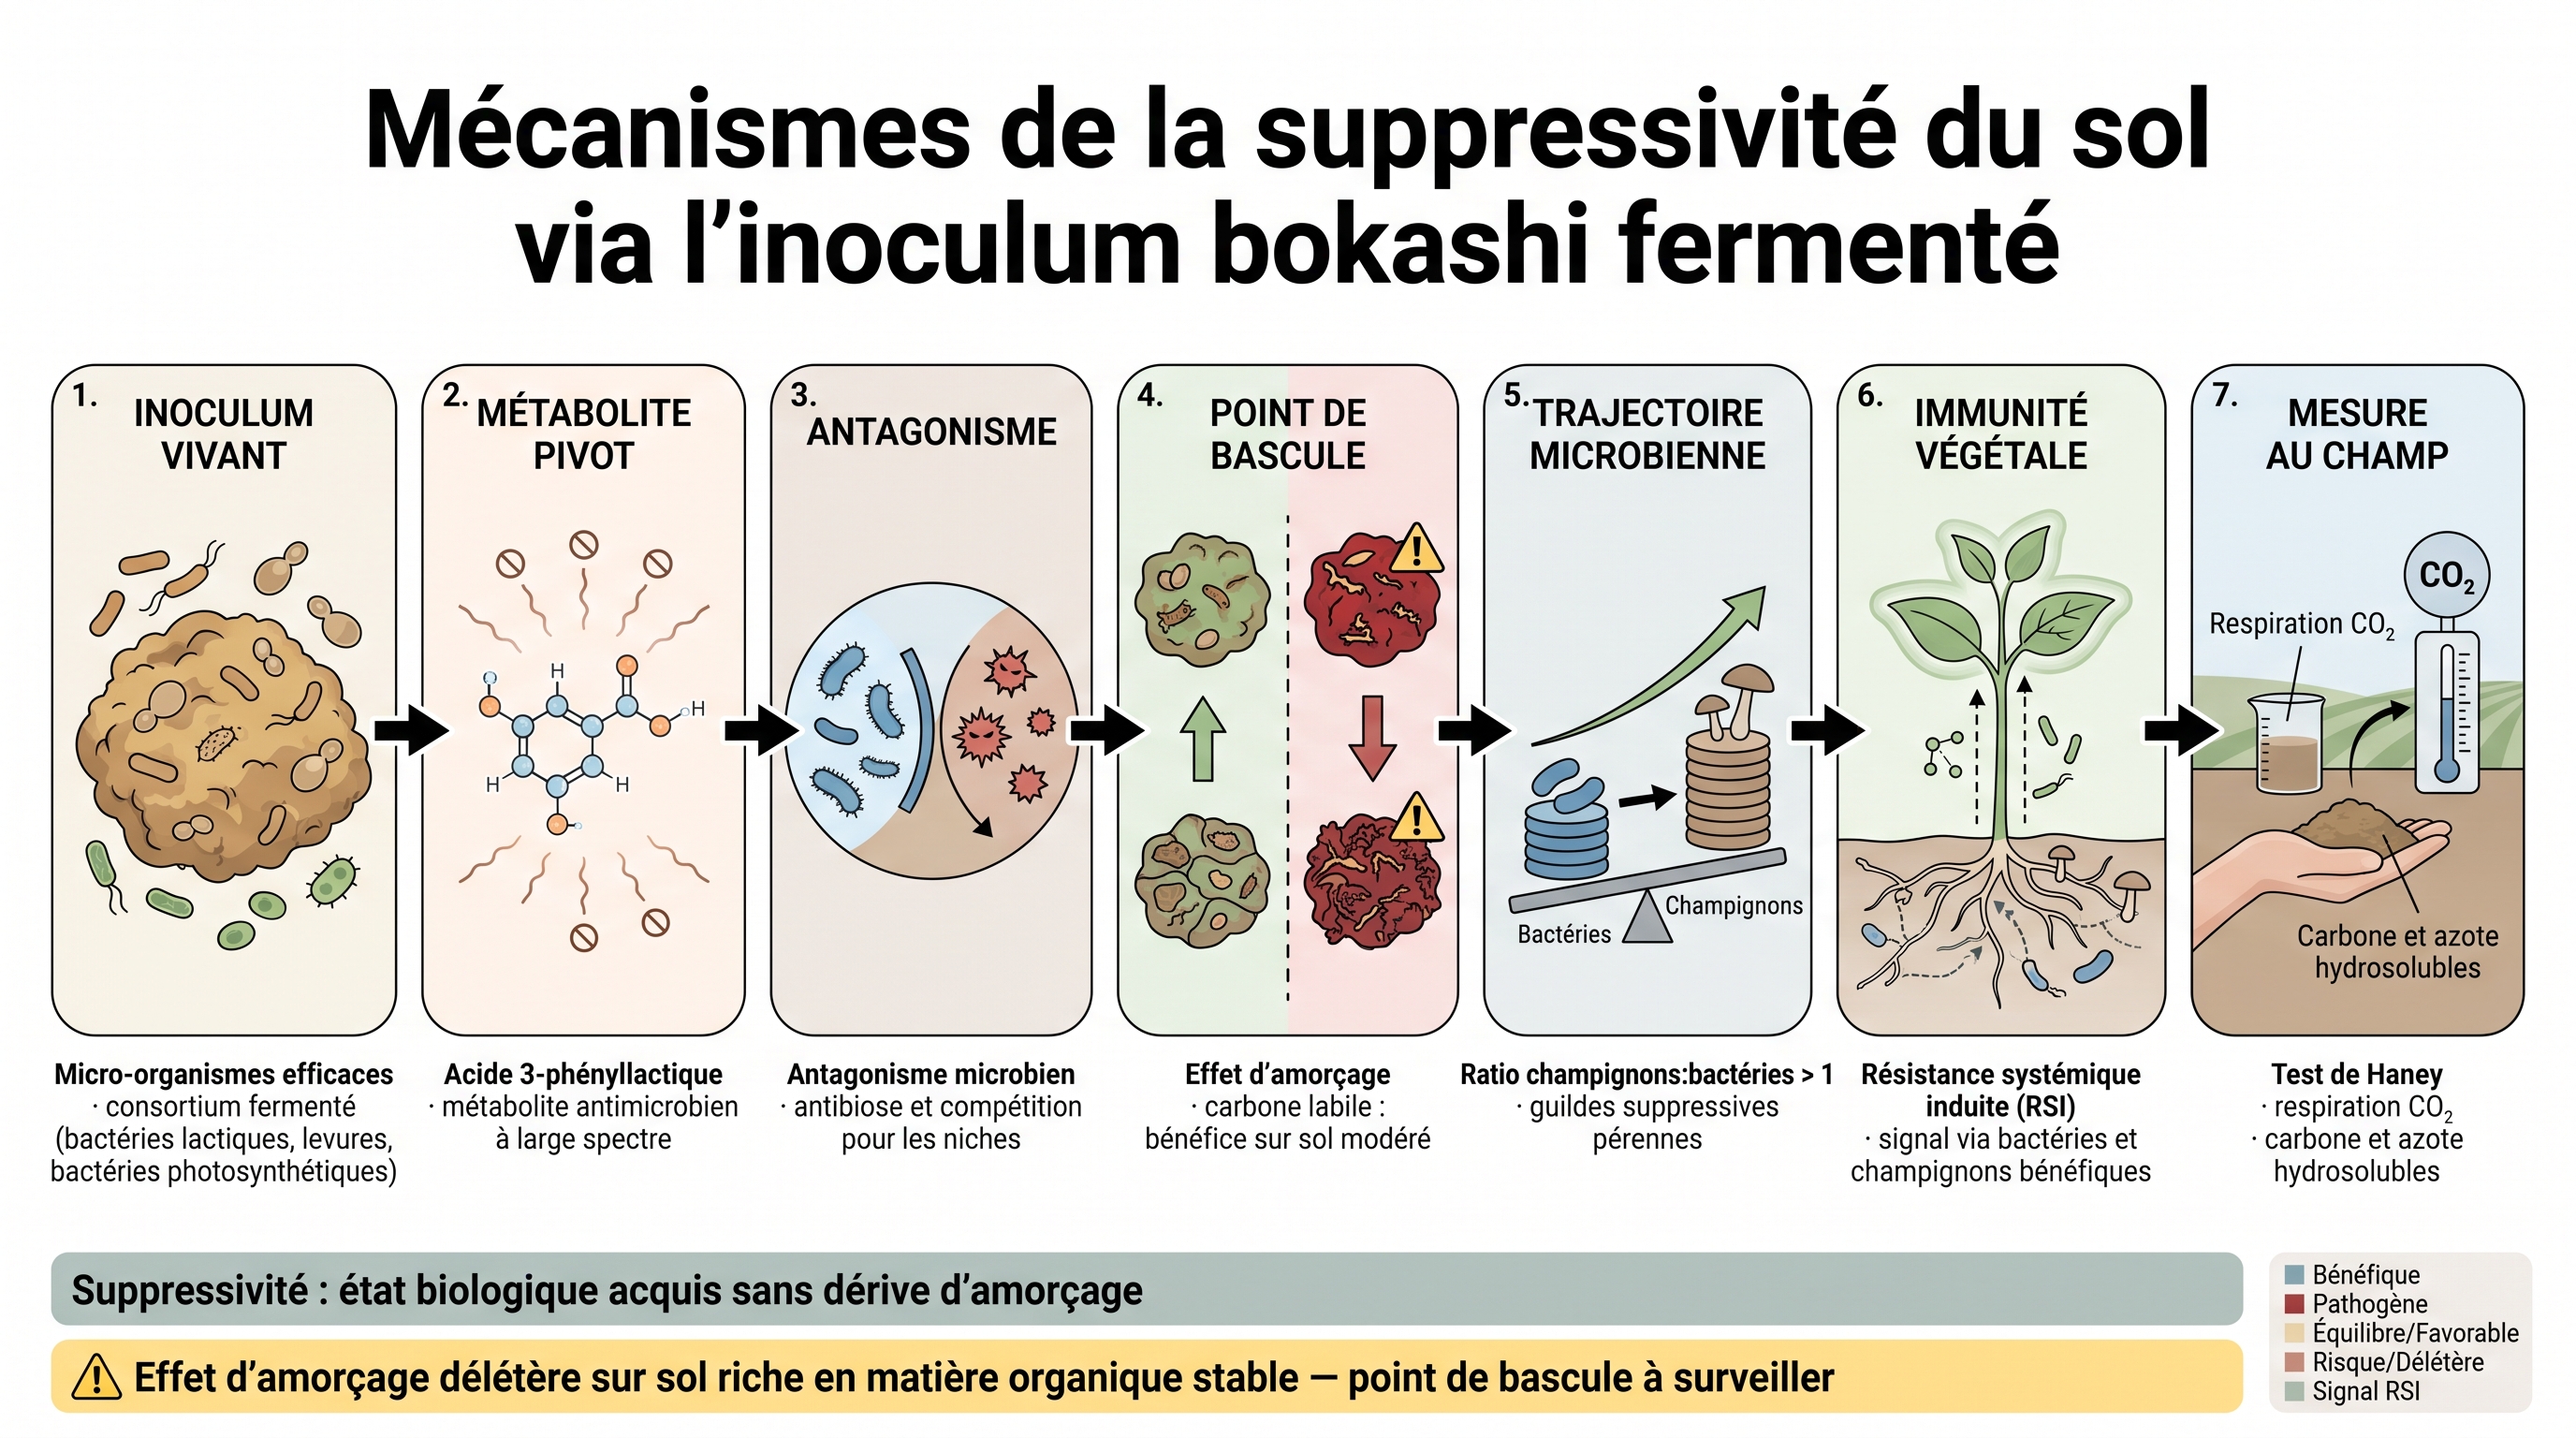
C3 : Bokashi → Suppressivité du sol
Argument
Le bokashi, ce mélange fermenté de déchets végétaux, protège le sol des maladies — à condition de comprendre comment, car son effet dépend du sol. Il apporte un inoculum de micro-organismes efficaces, bactéries lactiques et levures, dont la fermentation libère un métabolite antimicrobien. Dans le sol, ces microbes entrent en compétition directe avec les agents pathogènes. Mais l'apport de carbone frais réveille aussi la vie microbienne : ce « coup d'amorçage » est bénéfique sur un sol modérément riche, mais délétère sur un sol déjà très chargé en matière organique. À terme, l'équilibre entre champignons et bactéries se rétablit — une tendance de terrain. La plante, stimulée, amorce ses défenses. Au champ, un test de respiration du sol suit l'activité.
Illustration : Fig. C3-A · C3 — Bokashi → Suppressivité du sol…
Science
- micro-organismes efficaces (P3) : Point de départ : le consortium EM (bactéries lactiques, levures, bactéries photosynthétiques) fermenté en bokashi fournit l'inoculum vivant qui ouvre la chaîne — préparation standardisée à partir de substrats végétaux.
→ fiche #67 (pivot) · fiche #97 - Acide 3-phényllactique (V3) : À partir du consortium EM, la fermentation lactique produit l'acide 3-phényllactique, métabolite secondaire à large spectre antimicrobien — c'est la molécule pivot qui transforme le bokashi d'inoculum en biocide sélectif.
→ fiche #67 · fiche #95 - Antagonisme microbien (S2) : Dans le sol, ces métabolites et les populations introduites exercent un antagonisme direct — antibiose et compétition pour niches — contre les pathogènes telluriques résidents, faisant basculer la pression sélective vers les consortia bénéfiques.
→ fiche #21 (cadre) - Effet d’amorçage (S4) : Cet antagonisme s'accompagne d'un apport de C labile qui réveille le métabolisme hétérotrophe : priming contrôlé sur sol à COS modéré (bénéfice), délétère sur sol riche en MO stable (risque) — le point de bascule prédictif de la chaîne.
→ fiche #11 · fiche #82 - Ratio fungi:bacteria (S3) : Une fois le priming stabilisé, la trajectoire du microbiome se lit dans le ratio F/B : recalibration vers une dominance fongique modérée (F/B > 1), signature d'un sol qui mature et héberge des guildes suppressives pérennes.
→ fiche #140 (pivot) · fiche #154 - Résistance systémique induite (V2) : Ce microbiome rééquilibré recrute et signale à la plante via PGPR et CMA, déclenchant l'ISR (voie jasmonate/éthylène) : la plante passe d'un état immunitaire passif à un état amorcé, sans coût photosynthétique direct.
→ fiche #22 (pivot) · fiche #32 - Test de Haney (P1) : Le résultat se mesure au champ via le test Haney (respiration CO₂, C et N hydrosolubles) qui capture activité microbienne et C labile disponible — signature fonctionnelle d'une suppressivité atteinte sans dérive de priming.
→ fiche #13
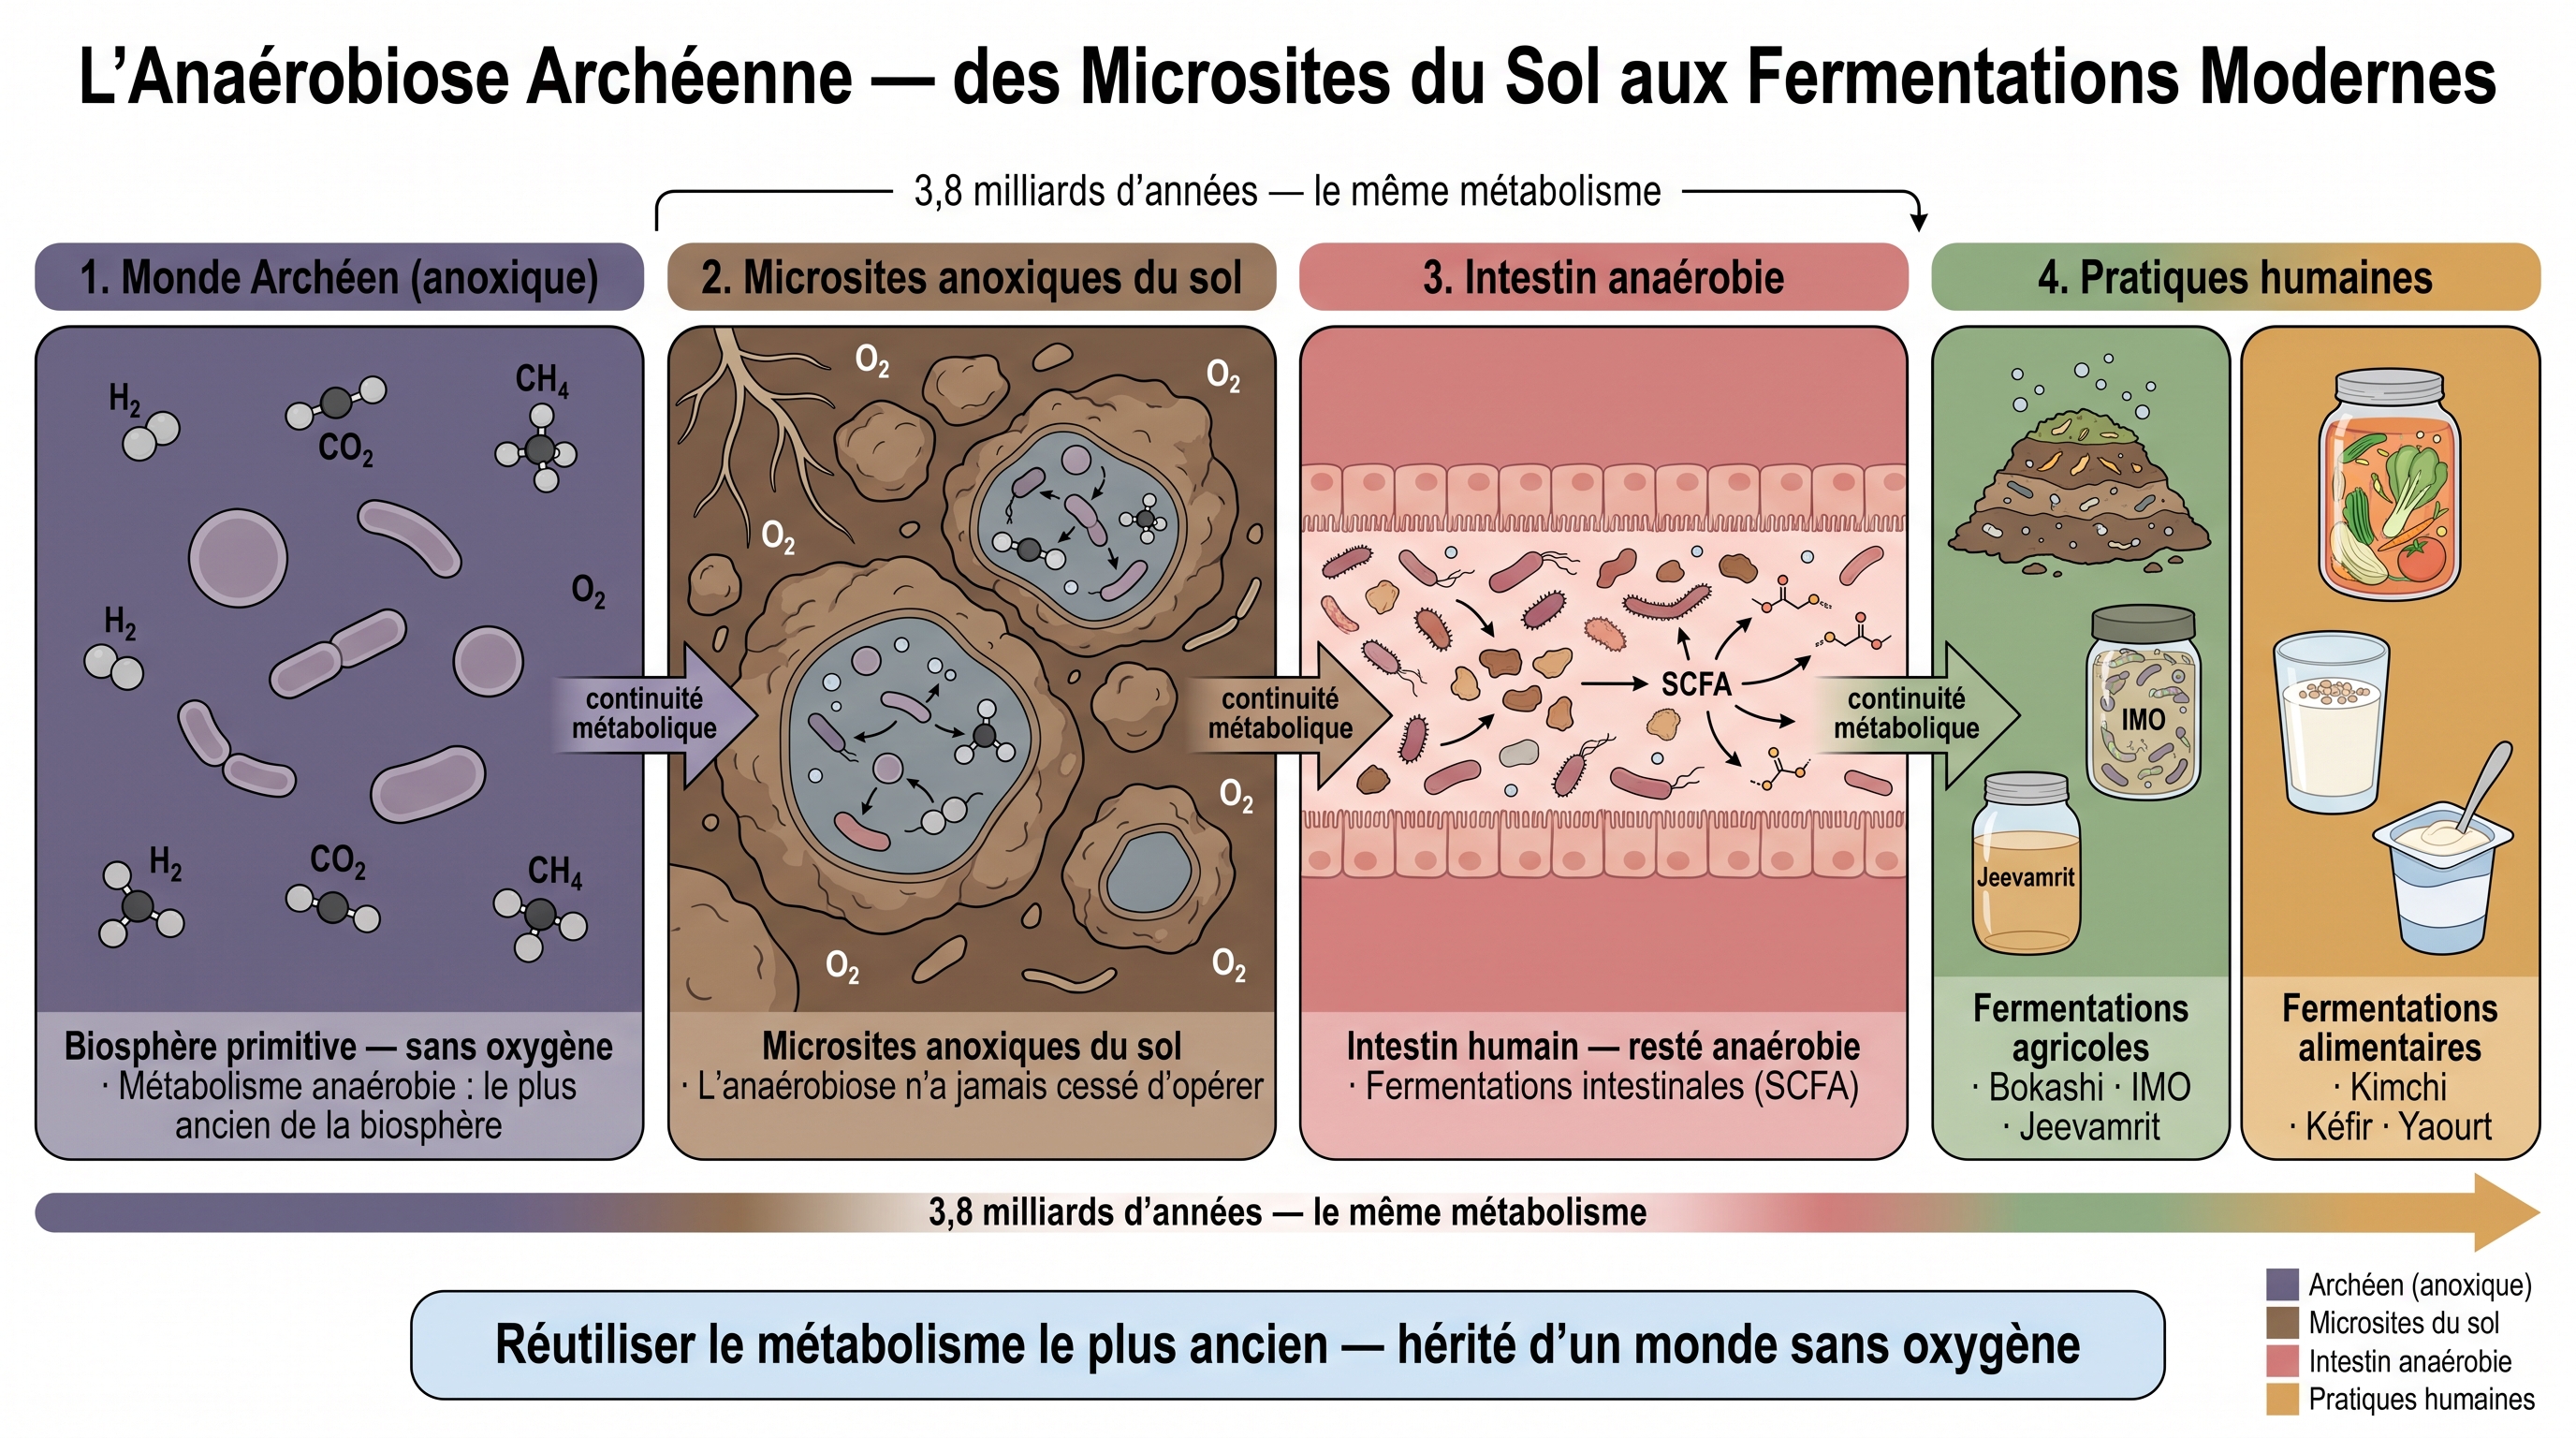
C4 : Anaérobiose archéenne → Fermentations alimentaires modernes
Argument
Kimchi, kéfir et yaourt ne sont pas de simples recettes : ils réactivent le plus ancien métabolisme du vivant, né dans un monde sans oxygène. Avant que l'oxygène n'envahisse l'atmosphère, les premiers organismes tiraient leur énergie de la fermentation. Ce métabolisme n'a jamais disparu : il s'est réfugié dans les micro-poches sans oxygène des mottes de sol, où il reste compétitif car il conserve matière et énergie. Les préparations fermentées du sol, comme le bokashi, remettent au travail ces mêmes microbes anaérobies ; appliqués au sol, ils s'intègrent au couple plante-microbes, et leurs composés remontent jusqu'à notre assiette. Or notre intestin, privé d'oxygène, les accueille en terrain familier : les aliments fermentés y réactivent un héritage de milliards d'années.
Illustration : Fig. C4-A · C4 — Anaérobiose archéenne : le métabolisme le plus ancien, des microsites du sol aux fermentations…
Science
- Dernier Ancêtre Commun Universel (F1) : Point de départ : LUCA, dernier ancêtre commun universel, organisme anaérobie vivant dans un monde anoxique à 3,8 Ga et reposant sur des métabolismes fermentaires primitifs. Toute la biosphère descend de cette condition archéenne.
→ fiche #201 (pivot) · fiche #344 - microsites anoxiques (S4) : De LUCA aux sols modernes : le métabolisme anaérobie ne disparaît jamais, il se réfugie dans les microsites anoxiques au cœur des agrégats, où la fermentation reste active quelques micromètres sous une surface pourtant oxygénée.
→ fiche #136 · fiche #163 · fiche #264 (pivot) - thermodynamique fermentation (V3) : Dans ces microsites, la thermodynamique particulière de la fermentation (ΔG faible, C et N conservés dans les métabolites au lieu d'être oxydés) explique pourquoi les voies archéennes sont restées compétitives : elles préservent l'énergie et la matière dans les niches anoxiques.
→ fiche #23 · fiche #268 (pivot) - micro-organismes efficaces (P3) : Traduction agronomique de cette thermodynamique : les EM (bactéries lactiques, levures, bactéries photosynthétiques PNSB) réactivent sur le terrain les mêmes consortia fermentaires ancestraux — bokashi, IMO, Jeevamrit sont autant de façons modernes d'exploiter le métabolisme archéen.
→ fiche #27 - Holobionte (V2) : Les EM appliqués au sol ne restent pas externes : ils intègrent l'holobionte plante-microbiome, colonisent la rhizosphère puis l'endosphère, et font basculer la plante dans une physiologie où le métabolite fermentaire devient signal nutritionnel et immunitaire.
→ fiche #21 (cadre) - axe sol-plante-goût (H2) : Depuis l'holobionte, les communautés fermentaires empruntent l'axe sol-plante-goût : par la consommation des aliments, les métabolites et les micro-organismes anaérobies franchissent la frontière du vivant et rejoignent l'intestin humain — service de vaccination microbienne.
→ fiche #13 · fiche #40 (pivot) - Mycobiome intestinal (H1) : Arrivée : l'intestin humain, anaérobie comme l'était le monde archéen, héberge un mycobiome et un microbiote dont la filiation Opisthokonta remonte au vivant primitif. Les aliments fermentés modernes (kimchi, kéfir, yaourt) y réactivent directement le métabolisme le plus ancien de la biosphère, bouclant 4 milliards d'années.
→ fiche #13 (pivot) · fiche #280
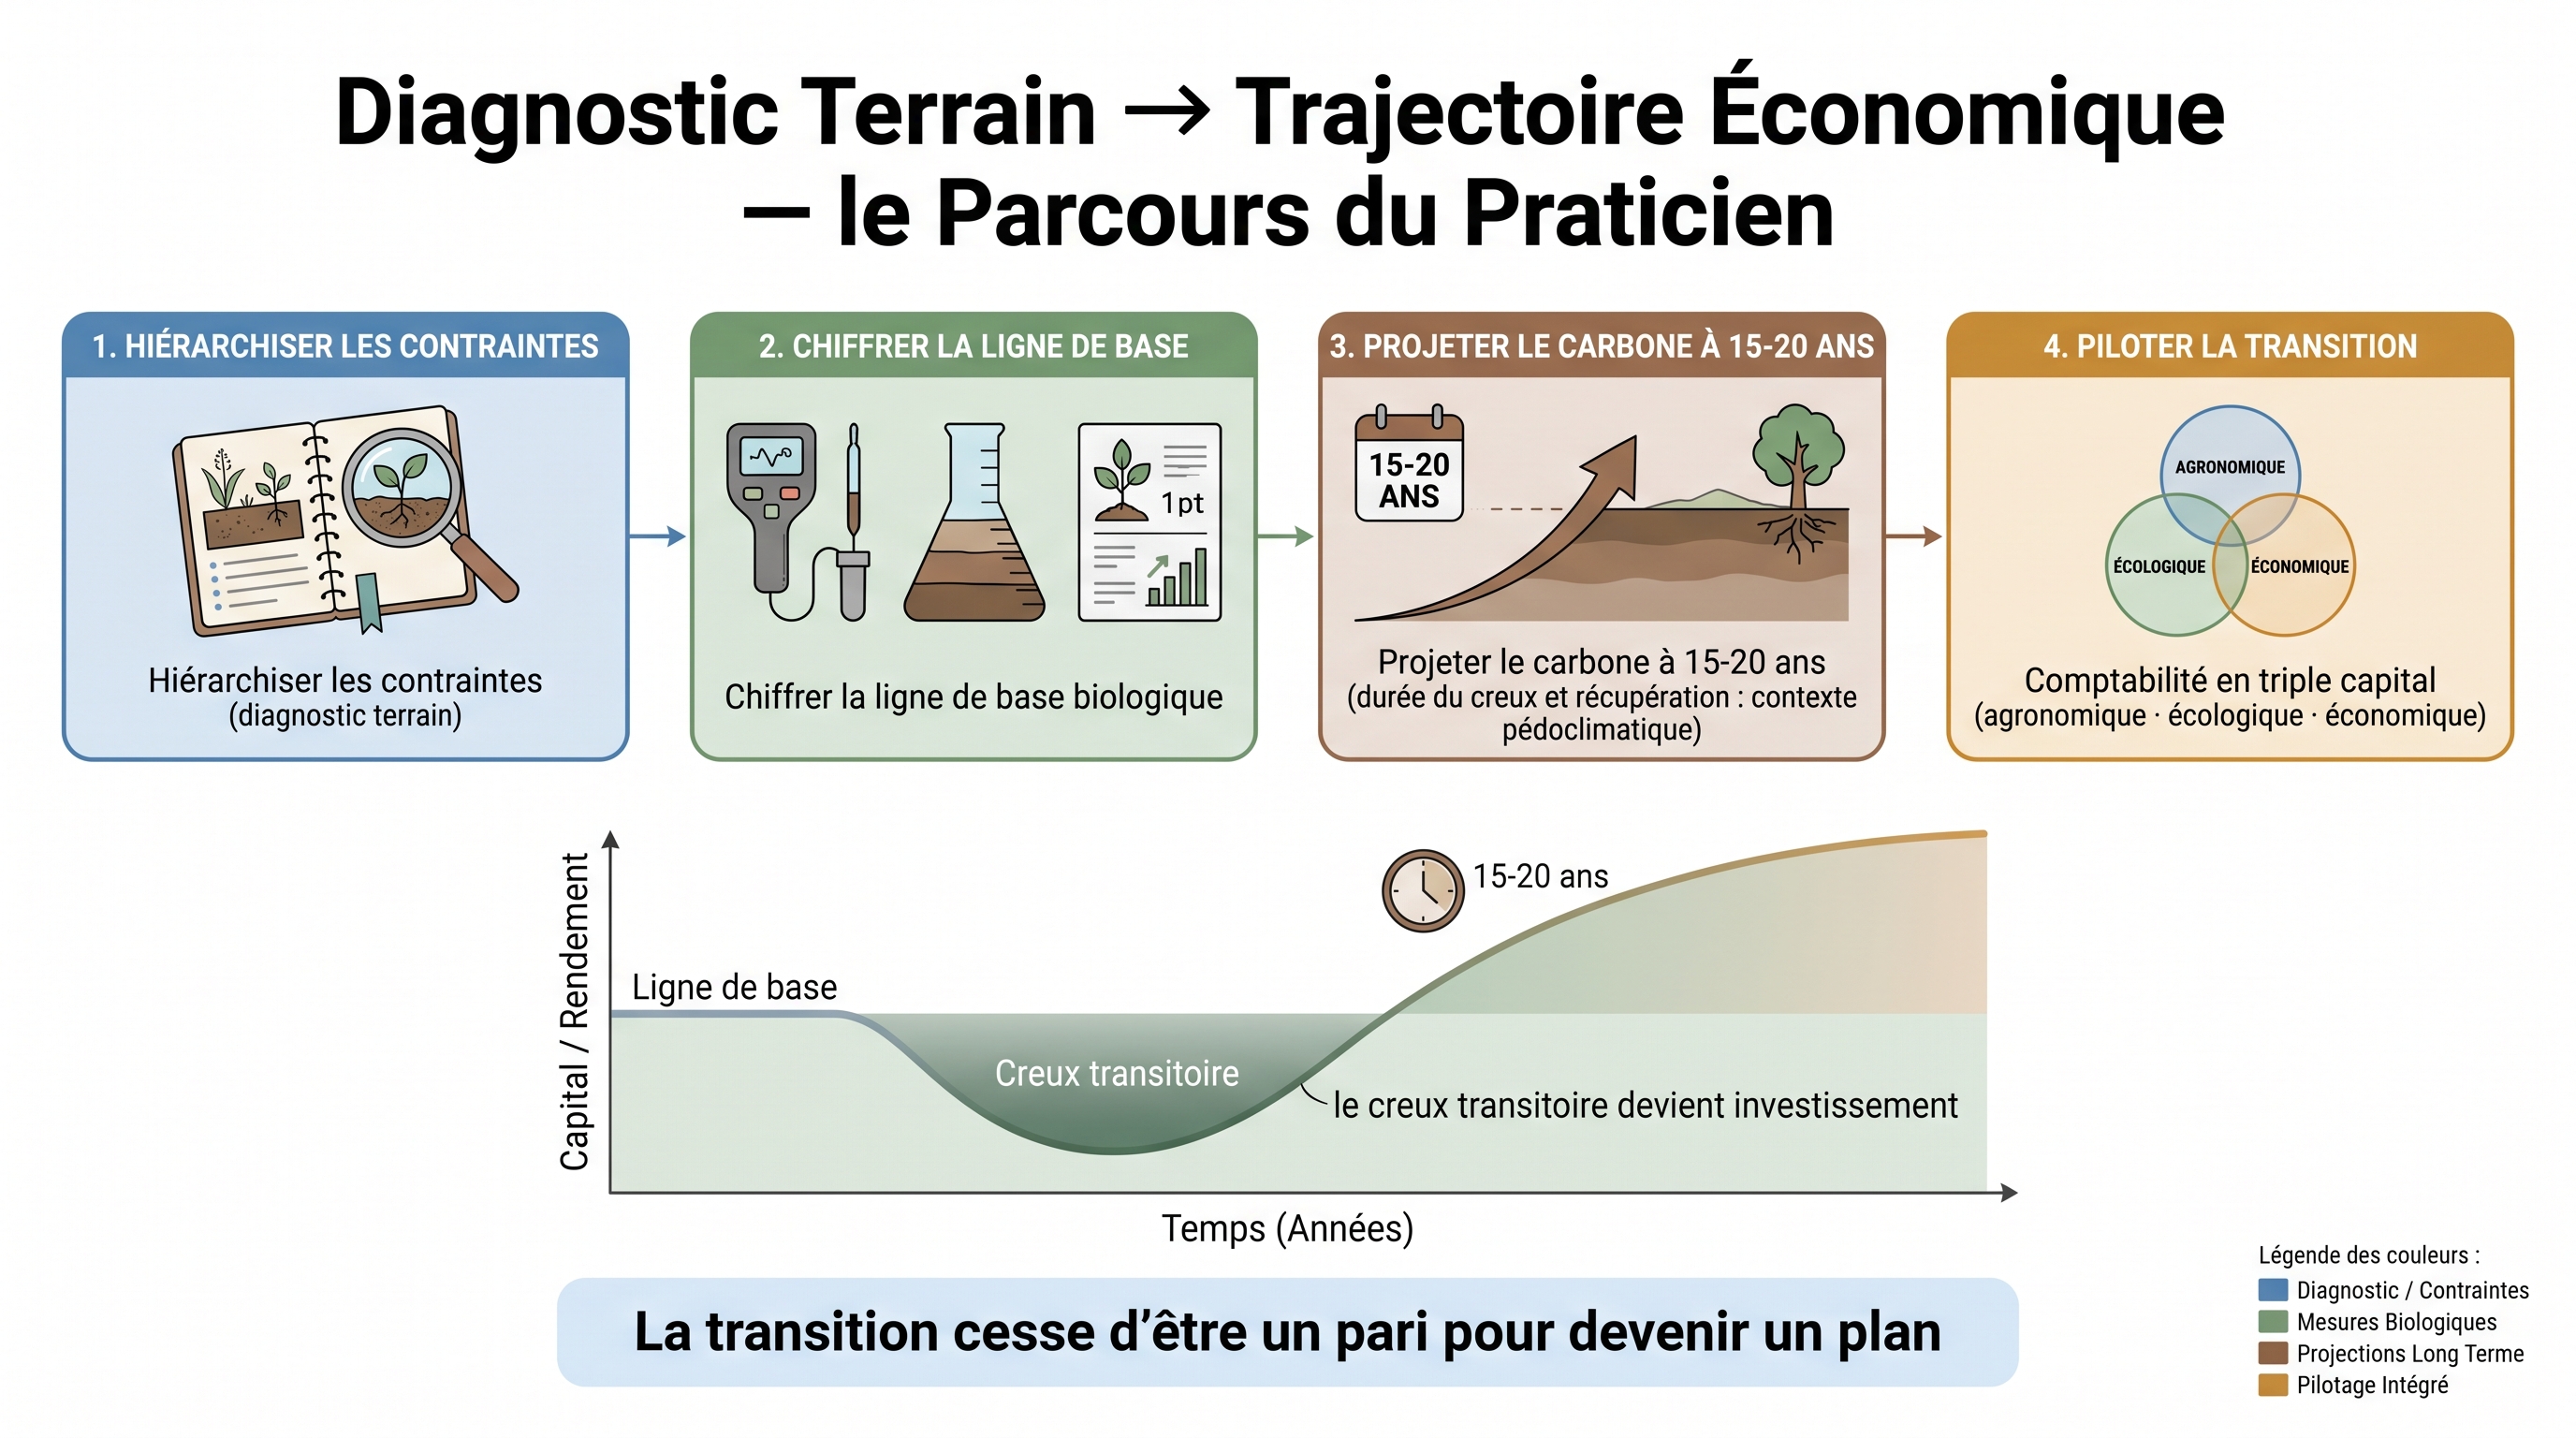
C5 : Diagnostic terrain → Trajectoire économique
Argument
Passer au sol vivant cesse d'être un pari dès qu'on le pilote comme un plan : du diagnostic au chiffrage, la transition devient un investissement. Tout part d'un arbre de décision qui hiérarchise les contraintes du sol. Un indice de diversité microbienne ancre la ligne de base — élevé, sol sain ; bas, sol dégradé — une convention de terrain. Un modèle de bilan de la matière organique projette la trajectoire du carbone sur quinze à vingt ans. Le plan s'appuie sur l'agriculture de conservation (semis direct, couverture permanente, rotations) épaulée par des inoculants biologiques qui raccourcissent le « creux » transitoire. Une comptabilité à triple capital (naturel, social, financier) transforme ce creux en investissement, la densité nutritionnelle des aliments devenant l'indicateur de santé.
Illustration : Fig. C5-A · C5 — Diagnostic terrain → Trajectoire économique : le parcours du praticien…
Science
- arbre de décision diagnostic (P1) : Point de départ : l'arbre parcourt la cascade N0-N5 (eau, structure, chimie, MO, microbiome) et hiérarchise les contraintes limitantes, transformant l'observation terrain en plan d'action.
→ fiche #243 · fiche #325 (pivot) · fiche #352 - indice de diversité de Shannon (S2) : Les niveaux bas de la cascade validés, le diagnostic descend au microbiome : l'indice de Shannon de la diversité microbienne fournit l'indicateur qui ancre la ligne de base biologique — lu en trajectoire relative, sans seuils numériques universels.
→ fiche #231 (pivot) - bilan humique (S4) : Le diagnostic microbien est projeté dans le temps long : le bilan humique (modèle AMG, trajectoire COS 15-20 ans) traduit l'état biologique ponctuel en pronostic carbone quantifié et actionnable.
→ fiche #10 · fiche #12 · fiche #14 · fiche #27 - agriculture de conservation des sols (P2) : Sur la base du pronostic humique, le praticien choisit l'architecture agronomique : le trio indissociable de l'ACS (semis direct + couverture permanente + rotations) constitue le socle qui rend le bilan positif.
→ fiche #14 · fiche #21 (cadre) · fiche #27 · fiche #67 - bio-inoculant (P3) : Sur le socle ACS, le bio-inoculant (CMA, rhizobia, PGPR, Trichoderma) accélère la recolonisation des guildes identifiées déficitaires en position 2, raccourcissant le creux microbien de la phase de transition.
→ fiche #35 · fiche #160 (pivot) · fiche #299 - chronoséquence de transition (P5) : Les leviers ACS et biologiques sont ordonnés dans le temps : la trajectoire type en 4 phases (sevrage, stabilisation, régénération, maturité) rend visible le creux productif initial, condition d'un pilotage économique réaliste.
→ fiche #111 · fiche #260 (pivot) - Comptabilité en triple capital (F2) : Terminus économique : la comptabilité triple capital (financier + naturel + social) chiffre la trajectoire précédente, internalise le capital biologique accumulé et transforme le creux transitionnel en investissement rentable.
→ fiche #75 · fiche #321 (pivot) - densité nutritionnelle (H1) : La trajectoire économique mesurée en triple capital (capital naturel, social, financier) intègre la densité nutritionnelle des aliments produits comme indicateur ultime de qualité du système — pont entre comptabilité environnementale et santé publique.
→ fiche #39 · fiche #89 (pivot)
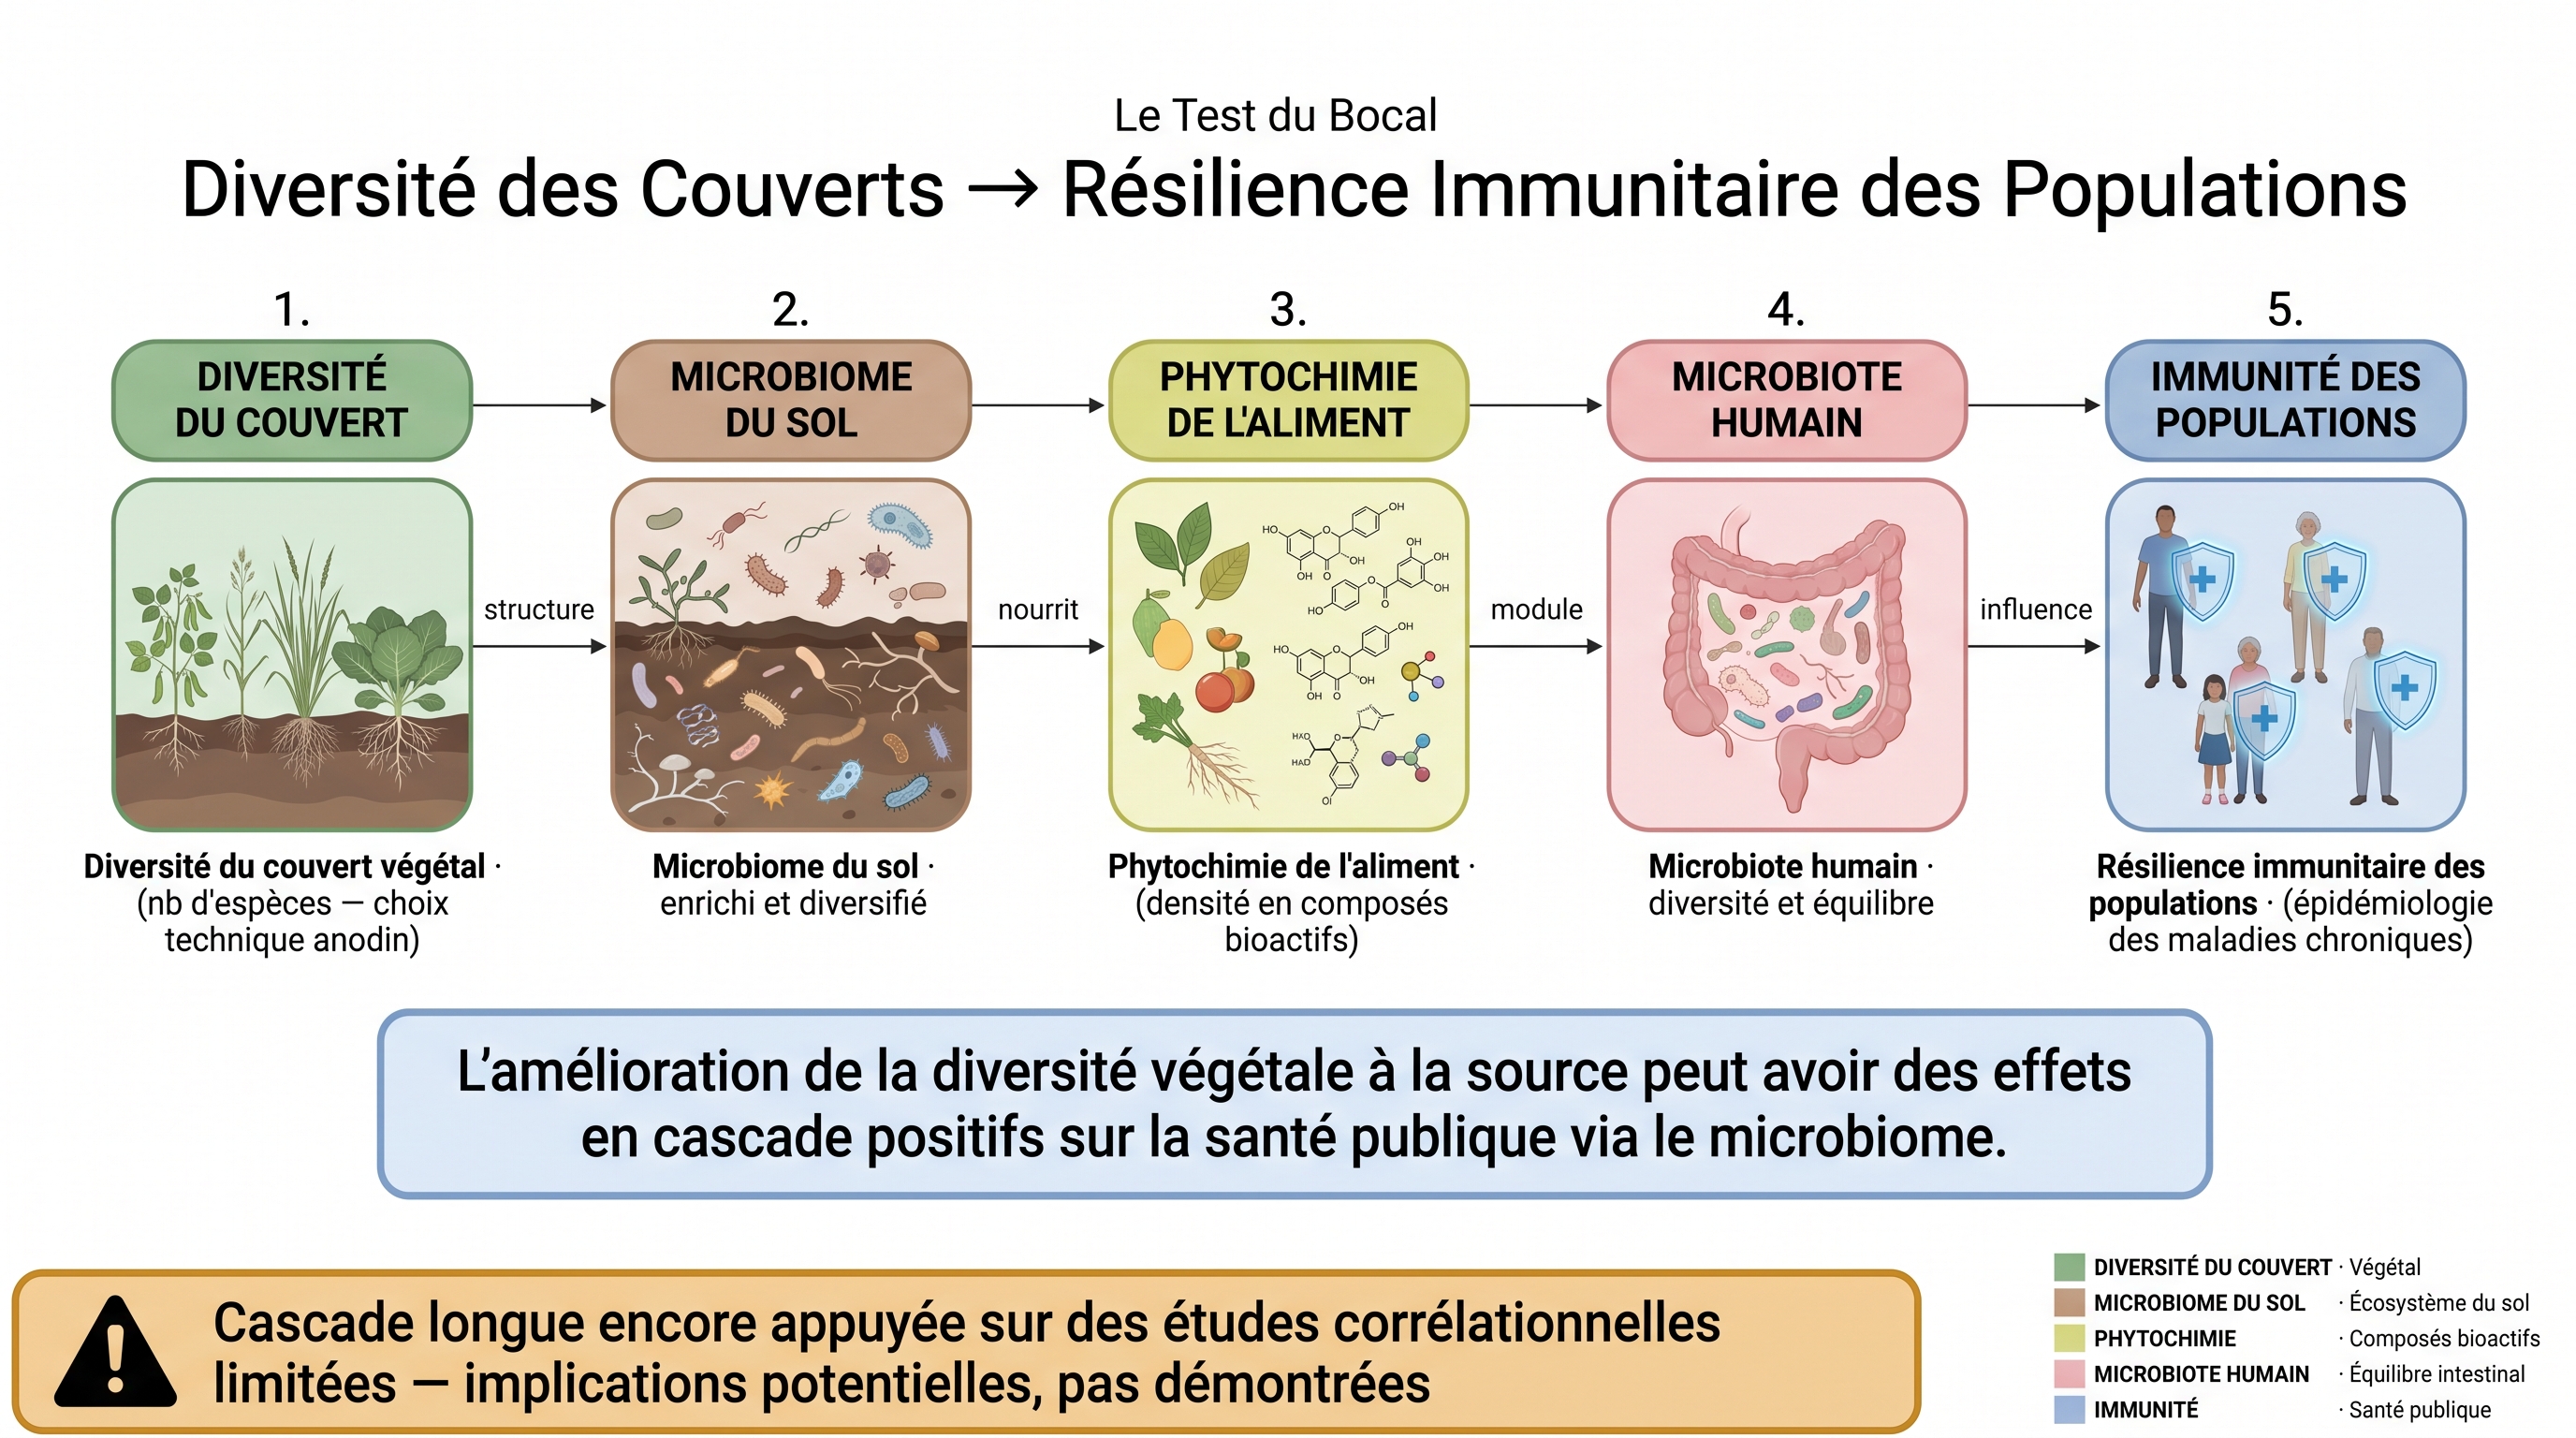
C6 : Diversité des couverts → Résilience immunitaire des populations
Argument
Un choix technique anodin — combien d'espèces semer dans un couvert — pourrait peser sur la santé immunitaire des populations. Chaque famille de plante recrute ses microbes : plus le couvert est diversifié, plus le sol devient riche en vie microbienne. Les mycorhizes, champignons alliés des racines, relient les plantes et font circuler eau, nutriments et signaux. Plantes et microbes forment un tout qui stimule défenses et chimie. L'aliment qui en sort porte cette diversité microbienne : selon l'« hypothèse des vieux amis », il entraînerait notre immunité, freinant la dérive inflammatoire des sociétés modernes. Un couvert riche réduit aussi la pression des maladies, desserrant le recours aux antibiotiques. Tout cela reste appuyé sur des études corrélationnelles limitées.
Illustration : Fig. C6-A · C6 — Diversité des couverts → Résilience immunitaire des populations…
Science
- couvert multiespèces (P2) : Point de départ : le choix agronomique en apparence anodin du nombre d'espèces au semis. Légumineuses + graminées + crucifères saturent les niches et diversifient les exsudats racinaires.
→ fiche #69 · fiche #215 (pivot) - biodiversité du sol (S2) : La diversité végétale aérienne se traduit immédiatement en diversité microbienne souterraine : chaque famille de plante recrute ses guildes, Chao1 et Shannon montent, le sol devient génétiquement plus riche.
→ fiche #21 (cadre) · fiche #64 · fiche #65 · fiche #67 +1 - Réseau Mycorhizien (S3) : Sur ce sol diversifié, les CMA tissent un réseau mycorhizien commun qui interconnecte les espèces du couvert : N, P, eau et signaux circulent entre plantes (transfert de C inter-plantes débattu), consolidant l'édifice fonctionnel bâti en amont.
→ fiche #1 · fiche #15 · fiche #66 - Holobionte (V2) : Raccordées par le CMN et nourries d'un microbiome riche, les plantes fonctionnent comme un holobionte élargi : défenses ISR/SAR amorcées, phytochimie secondaire stimulée, qualité nutritive préparée pour l'étape alimentaire.
→ fiche #21 (cadre) - hypothèse des vieux amis (H1) : L'aliment issu de cet holobionte transporte une signature microbienne diversifiée : il entraîne le système immunitaire humain selon l'hypothèse des vieux amis (Rook), inversant à l'échelle des populations la dérive inflammatoire des sociétés industrialisées.
→ fiche #194 · fiche #220 (pivot) - suppressivité comme alternative aux antibiotiques (H3) : Boucle de retour : l'holobionte robuste réduit la pression pathogène en champ et en élevage, desserrant le recours aux antibiotiques vétérinaires et phytosanitaires, ce qui freine l'AMR. La diversité d'un couvert végétal devient in fine un levier de résilience immunitaire populationnelle.
→ fiche #103 (pivot) · fiche #141
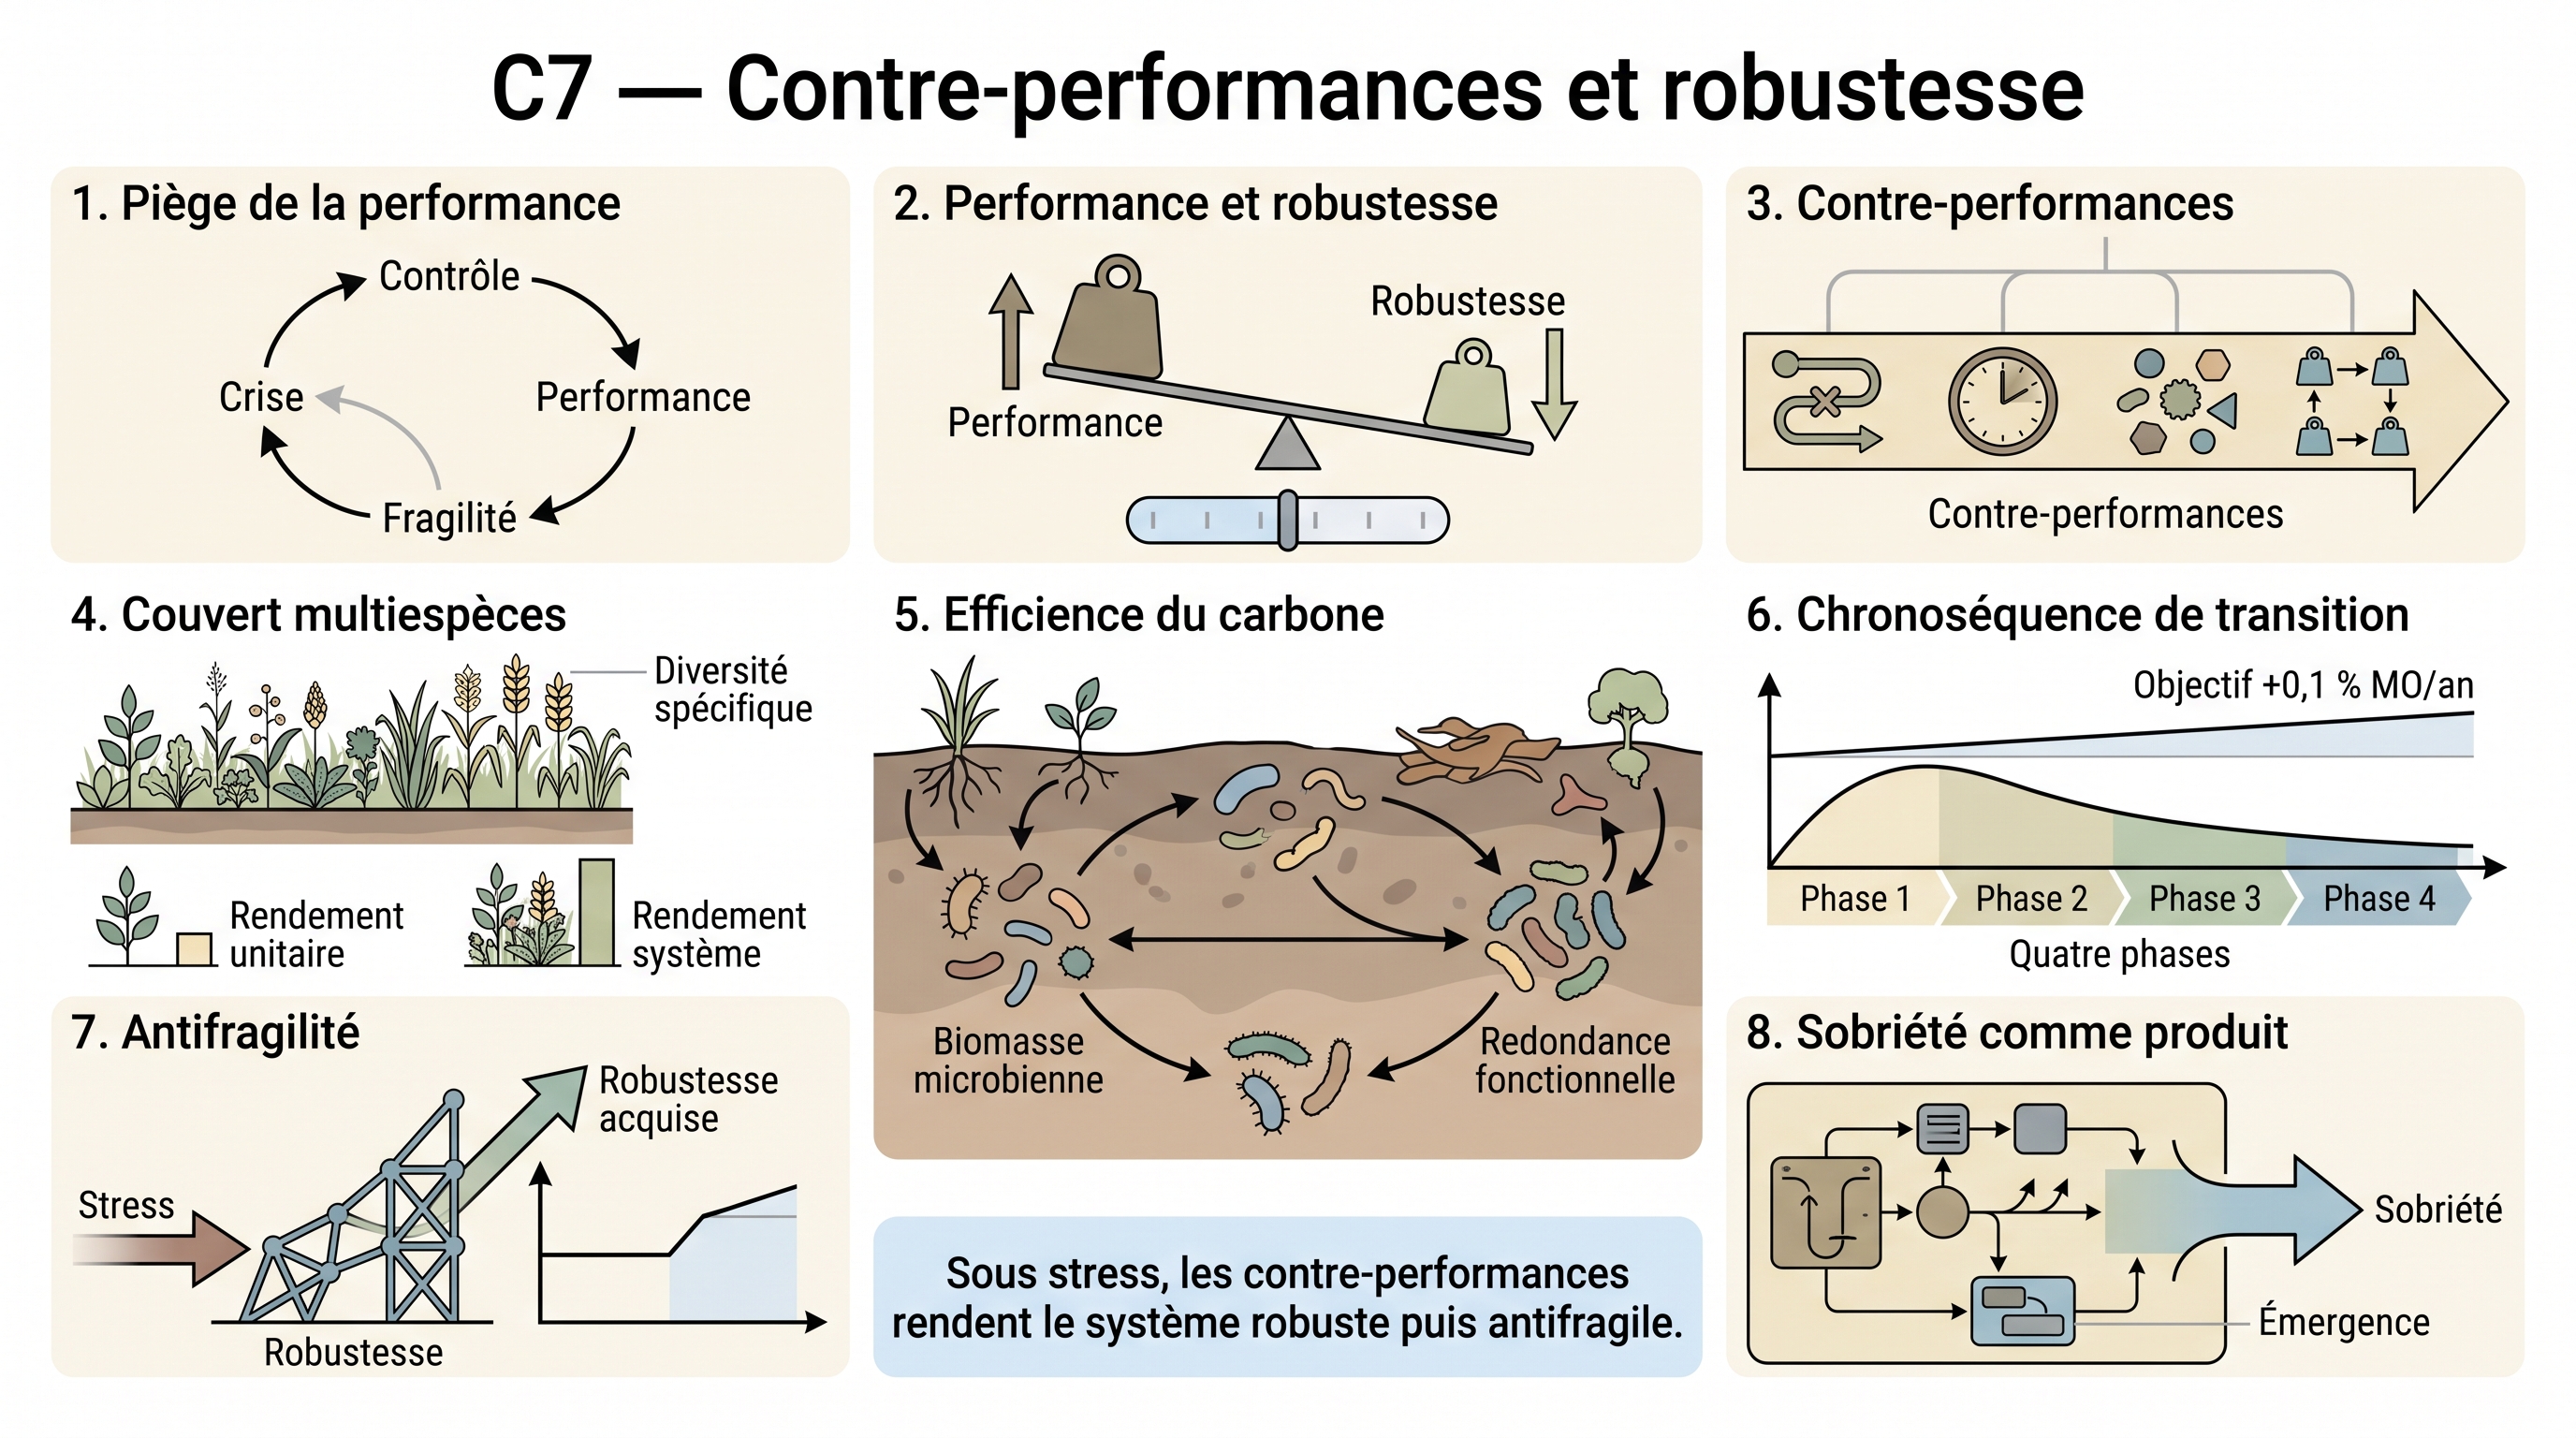
C7 : Piège de la performance → Robustesse par les contreperformances
Argument
Un système vivant ne peut pas être à la fois ultra-performant et robuste : accepter des « contre-performances » le rend plus solide. Le piège de la performance est une boucle qui s'auto-entretient : une crise pousse au contrôle, le contrôle cherche la performance maximale, qui rend le système fragile et relance la crise. Or il existe un compromis, décrit par Olivier Hamant : on ne peut pas maximiser à la fois la performance et la robustesse. La parade est darwinienne : tolérer un peu d'inefficacité, d'hétérogénéité, de redondance et de lenteur élargit l'espace de viabilité. Au champ, semer un couvert multi-espèces coûte un peu de rendement mais sécurise l'ensemble. Le temps long, assumé, permet au système de gagner en robustesse sous le stress, jusqu'à devenir « antifragile ».
Illustration : Fig. C7-A · C7 — Piège de la performance → Robustesse par les contreperformances…
Science
- Piège de la performance (F2) : Point de départ : boucle crise → besoin de contrôle → performance → fragilité → crise
→ fiche #222 (pivot) - compromis performance/robustesse (F2) : Compromis performance/robustesse (Hamant) : un système ne peut pas maximiser à la fois performance et robustesse
→ fiche #113 · fiche #222 (pivot) - contreperformances sélectionnées (F2) : La solution darwinienne : inefficacité, hétérogénéité, redondance, lenteur élargissent l'espace de viabilité
→ fiche #1 · fiche #15 - couvert multiespèces (P2) : Traduction agronomique : diversité spécifique = contreperformance productive (rendement unitaire moindre, robustesse systémique supérieure)
→ fiche #18 - Efficience d'utilisation du carbone (S2) : Le sol diversifié est "inefficace" (CUE variable) mais robuste — la redondance fonctionnelle microbienne absorbe les perturbations
→ fiche #65 - chronoséquence de transition (P5) : Le temps long comme contreperformance assumée — 4 phases, objectif +0,1% MO/an vs résultat immédiat
→ fiche #260 (pivot) · fiche #357 - Antifragilité (F2) : Le système gagne en robustesse sous stress — propriété émergente des contreperformances accumulées
→ fiche #113 (pivot) - sobriété comme produit de sortie (F2) : Output : la sobriété émerge naturellement du système robuste, elle n'est plus une contrainte d'entrée
→ fiche #94 · fiche #260
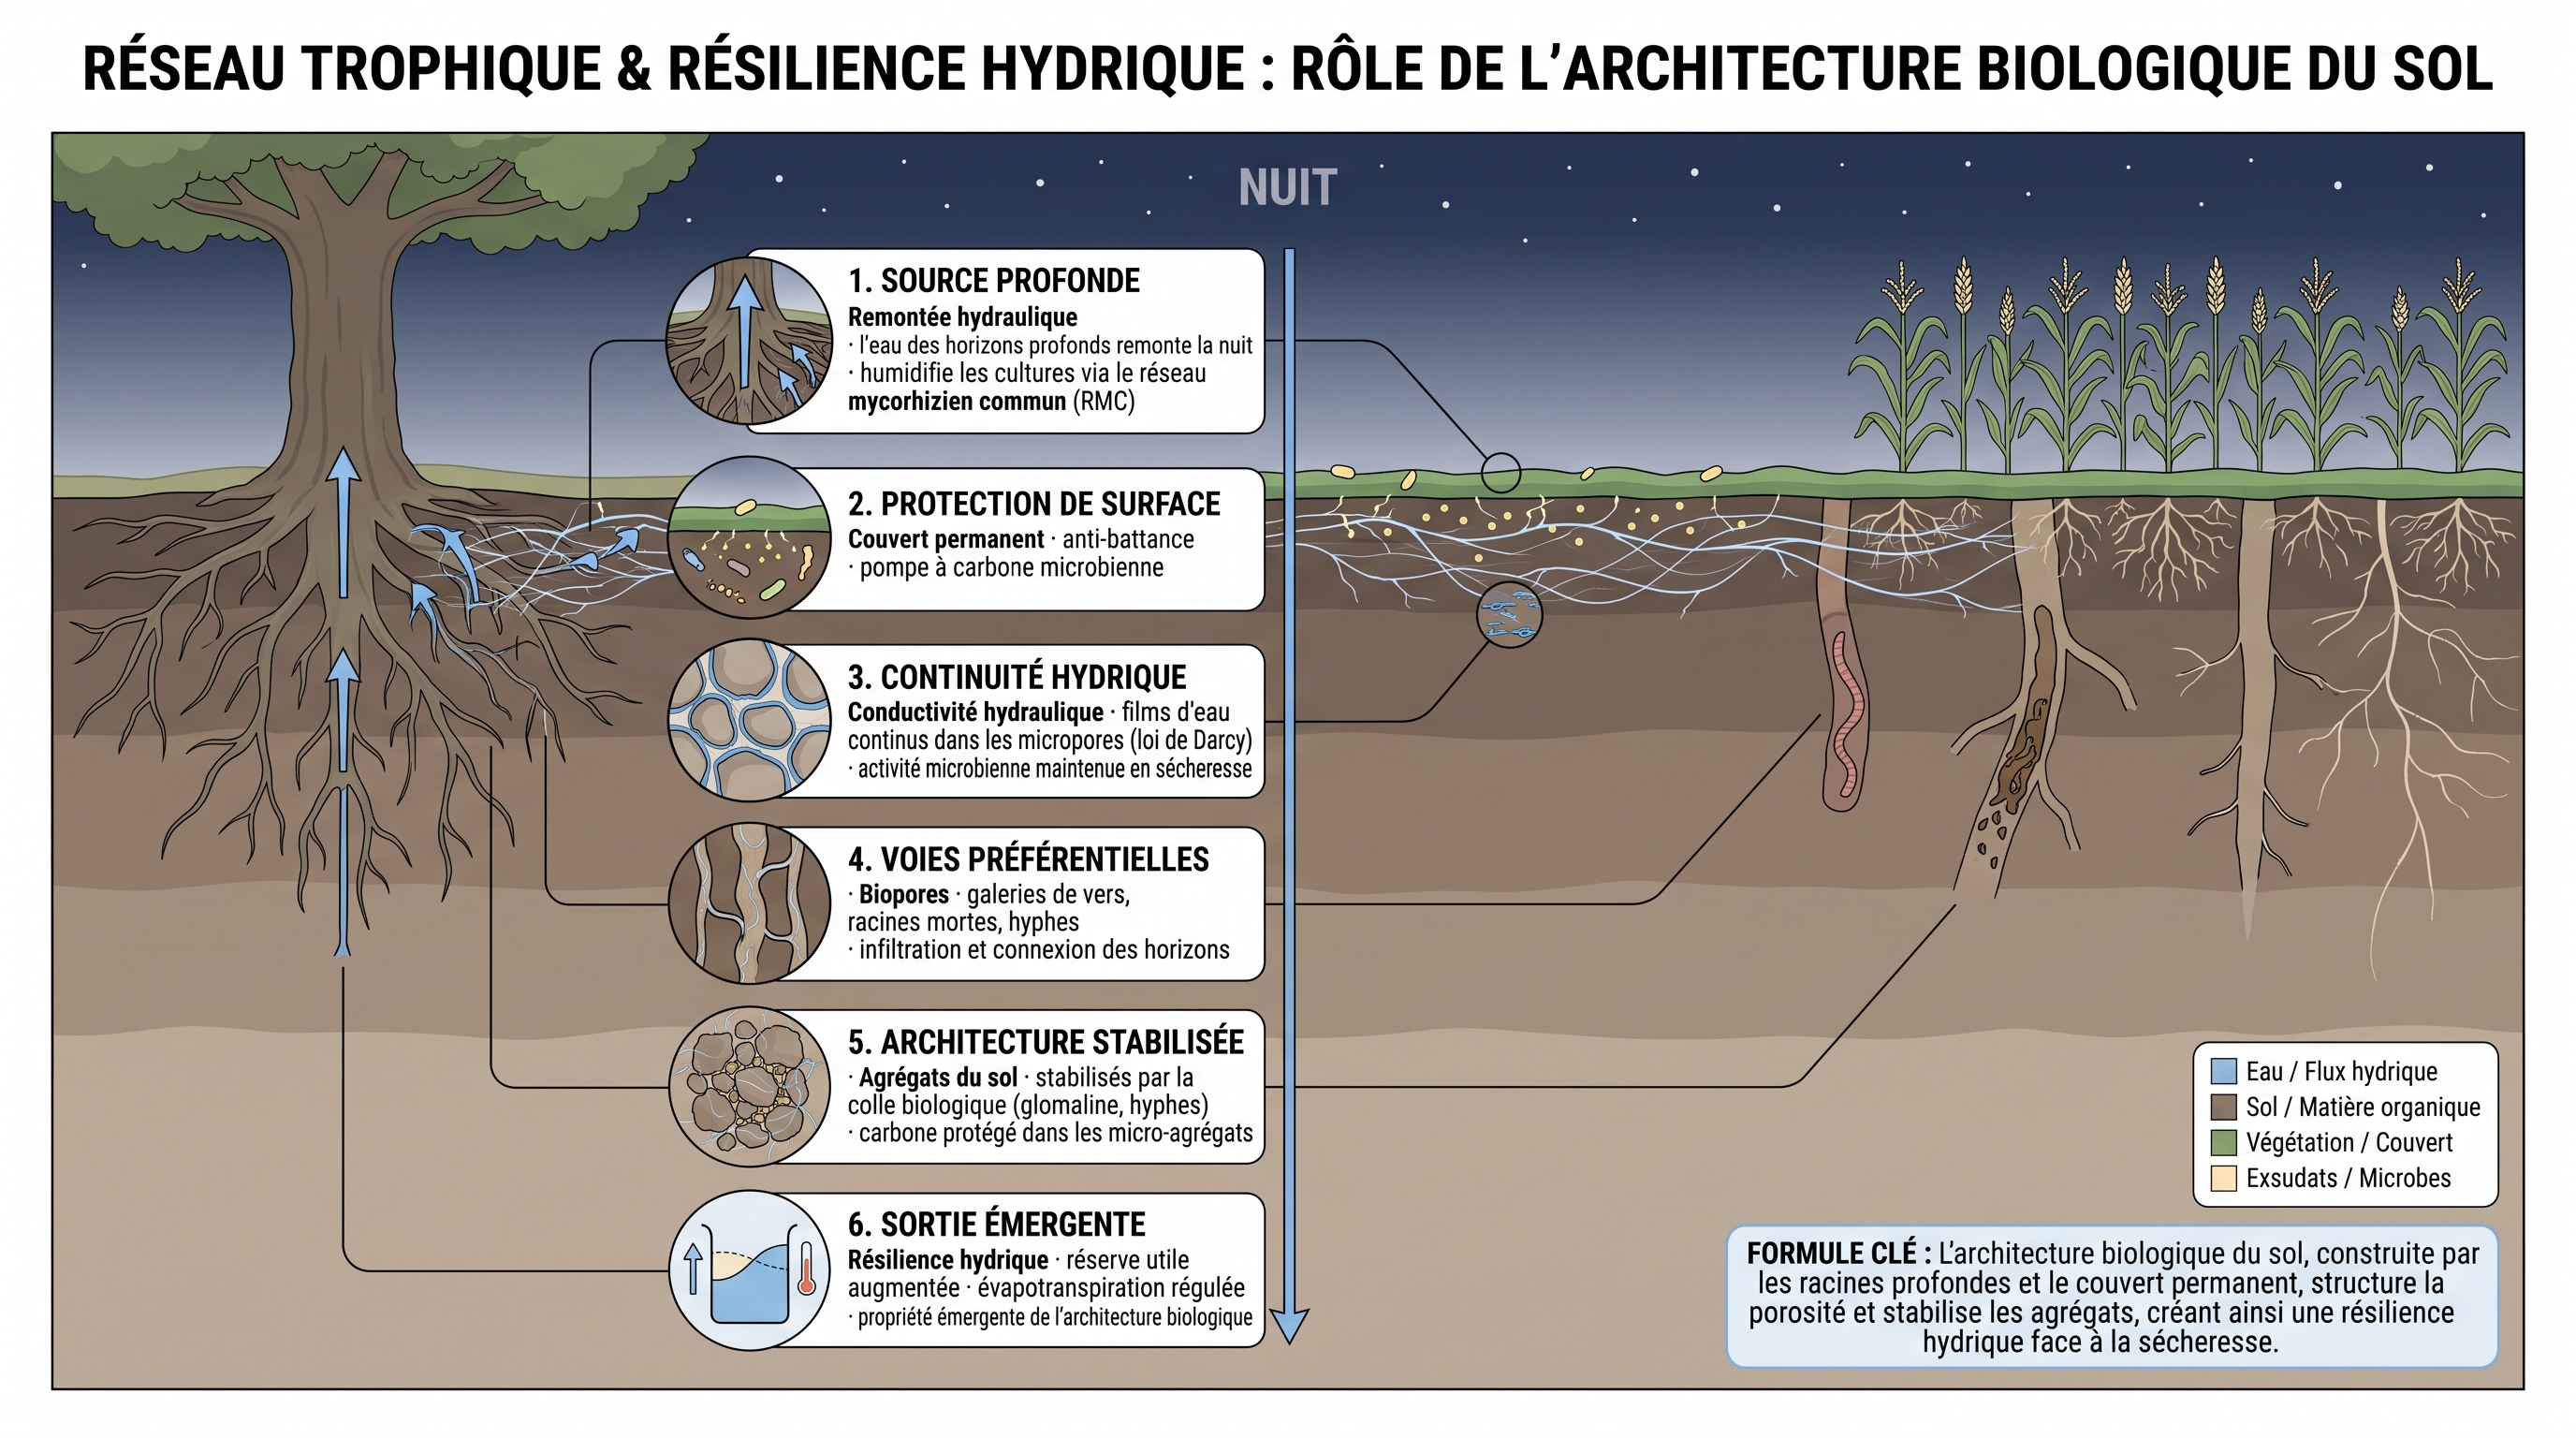
C8 : Hydraulic lift → Architecture du sol → Résilience hydrique
Argument
L'arbre ne fait pas que puiser l'eau du sol : la nuit, il en remonte une partie vers la surface pour irriguer ses voisins. Les racines profondes redistribuent cette eau vers les racines des cultures adjacentes — c'est la remontée hydraulique. S'y ajoute le couvert permanent, qui protège le sol et nourrit la vie microbienne. Cette eau entretient les films d'eau des micropores où vivent les micro-organismes ; les galeries des vers et des racines mortes (biopores) la conduisent en profondeur, tandis que sécrétions microbiennes et fongiques cimentent les agrégats, mottes stables qui retiennent carbone et porosité. Le tout forme un sol capable d'amortir les sécheresses. Prudence : le lien complet entre cette redistribution d'eau et la structuration du sol demande encore à être précisé.
Illustration : Fig. C8-A · C8 — Hydraulic lift → Architecture du sol → Résilience hydrique…
Science
- remontée hydraulique (P4) : L'arbre redistribue l'eau des horizons profonds vers la surface la nuit (hydraulic lift), humidifiant la rhizosphère des cultures adjacentes via le CMN agroforestier
→ fiche #85 - Couvert permanent (P2) : En complément de l'eau profonde redistribuée par l'arbre, le couvert végétal permanent protège la surface (anti-battance) et alimente la pompe à carbone microbienne qui nourrit la vie structurant le sol — les deux pratiques agroforestières/ACS sont les sources amont de l'architecture biologique
→ fiche #85 - Conductivité hydraulique (S0) : L'eau redistribuée et la surface protégée par le couvert alimentent les films d'eau des micropores, habitat du microbiome — la continuité hydraulique (loi de Darcy) maintient l'activité microbienne même en sécheresse
→ fiche #85 · fiche #87 - biopore (S0) : Les biopores (galeries de vers, racines mortes, hyphes) créent des voies de flux préférentiel qui améliorent l'infiltration et connectent les horizons
→ fiche #35 · fiche #85 - Agrégats du sol (S1) : Les agents biologiques (EPS, glomaline, hyphes) stabilisent les agrégats — la hiérarchie macro/micro-agrégats protège le carbone (MAOM dans micro-agrégats) et maintient la porosité
→ fiche #11 · fiche #16 · fiche #22 (pivot) · fiche #63 +4 - résilience hydrique (S0) : Le sol structuré fonctionne comme un tampon climatique : réserve utile augmentée, hystérésis réduite, évapotranspiration régulée — la résilience hydrique est une propriété émergente de l'architecture biologique
→ fiche #23 · fiche #28 · fiche #29 · fiche #85 +1
C9 : Faune du sol → Bioturbation → Fertilité biologique
Argument
Vers de terre, collemboles et nématodes labourent le sol en permanence, remplaçant le travail mécanique par une fertilité vivante et gratuite. Les vers anéciques creusent des galeries qui aèrent le sol et font pénétrer l'eau, tout en brassant matière organique et minérale : c'est la bioturbation. Leurs déjections, les turricules, forment des mottes stables riches en microbes et en carbone. De minuscules prédateurs — protozoaires, nématodes — broutent les bactéries et libèrent l'azote qu'elles retenaient, le rendant disponible aux plantes. Cette régulation participe à l'équilibre des communautés microbiennes, sans en être l'unique ressort. Des indicateurs de terrain, comme l'indice de maturité des nématodes, en donnent une lecture globale.
Illustration : Fig. C9-A · C9 — Faune du sol → Bioturbation → Fertilité biologique : le bio-labour…
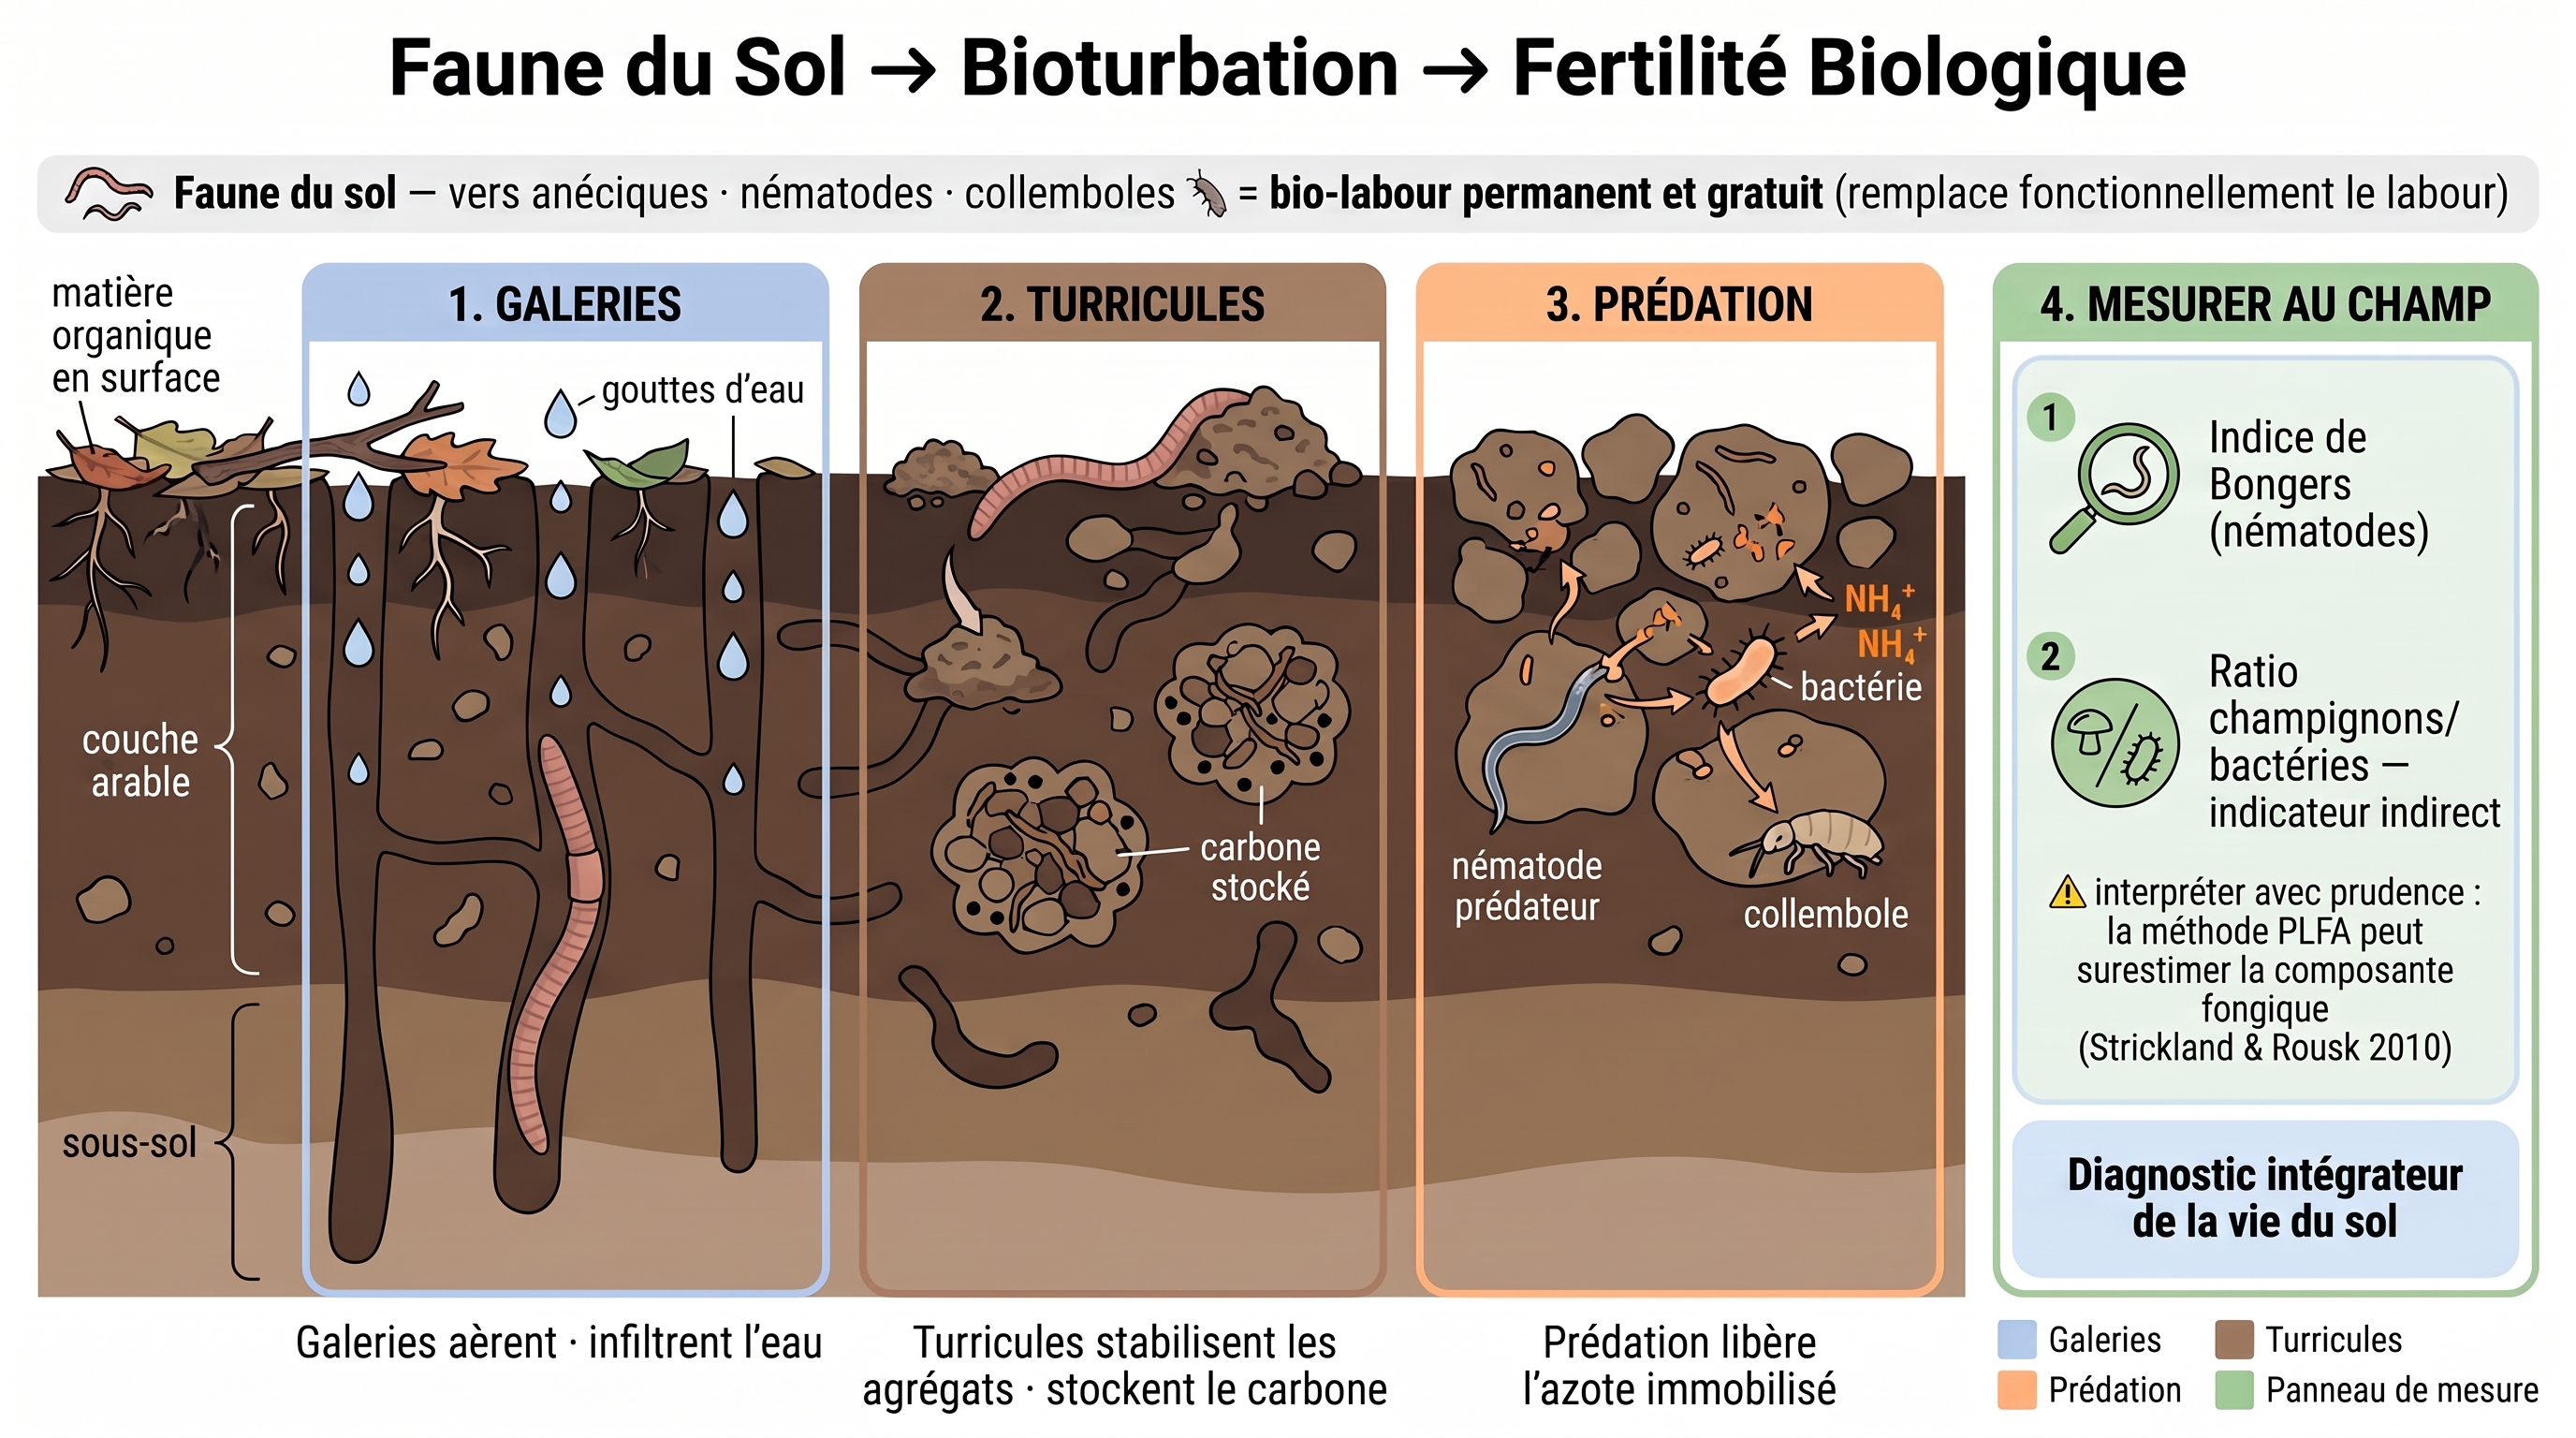
Science
- Vers de terre (V1) : Les vers anéciques créent des galeries verticales (biopores), brassent les horizons organiques et minéraux (bioturbation) et produisent des turricules enrichis en micro-organismes et en nutriments
→ fiche #63 - Bioturbation (V1) : La bioturbation par la méso/macrofaune (collemboles, acariens, nématodes) fragmente la litière, incorpore la MO dans le profil et crée une hétérogénéité spatiale de micro-habitats
→ fiche #63 - Agrégats du sol (S1) : Les turricules sont des macroagrégats stables (mucus + argile + MO) — la drilosphère est un hotspot de formation d'agrégats et de stockage de carbone
→ fiche #4 (cadre) · fiche #11 · fiche #19 · fiche #22 (pivot) +4 - biopore (S0) : Les galeries biogéniques améliorent la macroporosité, l'infiltration et la conductivité hydraulique — la structure bioturbée remplace fonctionnellement le labour mécanique (bio-tillage)
→ fiche #35 - prédation microbienne (V1) : La prédation microbienne (protozoaires, nématodes bactérivores) régule le microbiome par pression top-down : libération de N immobilisé (boucle microbienne), maintien de la diversité, sélection des guildes fonctionnelles
→ fiche #73 - guildes fonctionnelles (S2) : Le microbiome régulé par la faune atteint un équilibre copiotrophes/oligotrophes favorable — la diversité fonctionnelle (Shannon, Chao1) est le produit de la régulation faunistique
→ fiche #125 · fiche #202 (pivot) - indice de maturité de Bongers (P1) : L'indice de maturité de Bongers (nématodes) et le ratio F/B (PLFA) mesurent directement la santé de cette chaîne — diagnostic intégrateur de la bioturbation à la fertilité biologique
→ fiche #140 · fiche #267 (pivot)
C10 : Cycle de l'azote : de la fixation symbiotique à la fuite N2O
Argument
L'azote qui nourrit les plantes peut venir de l'air et des bactéries plutôt que d'une usine — à condition de ne pas le laisser fuir. Des bactéries du sol, les diazotrophes, fixent l'azote atmosphérique grâce à une enzyme, la nitrogénase, qui travaille à l'abri de l'oxygène, dans les nodules des légumineuses ou au cœur des agrégats. Cet azote entre dans la matière vivante ; des microbes le restituent au sol sous forme assimilable (minéralisation), d'autres le transforment en nitrate mobile (nitrification), d'autres encore le réduisent en gaz inerte — ou, si la réaction s'interrompt, en protoxyde d'azote, gaz à effet de serre environ 273 fois plus réchauffant que le CO₂. Les cultures de services, qui captent l'azote résiduel entre deux cultures, referment le cycle et limitent ces fuites.
Illustration : Fig. C10-A · C10 — Cycle de l'azote : de la fixation symbiotique à la fuite N2O…
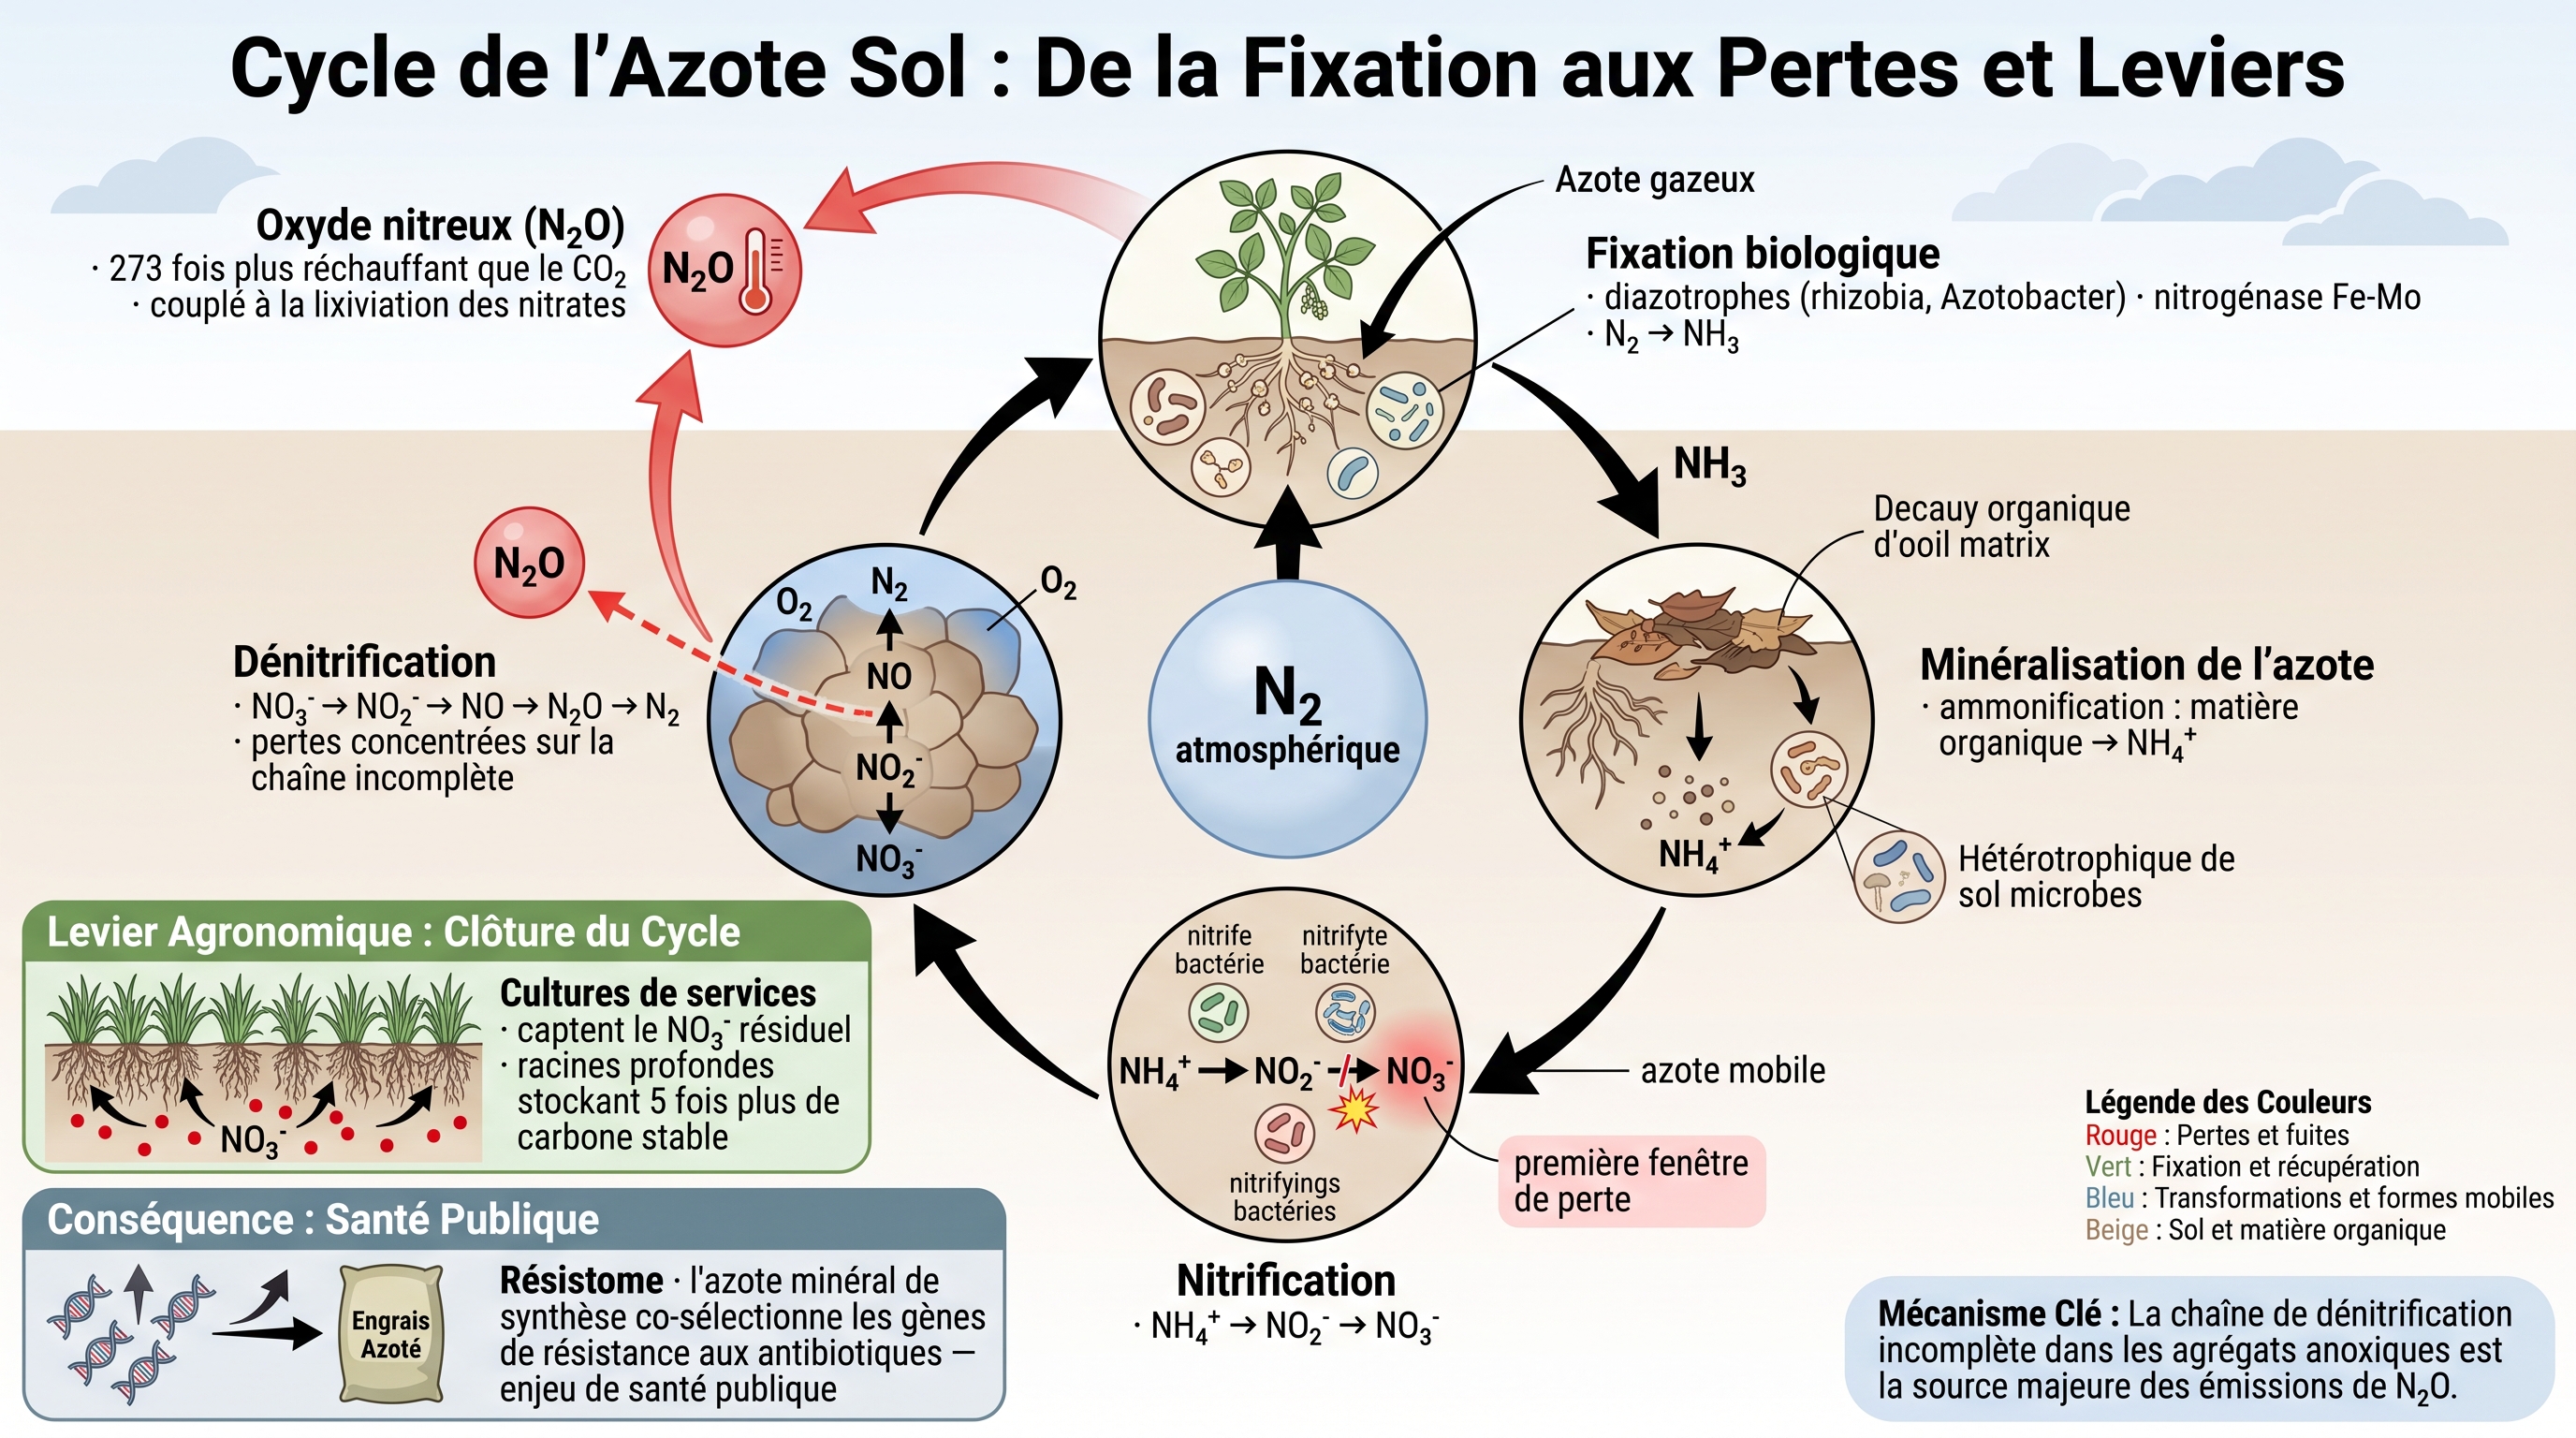
Science
- diazotrophe (S2) : Point de départ : les diazotrophes (rhizobia, Azotobacter, Clostridium) ouvrent le cycle en fixant le N2 atmosphérique dans la rhizosphère — alternative biologique au Haber-Bosch, chaque kg de N2 fixé épargnant ~2,1 kg d'urée.
→ fiche #18 · fiche #295 (pivot) - nitrogénase (S2) : Le cœur enzymatique de cette fixation est la nitrogénase, complexe Fe-Mo qui catalyse N2 → NH3 au prix d'un coût énergétique élevé. Son inhibition irréversible par l'O2 impose des microsites anoxiques (nodules, hétérocystes) et explique pourquoi la fixation reste un service rare et coûteux.
→ fiche #10 · fiche #18 - minéralisation de l'azote (S4) : Une fois le NH3 incorporé à la biomasse puis restitué au sol sous forme organique, l'ammonification prend le relais : bactéries et champignons hétérotrophes reminéralisent protéines et acides aminés en NH4+, relançant le pool d'azote assimilable.
→ fiche #10 · fiche #14 · fiche #18 · fiche #27 - nitrification (S4) : Le NH4+ ainsi libéré est oxydé par la nitrification : Nitrosomonas et AOA produisent NO2-, Nitrobacter achève en NO3-. Ce basculement aérobie rend l'azote mobile mais ouvre déjà une première fenêtre de perte, la nitrification incomplète générant du N2O.
→ fiche #10 · fiche #25 · fiche #27 · fiche #34 +1 - dénitrification (S4) : Dans les microsites anoxiques des agrégats, la dénitrification referme la boucle en réduisant NO3- → NO2- → NO → N2O → N2. Lorsque la chaîne réductive est incomplète, c'est ici que se concentre l'essentiel des pertes gazeuses.
→ fiche #81 - Oxyde nitreux (S4) : Le N2O émis matérialise la fuite environnementale : 273 fois plus réchauffant que le CO2 sur 100 ans, premier GES agricole, couplé à la lixiviation des nitrates vers les eaux. L'excès d'azote minéral et les conditions semi-anoxiques en sont les deux accélérateurs.
→ fiche #295 - cultures de services (P2) : Face à ces pertes, les cultures de services (légumineuses, couverts multi-espèces) offrent le levier agronomique : elles captent et recyclent le NO3- résiduel, nourrissent le microbiome et, via leurs racines profondes, y stabilisent le carbone — les intrants racinaires sont ~5× plus susceptibles d'être stabilisés dans la MOS qu'une masse équivalente de résidus aériens (Jackson et al. 2017).
→ fiche #42 · fiche #69 - résistome (H3) : En bout de chaîne, l'usage d'azote minéral de synthèse exerce une pression sélective qui enrichit le résistome du sol : les intrants azotés co-sélectionnent les gènes de résistance aux antibiotiques, faisant du sol agricole un réservoir majeur d'ARG et bouclant le cycle N sur un enjeu de santé publique.
→ fiche #24 (cadre)
C11 : Infiltration → Réserve utile → Résilience au stress hydrique
Argument
Face à la sécheresse, tout se joue avant le stress : dans la capacité du sol à capter, stocker et conserver l'eau de pluie. D'abord l'infiltration, qui partage la pluie entre l'eau qui pénètre et celle qui ruisselle. Les macropores creusés par les vers et les racines conduisent l'eau en profondeur, vers une porosité hiérarchisée : pores moyens qui retiennent l'eau mobilisable, pores fins qui la gardent liée. Ce stock — la réserve utile — atteint son plafond à la capacité au champ, l'eau retenue après ressuyage. La drilosphère, zone d'activité des vers, renouvelle ces galeries. La plante puise dans la réserve, ses racines acidifiant localement le sol pour solubiliser les nutriments. Enfin, l'évapotranspiration vide le stock ; un couvert permanent freine cette perte et le sécurise. Le partage de la pluie ne joue pas que sur le stock : ce qui ruisselle emporte une part de ce que le sol n'a pas retenu et peut peser sur la qualité de l'eau.
Illustration : Fig. C11-A · C11 — Infiltration → Réserve utile → Résilience au stress hydrique…
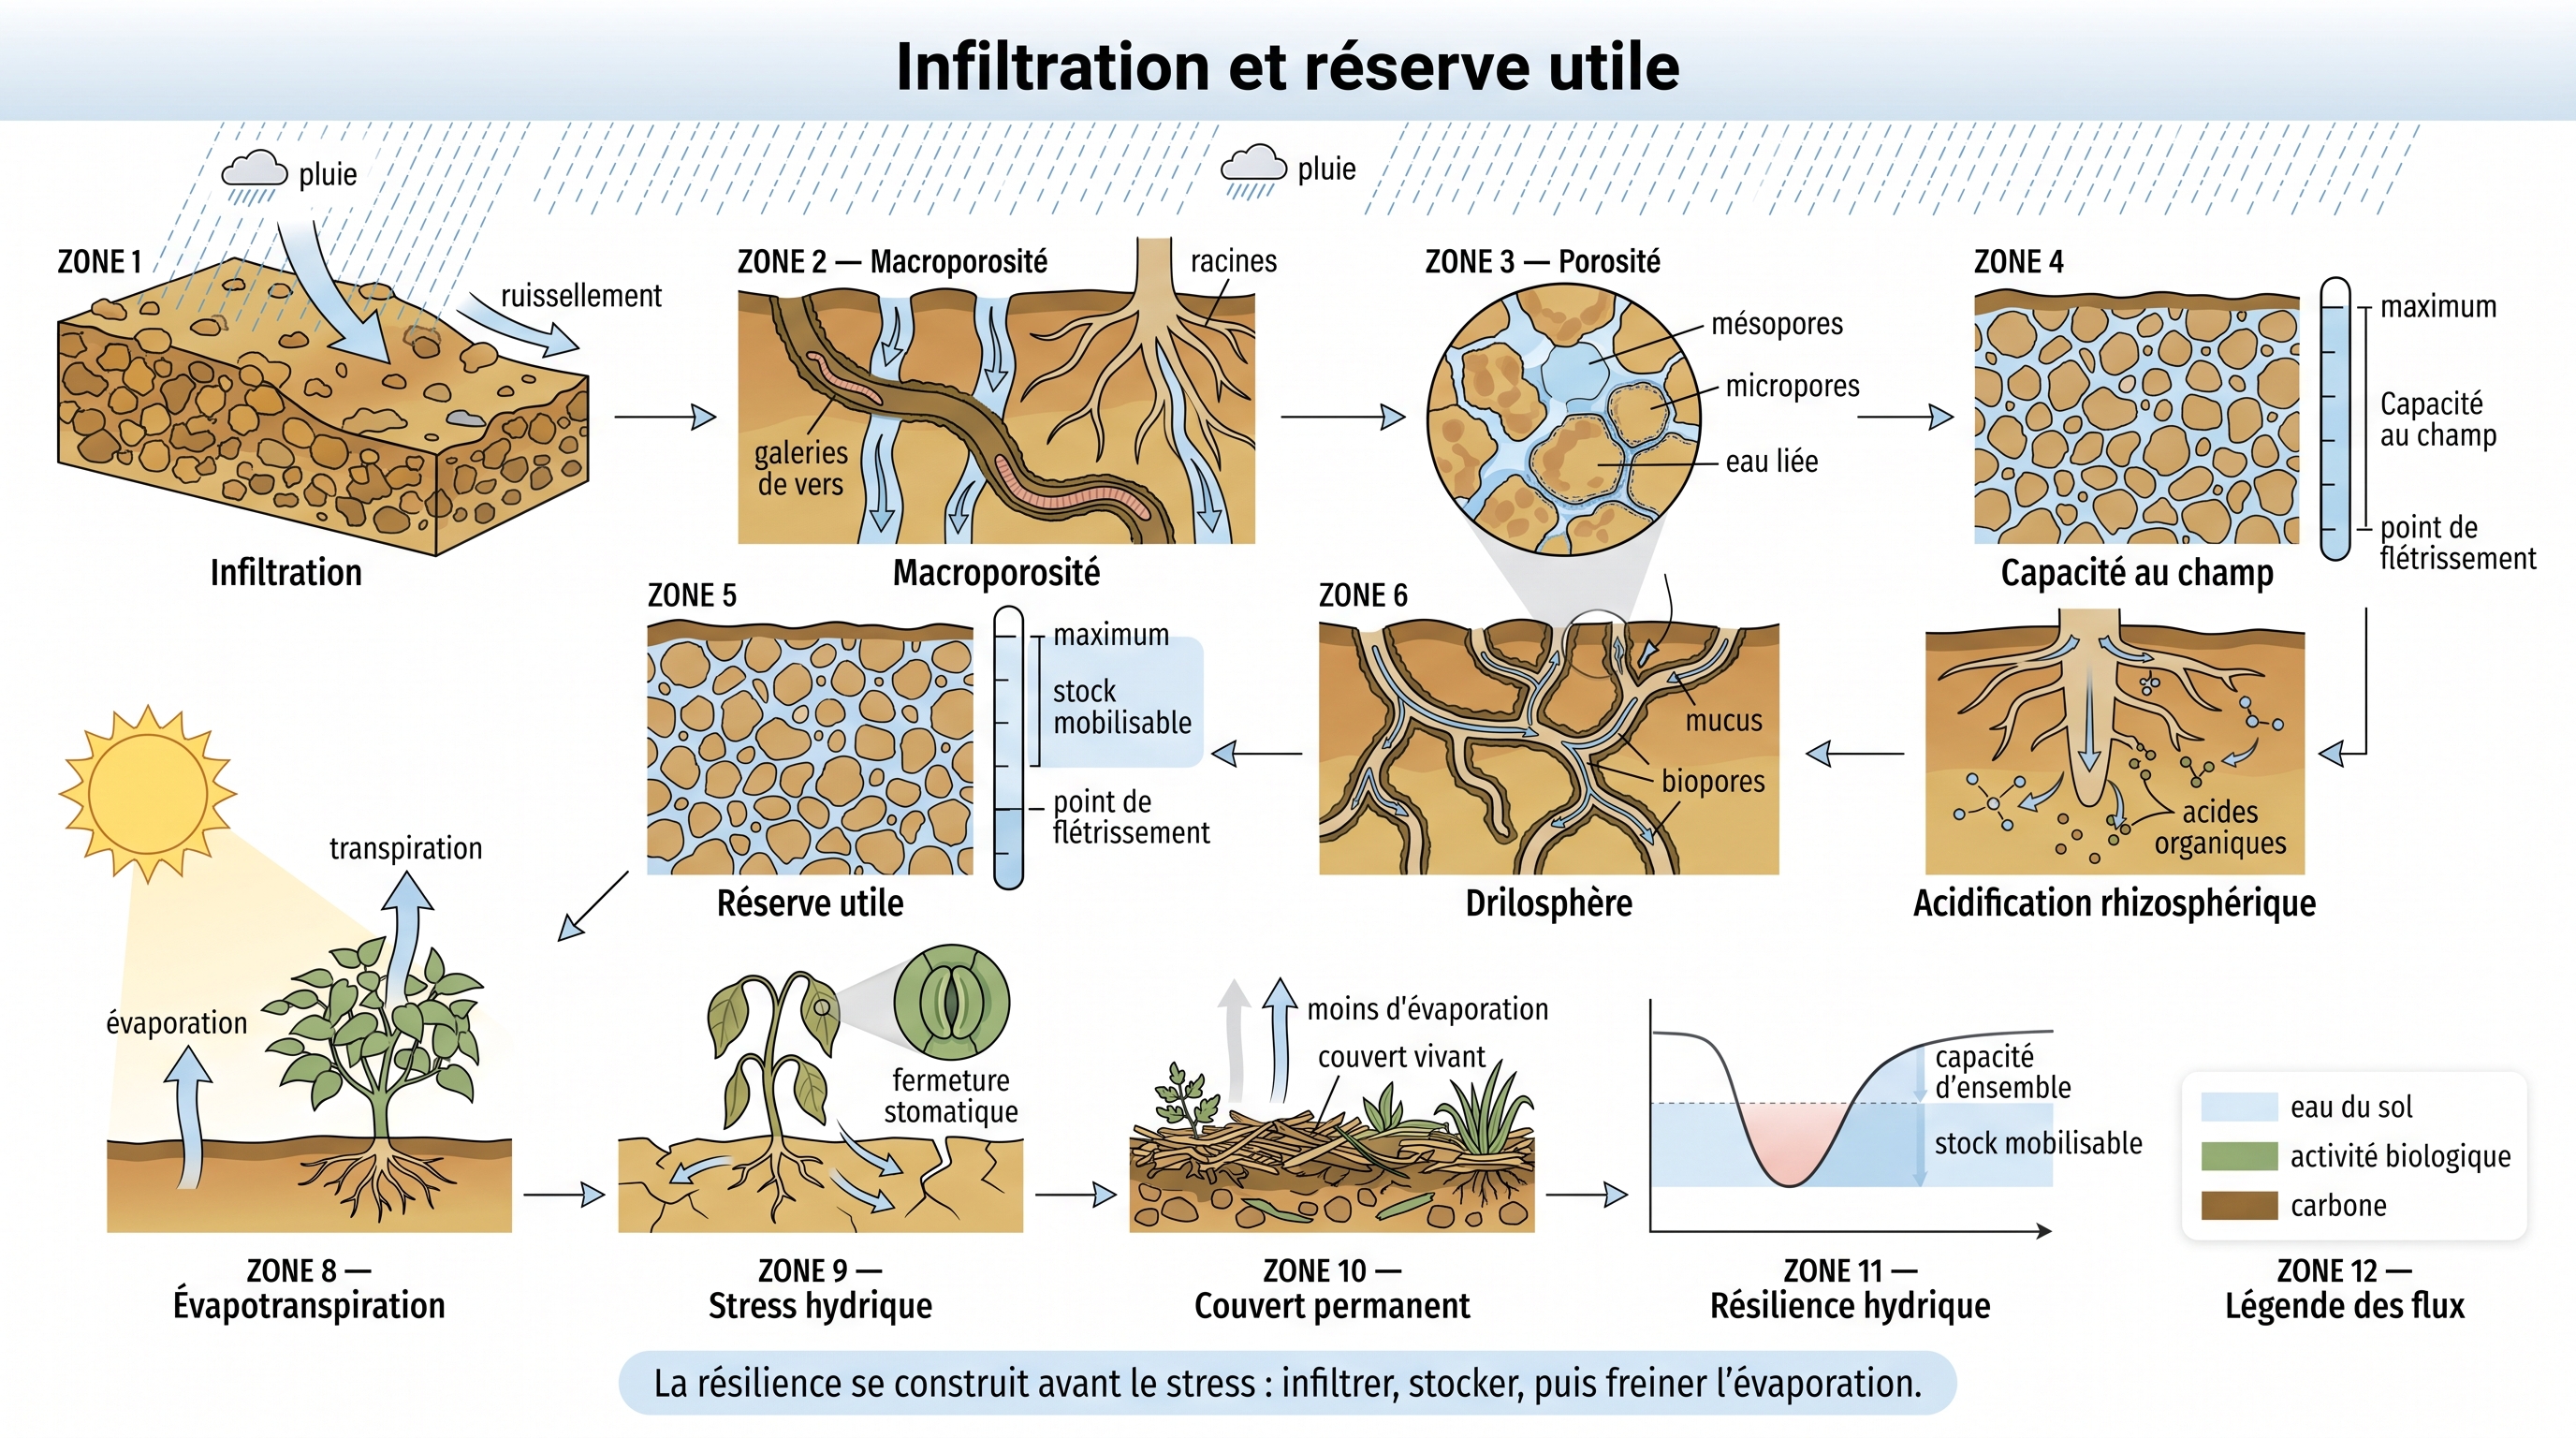
Science
- infiltration (S0) : Point de départ : à l'interface sol-atmosphère, l'infiltration détermine la partition de la pluie entre eau captée par le profil et ruissellement perdu. Premier facteur limitant en agriculture pluviale, elle conditionne tout le cycle hydrique aval.
→ fiche #24 (cadre) · fiche #63 · fiche #76 · fiche #79 (cadre) +5 - macroporosité (S0) : Une fois la surface franchie par l'eau, la macroporosité (>50 µm, créée par vers et racines) assure le transfert vertical rapide vers le profil par drainage gravitaire. Elle prolonge l'infiltration en conduisant l'eau vers les horizons de stockage.
→ fiche #25 · fiche #76 · fiche #79 (cadre) · fiche #85 +1 - porosité (S1) : Au-delà des seuls macropores, c'est la porosité hiérarchisée (macro/méso/micro) qui offre l'architecture d'accueil : les mésopores retiennent l'eau mobilisable, les micropores l'eau liée. La structure gouverne ainsi la répartition entre drainage, stockage et eau inaccessible.
→ fiche #34 · fiche #76 · fiche #79 (cadre) · fiche #85 +2 - capacité au champ (S0) : Cette architecture poreuse fixe un seuil physique : la capacité au champ (pF 2.5), teneur en eau retenue après ressuyage. Elle définit la limite supérieure de la réserve utile, c'est-à-dire du stock hydrique effectivement mobilisable par la plante.
→ fiche #23 · fiche #26 · fiche #79 (cadre) · fiche #85 - réserve utile (S0) : La porosité hiérarchisée fixe le cadre, la réserve utile en donne la mesure opérationnelle : eau retenue entre capacité au champ et point de flétrissement, elle est le stock effectivement mobilisable par la plante. Sa profondeur conditionne l'autonomie hydrique du système face aux déficits.
→ fiche #36 - Drilosphère (V1) : La drilosphère entretient et amplifie cette architecture : les galeries lombriciennes, tapissées de mucus, multiplient les biopores verticaux qui rechargent l'infiltration et connectent la surface aux horizons profonds. Le pont biologique renouvelle la macroporosité initiale.
→ fiche #63 · fiche #76 · fiche #85 - Acidification rhizosphérique (V2) : À l'autre bout de la chaîne, la plante puise dans cette réserve via l'acidification rhizosphérique : l'excrétion de protons et d'acides organiques solubilise les nutriments et oriente un prélèvement dirigé couplé au flux d'eau, transformant le stock hydrique en productivité.
→ fiche #85 - évapotranspiration (P2) : Le bilan hydrique se referme par l'évapotranspiration, somme de l'évaporation du sol et de la transpiration végétale. Sans régulation, elle vide la réserve utile construite en amont ; son contrôle est le verrou de la résilience au stress hydrique.
→ fiche #25 · fiche #85 - stress hydrique (S0) : Quand l'évapotranspiration vide la réserve utile sous le seuil de fonctionnement, la plante entre en stress hydrique : fermeture stomatique, arrêt de la croissance, découplage entre demande atmosphérique et offre du sol. Sous des extrêmes répétés, ce stress cesse d'être épisodique pour devenir le régime nominal autour duquel le système doit être repensé.
→ fiche #36 - Couvert permanent (P2) : La couverture permanente (résidus ou couvert vivant) réduit fortement l'évaporation (Blanco-Canqui et al. 2015), tempère le sol et protège l'homéostasie. Elle sécurise la réserve utile et clôt le cycle en outil agronomique de résilience climatique.
→ fiche #24 (cadre) · fiche #76 · fiche #79 (cadre) · fiche #85 - résilience hydrique (S0) : La résilience hydrique condense tout ce qui précède : infiltration entretenue, architecture poreuse vivante, réserve profonde, couvert qui régule l'évaporation. Le système ne supprime pas le stress, il absorbe les chocs hydriques et reconduit sa fonction — une capacité d'ensemble, pas une propriété locale.
→ fiche #36
C12 : Cascade redox : des microsites anoxiques aux GES
Argument
Labourer ou ne pas labourer change la chimie invisible du sol — et peut décider de la libération de gaz à effet de serre. Les métabolismes sans oxygène survivent dans les microsites anoxiques, ces poches au cœur des mottes où la respiration microbienne consomme l'oxygène plus vite qu'il n'arrive. Le potentiel d'oxydoréduction y orchestre une échelle de réactions, des microbes réduisant tour à tour nitrate, fer, sulfate ou carbone. En haut de l'échelle, la dénitrification transforme le nitrate en azote gazeux — ou, si la réaction s'arrête en chemin, en protoxyde d'azote ; plus bas, la méthanogenèse produit du méthane. Le semis direct sous couvert préserve ces agrégats et leur étagement, le labour les homogénéise, et l'effet net sur les émissions varie fortement selon le sol et le climat.
Illustration : Fig. C12-A · C12 — Cascade redox : des microsites anoxiques aux GES…
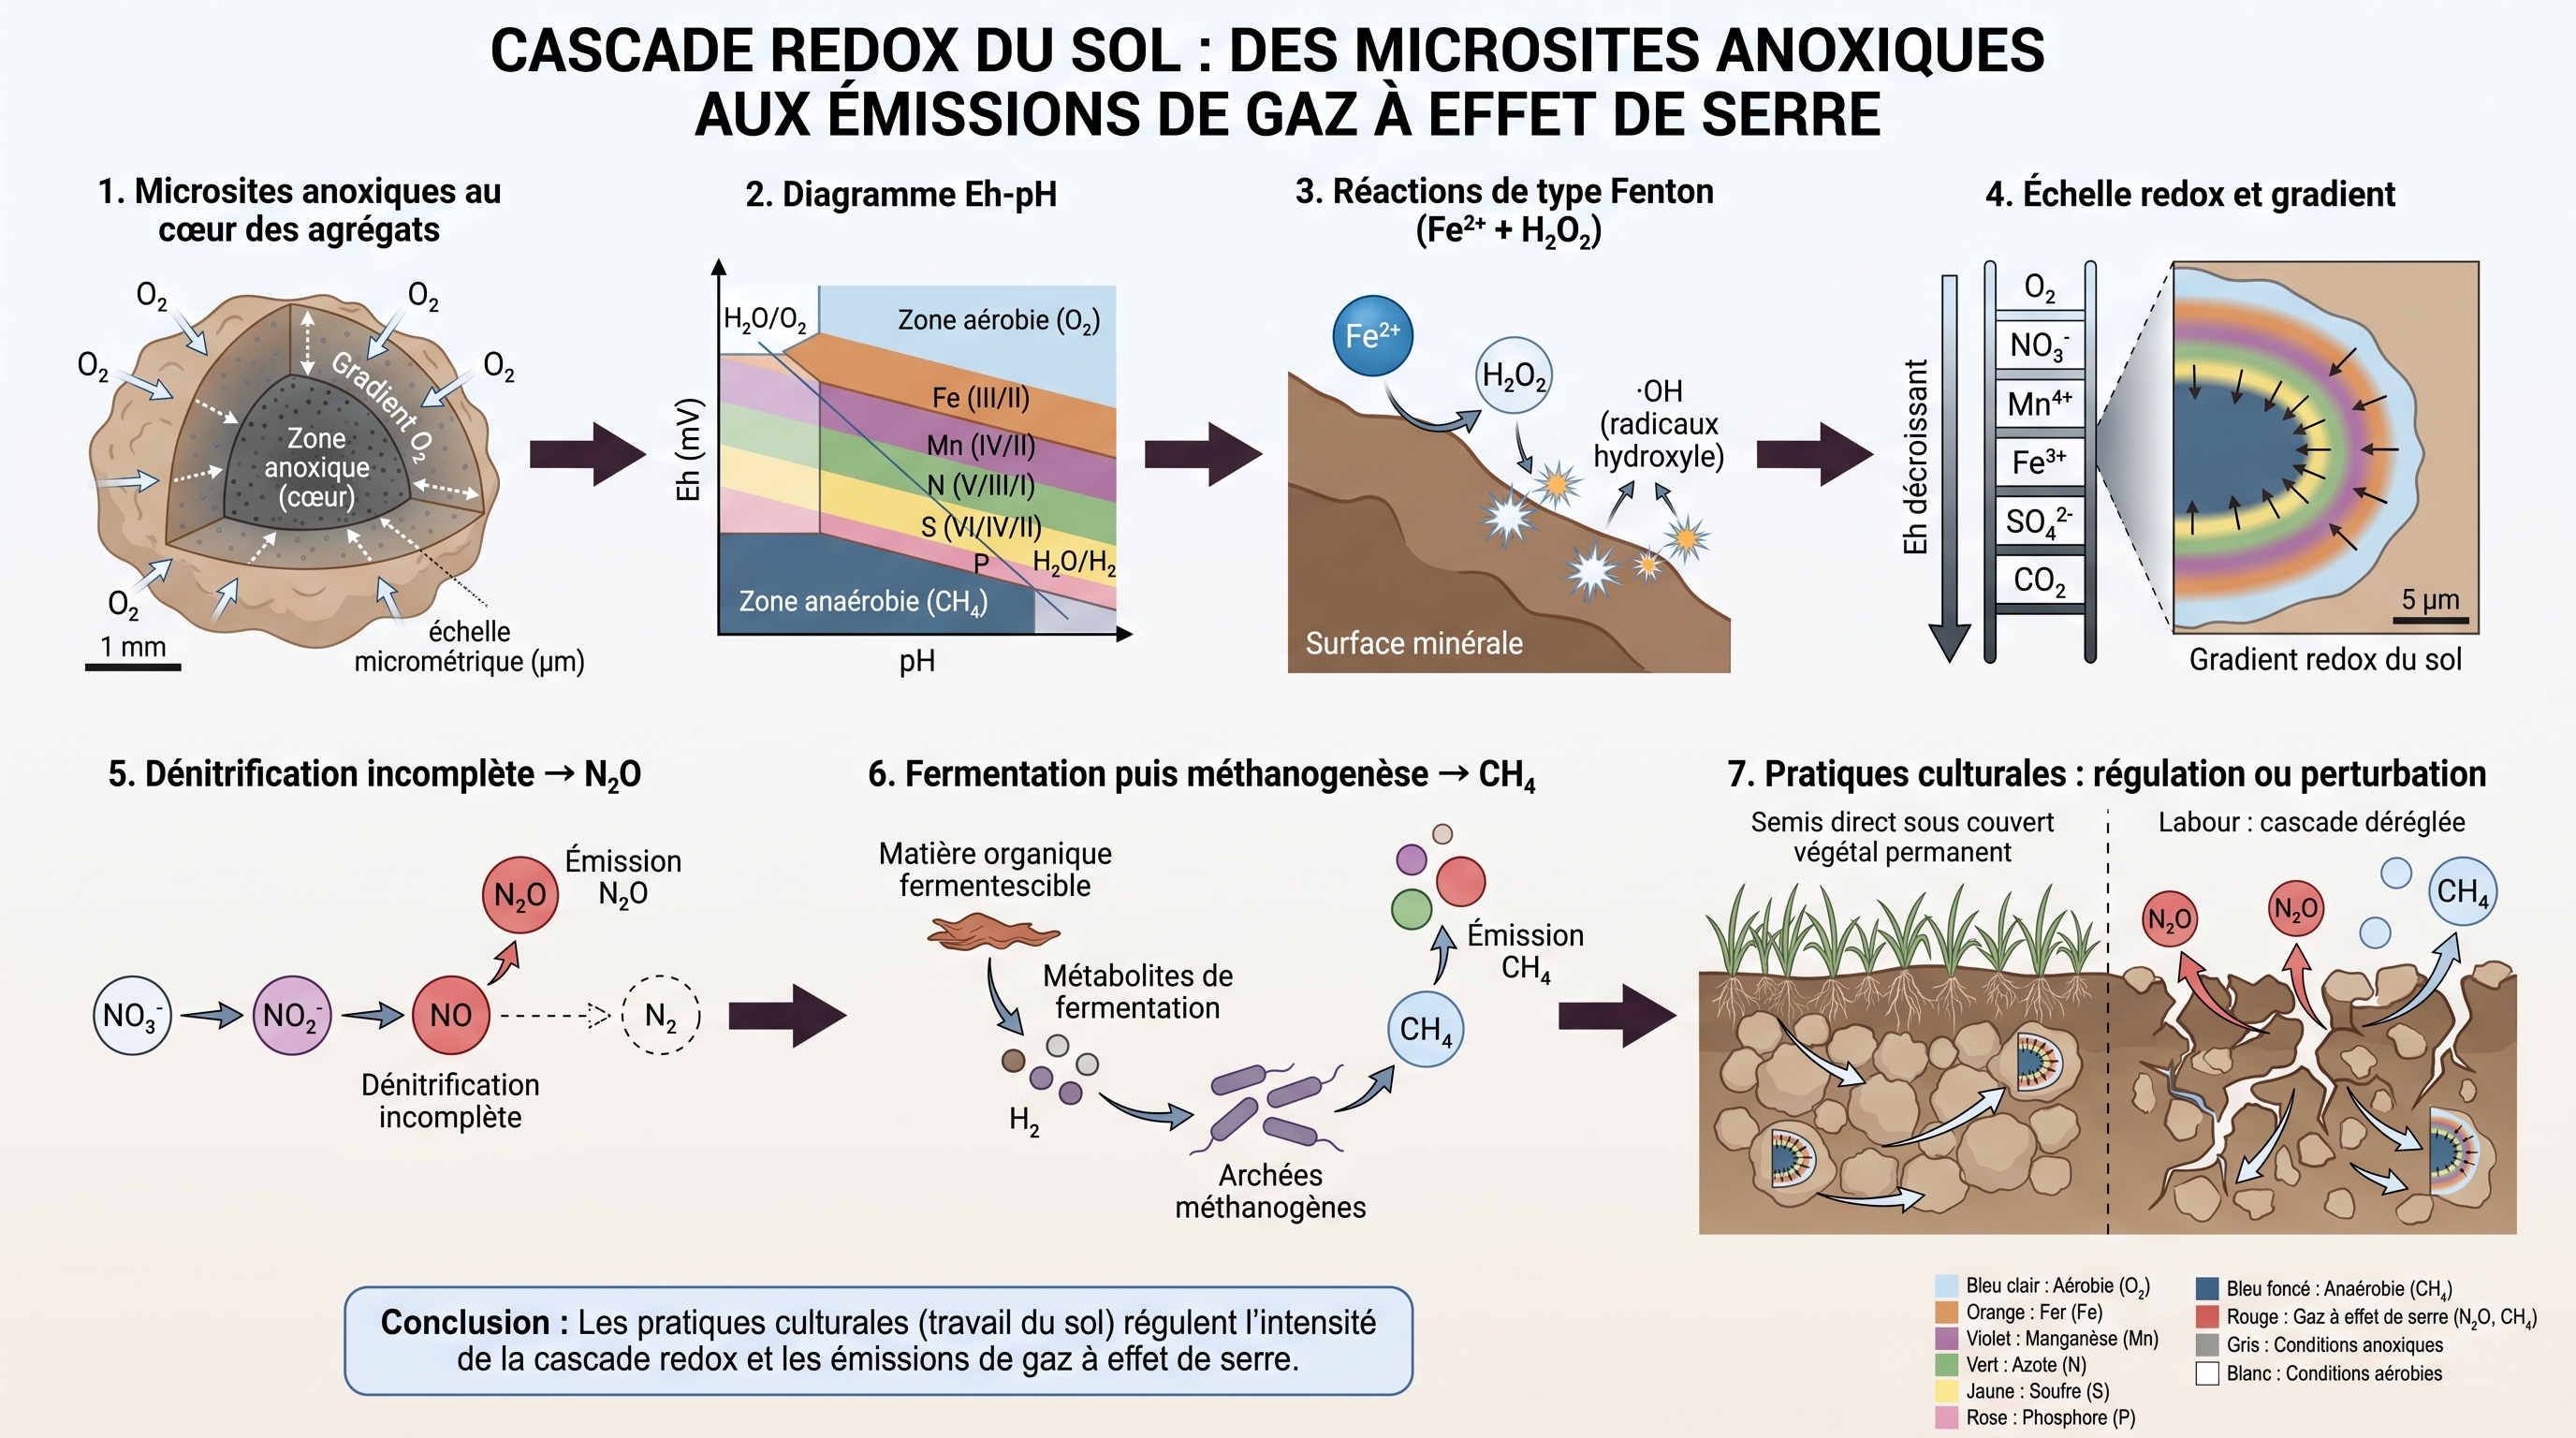
Science
- anaérobiose (F1) : Point de départ : les métabolismes anaérobies sont un héritage archéen, antérieurs à l'oxygénation de la Terre. L'anaérobiose n'est donc pas un accident local mais le socle évolutif de voies fermentaires et respiratoires alternatives toujours actives dans les sols.
→ fiche #2 · fiche #23 · fiche #28 · fiche #29 +1 - microsites anoxiques (S4) : Cet héritage anaérobie trouve son logement physique contemporain dans les microsites anoxiques : au cœur des agrégats, la respiration microbienne dépasse la diffusion d'O₂, recréant à l'échelle du micromètre les conditions archéennes et permettant la coexistence nitrification/dénitrification dans un même sol.
→ fiche #23 · fiche #27 · fiche #28 · fiche #29 - diagramme Eh-pH (S4) : Pour cartographier ce qui se passe dans ces microsites, on mobilise le diagramme Eh-pH : il prédit la spéciation des éléments redox-sensibles (Fe, Mn, N, S, P) selon le couple potentiel/acidité, et transforme l'hétérogénéité observée en grille thermodynamique lisible.
→ fiche #28 · fiche #29 - Fenton-like (S4) : Réactions Fenton-like (Fe²⁺ + H₂O₂ → Fe³⁺ + •OH + OH⁻) : oxydation abiotique par ROS hydroxyles dans les microsites redox-dynamiques. Voie abiotique de déstabilisation MOS, distincte des voies microbiennes (priming) mais fonctionnellement convergente.
→ fiche #28 (pivot) · fiche #81 - Redox ladder (S4) : La redox ladder ordonne ensuite, par Eh décroissant, les accepteurs d'électrons successifs (O₂ → NO₃⁻ → Mn⁴⁺ → Fe³⁺ → SO₄²⁻ → CO₂). Chaque barreau de l'échelle correspond à une guilde microbienne et à un cortège d'émissions gazeuses spécifique, N₂O et CH₄ en tête.
→ fiche #23 · fiche #29 - gradient redox du sol (S4) : Le gradient Eh spatialise cette échelle : sur quelques micromètres, le potentiel redox chute assez pour juxtaposer voies aérobies et anaérobies. Ce gradient est la base physique qui explique pourquoi des guildes métaboliquement incompatibles cohabitent dans le même agrégat.
→ fiche #107 - dénitrification (S4) : Parmi les voies activées par ces gradients, la dénitrification illustre la traduction directe de la cascade redox en GES : NO₃⁻ → NO₂⁻ → NO → N₂O → N₂, avec fuite de N₂O dès que la réduction est incomplète. Le pont entre physico-chimie et climat est ici explicite.
→ fiche #81 - thermodynamique fermentation (V3) : La thermodynamique de la fermentation prolonge ce raisonnement par analogie : en régime anaérobie, le ΔG libéré est faible, C et N restent engagés dans des métabolites plutôt que dissipés en CO₂ et N₂. La fermentation alimentaire devient un analogue pédagogique de ce que font les microsites anoxiques du sol.
→ fiche #23 · fiche #268 (pivot) - Méthanogenèse (S4) : Au terme de la redox ladder (palier le plus réduit, CO2/CH4), les archées méthanogènes réduisent le CO2 et les produits de fermentation en méthane — le gaz à effet de serre qui, avec le N2O de la dénitrification, justifie le titre « aux GES ».
→ fiche #27 · fiche #152 (pivot) - Semis direct sous couvert végétal permanent (P2) : Point d'arrivée agronomique : le SCV (semis direct sous couverture végétale) préserve physiquement les agrégats et donc les microsites anoxiques, garant du bon étagement de la redox ladder. À l'inverse, le labour homogénéise les conditions et dérègle la cascade, favorisant les émissions incomplètes de N₂O.
→ fiche #34 (pivot) · fiche #278
C13 : Agroforesterie : CMN, haies et pompe biologique profonde
Argument
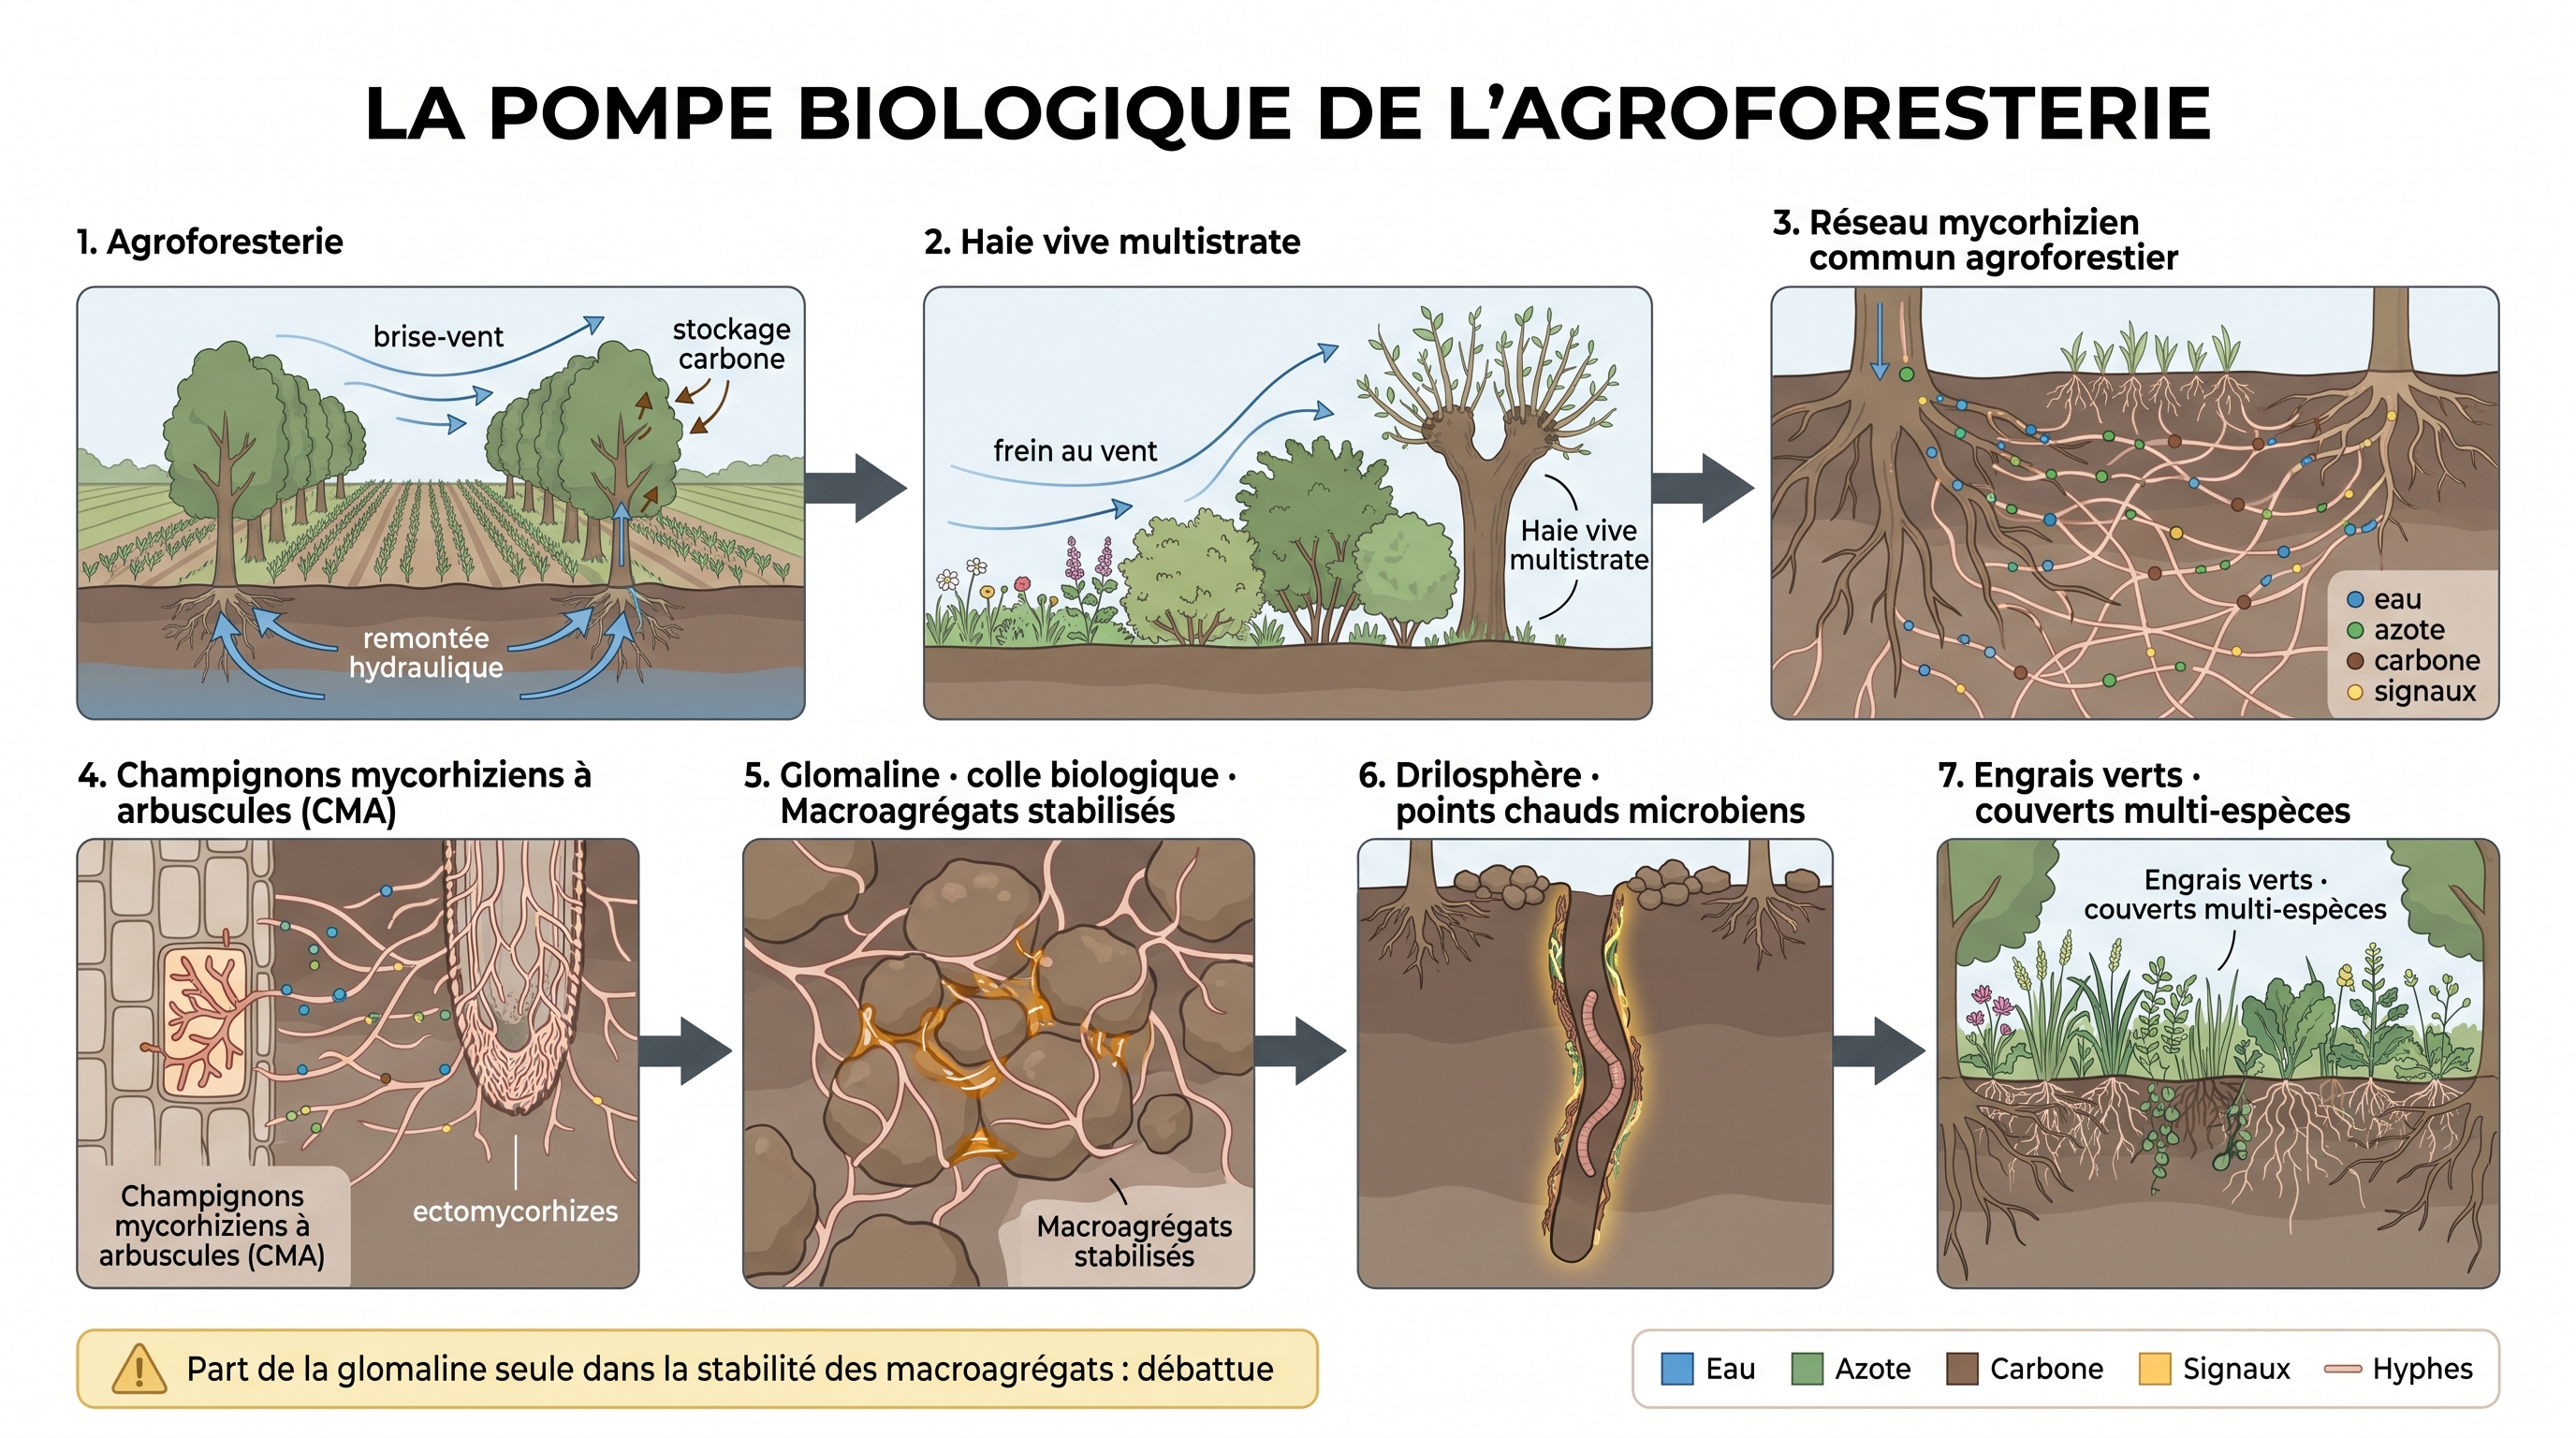
L'arbre du champ ne fait pas que couper le vent : sous terre, il tisse un réseau vivant qui cimente et fertilise le sol. Les haies multistrates et les arbres lient le paysage. Leurs racines s'associent à des champignons, les mycorhizes, qui forment un réseau reliant arbres et cultures : ils échangent phosphore et eau contre une part du carbone fixé par la plante. Ces champignons sécrètent la glomaline, une colle biologique qui participe, avec les racines fines et les sécrétions bactériennes, à la stabilité des macroagrégats. Les vers anéciques empruntent les galeries des racines ligneuses pour descendre en profondeur, y créant des foyers d'activité microbienne. Entre les lignes d'arbres, les couverts multi-espèces gardent le sol vivant : la pompe biologique tourne.
Illustration : Fig. C13-A · C13 — Agroforesterie : CMN, haies et pompe biologique profonde…
Science
- agroforesterie (P4) : Point de départ : l'agroforesterie est posée comme architecture paysagère intégratrice, introduisant l'arbre dans les systèmes cultivés pour mobiliser simultanément brise-vent, hydraulic lift, séquestration du carbone et CMN inter-espèces.
→ fiche #35 · fiche #37 · fiche #66 · fiche #85 - Haie vive multistrate (P4) : Déclinaison concrète de cette architecture : la haie multistrate (herbacée + arbustive + arborée), incluant trognes et brise-vent, constitue la structure pérenne qui matérialise l'agroforesterie et maximise les services écosystémiques au sein de la parcelle.
→ fiche #25 · fiche #31 · fiche #35 · fiche #85 - CMN agroforestier (P4) : Ces structures pérennes deviennent le support d'un CMN agroforestier particulièrement développé : les hyphes de CMA et d'ECM tissent un réseau inter-espèces qui connecte arbres et cultures, transférant carbone, azote, eau et signaux chimiques — les arbres profonds soutenant les cultures de surface en période de stress.
→ fiche #23 · fiche #31 · fiche #35 · fiche #85 - champignon mycorhizien à arbuscules (S3) : Au coeur de ce réseau, les CMA (Glomeromycota) et les ectomycorhizes à réseau de Hartig constituent les acteurs fongiques de la symbiose : ils colonisent 80% des plantes, échangent phosphore et eau contre jusqu'à 30% du carbone photosynthétique et assurent la fonctionnalité biochimique du CMN agroforestier.
→ fiche #19 · fiche #33 · fiche #34 · fiche #85 - glomaline (S3) : Les hyphes de ces CMA synthétisent la glomaline, glycoprotéine qui représente 3-5% de la MO totale du sol et dont le temps de résidence atteint 7-42 ans : elle est la colle biologique qui traduit au niveau micrométrique l'activité fongique alimentée par l'agroforesterie.
→ fiche #25 · fiche #85 - macroagrégat (S1) : Cette glomaline cimente précisément les macroagrégats (>250 µm) stabilisés par les hyphes fongiques, les racines fines et les EPS bactériens : la glomaline, avec les hyphes, les EPS bactériens et les racines fines, contribue à la stabilité des macroagrégats (l'attribution de 60-70 % à la seule glomaline est probablement surévaluée), soit l'effet structurant direct du CMN agroforestier sur l'architecture du sol.
→ fiche #11 · fiche #63 · fiche #79 (cadre) · fiche #83 (pivot) +1 - Drilosphère (V1) : La drilosphère prolonge ce maillage biologique en profondeur : les vers anéciques empruntent les galeries laissées par les racines ligneuses pour descendre le long du profil, créant des hotspots microbiens 10 à 100 fois plus actifs qui relient l'agrégation fongique de surface aux horizons profonds colonisés par l'arbre.
→ fiche #63 · fiche #76 · fiche #85 - engrais verts (P2) : Pour boucler le système, les couverts végétaux multi-espèces assurent la continuité spatiale horizontale en excluant le sol nu entre les lignes d'arbres : ils alimentent le microbiome en exsudats, restructurent par leurs racines et garantissent que la pompe biologique activée par l'agroforesterie fonctionne sans interruption.
→ fiche #4 (cadre) · fiche #35 · fiche #65 · fiche #76 +2
C14 : Signalisation holobionte : du quorum sensing à l'immunité végétale
Argument
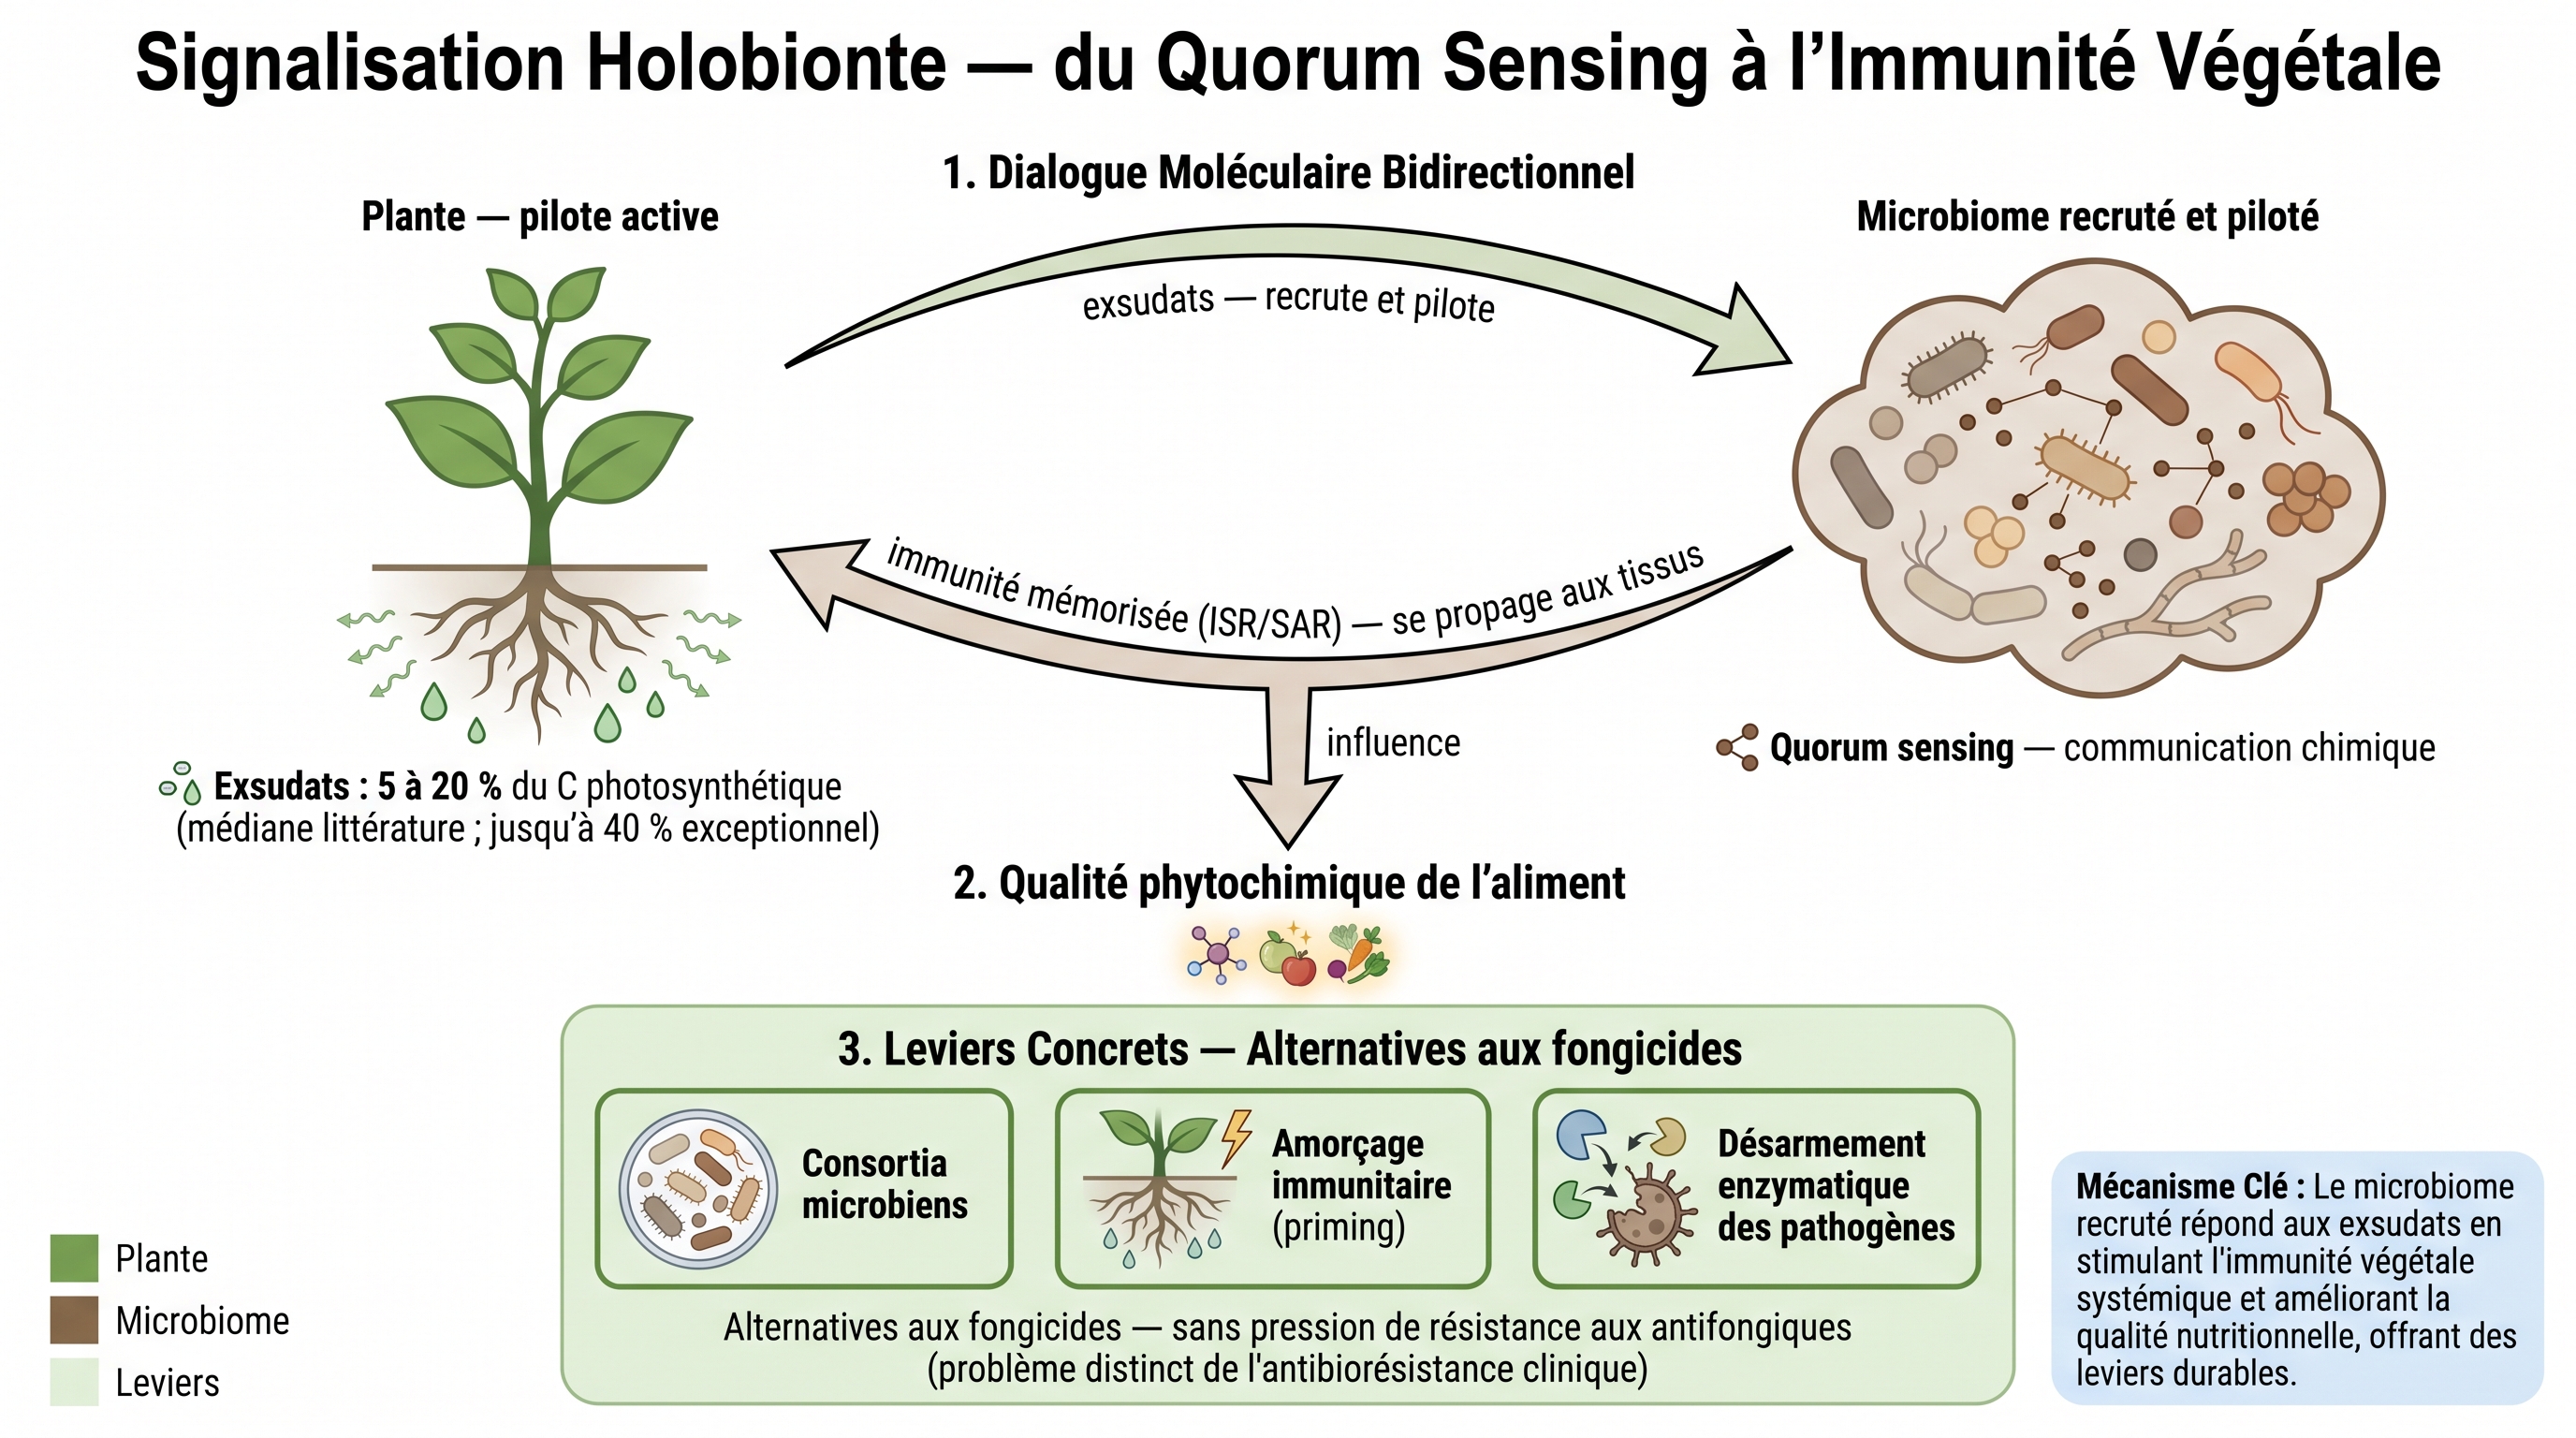
La plante n'est pas passive : elle dialogue chimiquement avec les microbes de ses racines et arme ainsi son immunité. Plante et microbiome forment une unité, l'holobionte. La plante envoie dans le sol des exsudats racinaires — une fraction de son carbone — dont la composition attire sélectivement les microbes utiles. Les bactéries recrutées coordonnent leurs actions par signaux chimiques de densité (quorum sensing) et par des composés volatils. Quand la plante perçoit des fragments microbiens, elle déclenche ses défenses, comme un entraînement immunitaire ; les microbes bénéfiques induisent une résistance qui se propage à toute la plante, renforcée par une mémoire acquise après alerte. Cette protection remonte jusqu'aux tissus, une piste pour réduire la dépendance aux fongicides.
Illustration : Fig. C14-A · C14 — Signalisation holobionte : du quorum sensing à l'immunité végétale…
Science
- Holobionte (V2) : Point de départ : poser l'holobionte comme cadre opératoire — la plante et son microbiome forment une entité biologique unique dont l'hologénome est sélectionné d'un bloc. C'est dans cette unité que se joue toute la signalisation qui va suivre.
→ fiche #21 (cadre) · fiche #79 (cadre) - exsudats racinaires (V2) : Première traduction matérielle du cadre holobionte : la plante investit 5 à 40% du carbone photosynthétique dans les exsudats racinaires, qui deviennent le langage chimique de la rhizosphère et le support physique du dialogue hôte-microbiome.
→ fiche #22 (pivot) · fiche #24 (cadre) · fiche #26 · fiche #27 +5 - Recrutement sélectif (V2) : Les exsudats ne sont pas diffusés au hasard : leur composition module le recrutement sélectif (SIREM) des micro-organismes utiles. La plante passe ainsi du statut d'hôte passif à celui de prescripteur actif de son microbiome.
→ fiche #1 · fiche #19 · fiche #23 · fiche #25 +5 - détection du quorum (V2) : Une fois la communauté recrutée, les bactéries coordonnent leur expression génétique par quorum sensing en fonction de leur densité. C'est la couche de communication interne qui transforme un assemblage microbien en collectif fonctionnel capable de répondre à la plante.
→ fiche #2 · fiche #10 · fiche #14 · fiche #15 +5 - Composés organiques volatils (V2) : Au quorum sensing s'ajoutent les composés organiques volatils, qui étendent la communication au-delà du contact direct : plantes, champignons et bactéries dialoguent à distance, couplant rhizosphère et phyllosphère dans un même réseau signalétique.
→ fiche #12 · fiche #16 · fiche #62 - élicitation par débris microbiens (V2) : Ces signaux chimiques trouvent un amplificateur dans l'élicitation par débris microbiens : les MAMPs (chitine, peptidoglycane, LPS) sont reconnus par la plante et déclenchent ses voies de défense, comme une mémoire immunitaire entraînée par exposition contrôlée.
→ fiche #32 · fiche #33 · fiche #74 · fiche #78 - vésicule extracellulaire (V2) : Couche de communication cross-règne (Shelake 2026, H4) : plantes, champignons et bactéries échangent des EV contenant sncRNA et protéines. Cette modalité moléculaire s'ajoute au QS et aux VOCs, constitue une couche de contrôle évolutive des interactions PM. Bacterial EVs peuvent délivrer dsRNA anti-virulence dans cellules fongiques (Niño-Sánchez 2025 : P. putida + B. subtilis vs V. dahliae) — alternative écologique aux fongicides.
→ fiche #22 · fiche #290 - Résistance systémique induite (V2) : Le recrutement microbien actif induit la résistance systémique induite (ISR), voie jasmonate/éthylène pilotée par les rhizobactéries bénéfiques — pendant de la SAR mais déclenché par le microbiome et non par l'agent pathogène. C'est le maillon le plus aligné avec le récit recrutement→immunité.
→ fiche #32 · fiche #199 (pivot) - Résistance systémique acquise (V2) : L'élicitation active la SAR, résistance systémique acquise par la voie de l'acide salicylique : la protection se propage aux tissus distaux, avec PR-protéines et polyphénols. La plante passe d'une défense locale à une immunité végétale mémorisée et généralisée.
→ fiche #1 · fiche #13 · fiche #15 · fiche #21 (cadre) +6 - phyto-élicitation par le sol (H1) : Dernière traversée : la phyto-élicitation par le sol prolonge la SAR jusqu'à l'assiette. Les polyphénols, flavonoïdes et antioxydants stimulés par le microbiome passent dans la récolte et nourrissent l'immunité humaine, bouclant le mécanisme holobionte sol-plante-mangeur.
→ fiche #32 · fiche #78 (pivot)
C15 : Valorisation des MAFOR : BRF, compost, biochar et stabilisation de la MO
Argument
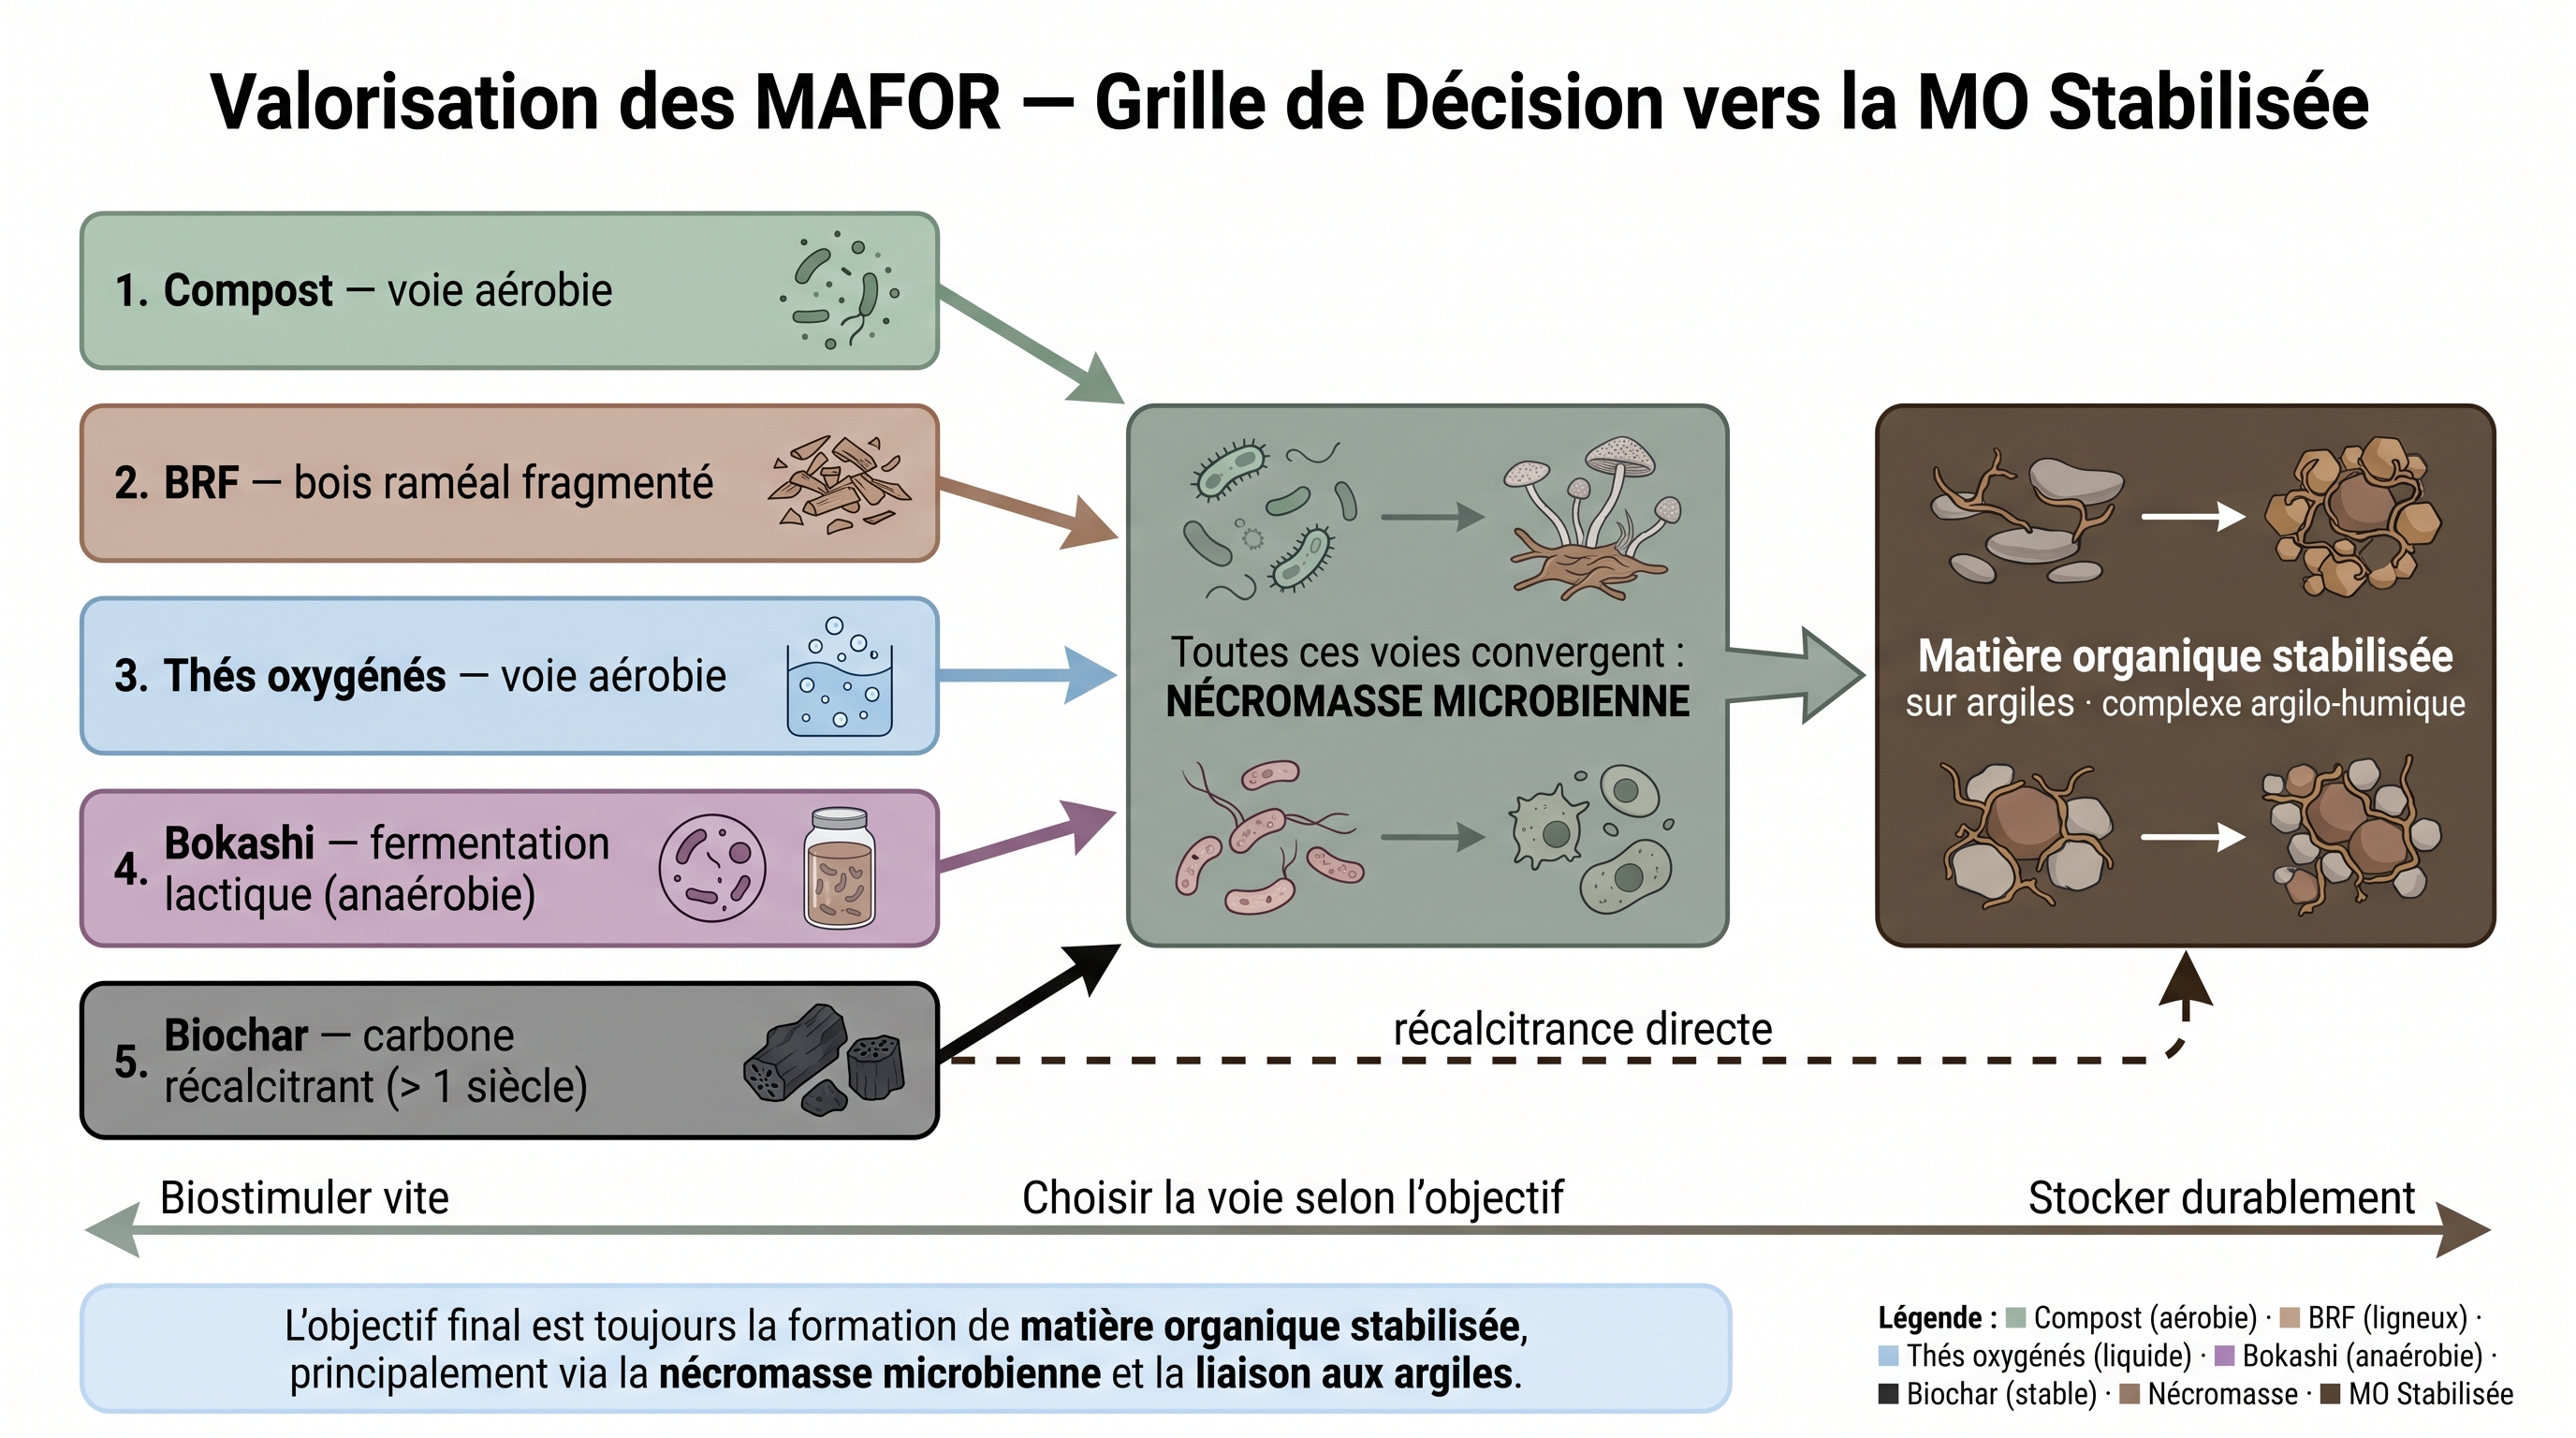
Rendre au sol ce qu'on lui prend peut biostimuler vite ou stocker longtemps : tout dépend de la voie choisie. Le compostage aérobie, né dans les années 1920-30 avec le cycle d'Indore d'Albert Howard, a montré qu'une fertilité durable se construit sans engrais de synthèse. Il se décline en compost mûr, bois raméal fragmenté et thés de compost oxygénés ; une voie sans air fermente les déchets (bokashi) en préservant mieux carbone et azote. Ces apports gagnent à être enrichis de champignons et de bactéries utiles, à condition que le sol soit réellement déficient. Toutes convergent : ce sont surtout les micro-organismes morts, la nécromasse, qui alimentent la matière organique stable fixée sur les argiles. Le biochar (matière carbonisée) ajoute un carbone durable à l'échelle du siècle.
Illustration : Fig. C15-A · C15 — Valorisation des MAFOR : BRF, compost, biochar et stabilisation de la MO…
Science
- Cycle d’Indore (F1) : Point de départ historique : le Cycle d'Indore d'Albert Howard (années 1920-30) fonde le compostage aérobie moderne et démontre à grande échelle qu'une fertilité durable peut être reconstruite sans intrants de synthèse — matrice de toutes les MAFOR.
→ fiche #97 · fiche #274 (cadre) - compostage (P3) : Héritage agronomique direct d'Indore : le compostage contrôlé (phases thermophile/mésophile/maturation) se décline en préparations opérationnelles — compost mûr, BRF, thés de compost oxygénés — qui stabilisent la MO fraîche par voie aérobie avant retour au sol.
→ fiche #2 · fiche #24 (cadre) · fiche #63 · fiche #67 +1 - fermentation anaérobie (V3) : Bifurcation vers la voie anaérobie : le bokashi et la lactofermentation offrent une alternative conservatoire (C et N mieux préservés qu'en compostage aérobie), enrichie de métabolites bioactifs (acide 3-phényllactique, enzymes) et de minéraux chélatés — les « lunch boxes » microbiennes.
→ fiche #2 · fiche #15 · fiche #25 · fiche #29 +1 - inoculum mycorhizien (P3) : Vivification des apports : qu'elles soient aérobies ou anaérobies, ces MAFOR gagnent en efficacité lorsqu'on y adjoint des inocula biologiques (CMA, rhizobactéries), à condition que le sol soit réellement déficient — le vivant ajouté prolonge l'effet des matières apportées.
→ fiche #27 · fiche #28 · fiche #29 · fiche #30 - nécromasse microbienne (S4) : Convergence vers la nécromasse microbienne : toutes ces voies (compostage aérobie, bokashi/lactofermentation, photofermentation, hydrolyses, fermentation acétique) produisent de la nécromasse microbienne — fraction des micro-organismes morts et de leurs résidus — qui constitue, sous le paradigme Soil Continuum Model (Lehmann & Kleber 2015, Cotrufo 2019, Liang 2017), la voie dominante de stabilisation du carbone et l'apport prépondérant à la matière organique stable du sol (la nécromasse microbienne contribuant proportionnellement plus que la nécromasse végétale au pool stabilisé).
→ fiche #11 · fiche #65 - biochar (S4) : Parallèlement à l'humification biologique, le biochar (pyrolyse >350°C) introduit un pool récalcitrant : carbone très stable (> 100 ans), support physique de l'habitat microbien, inspiré de la terra preta — non biostimulant mais architecture durable du sol.
→ fiche #11 · fiche #24 (cadre) · fiche #77 - matière organique associée aux minéraux (S4) : Le devenir à long terme de l'humus biologique se lit dans le MAOM : carbone d'origine microbienne adsorbé aux argiles et aux oxydes Fe/Al, pool cible du carbon farming — la stabilité est physique (Lehmann & Kleber 2015), non chimique.
→ fiche #4 (cadre) · fiche #11 · fiche #63 · fiche #65 +1 - Complexe argilo-humique (S1) : Aboutissement structural : le MAOM s'inscrit dans le Complexe Argilo-Humique, association intime argiles-humus pontée par Ca²⁺/Mg²⁺ — fertilité chimique, structure physique et résilience hydrique réunies, clôturant le parcours de la MAFOR jusqu'à la Théorie de l'Humus concrétisée.
→ fiche #208 (pivot) · fiche #256
C16 : Résistome environnemental : du sol au One Health
Argument
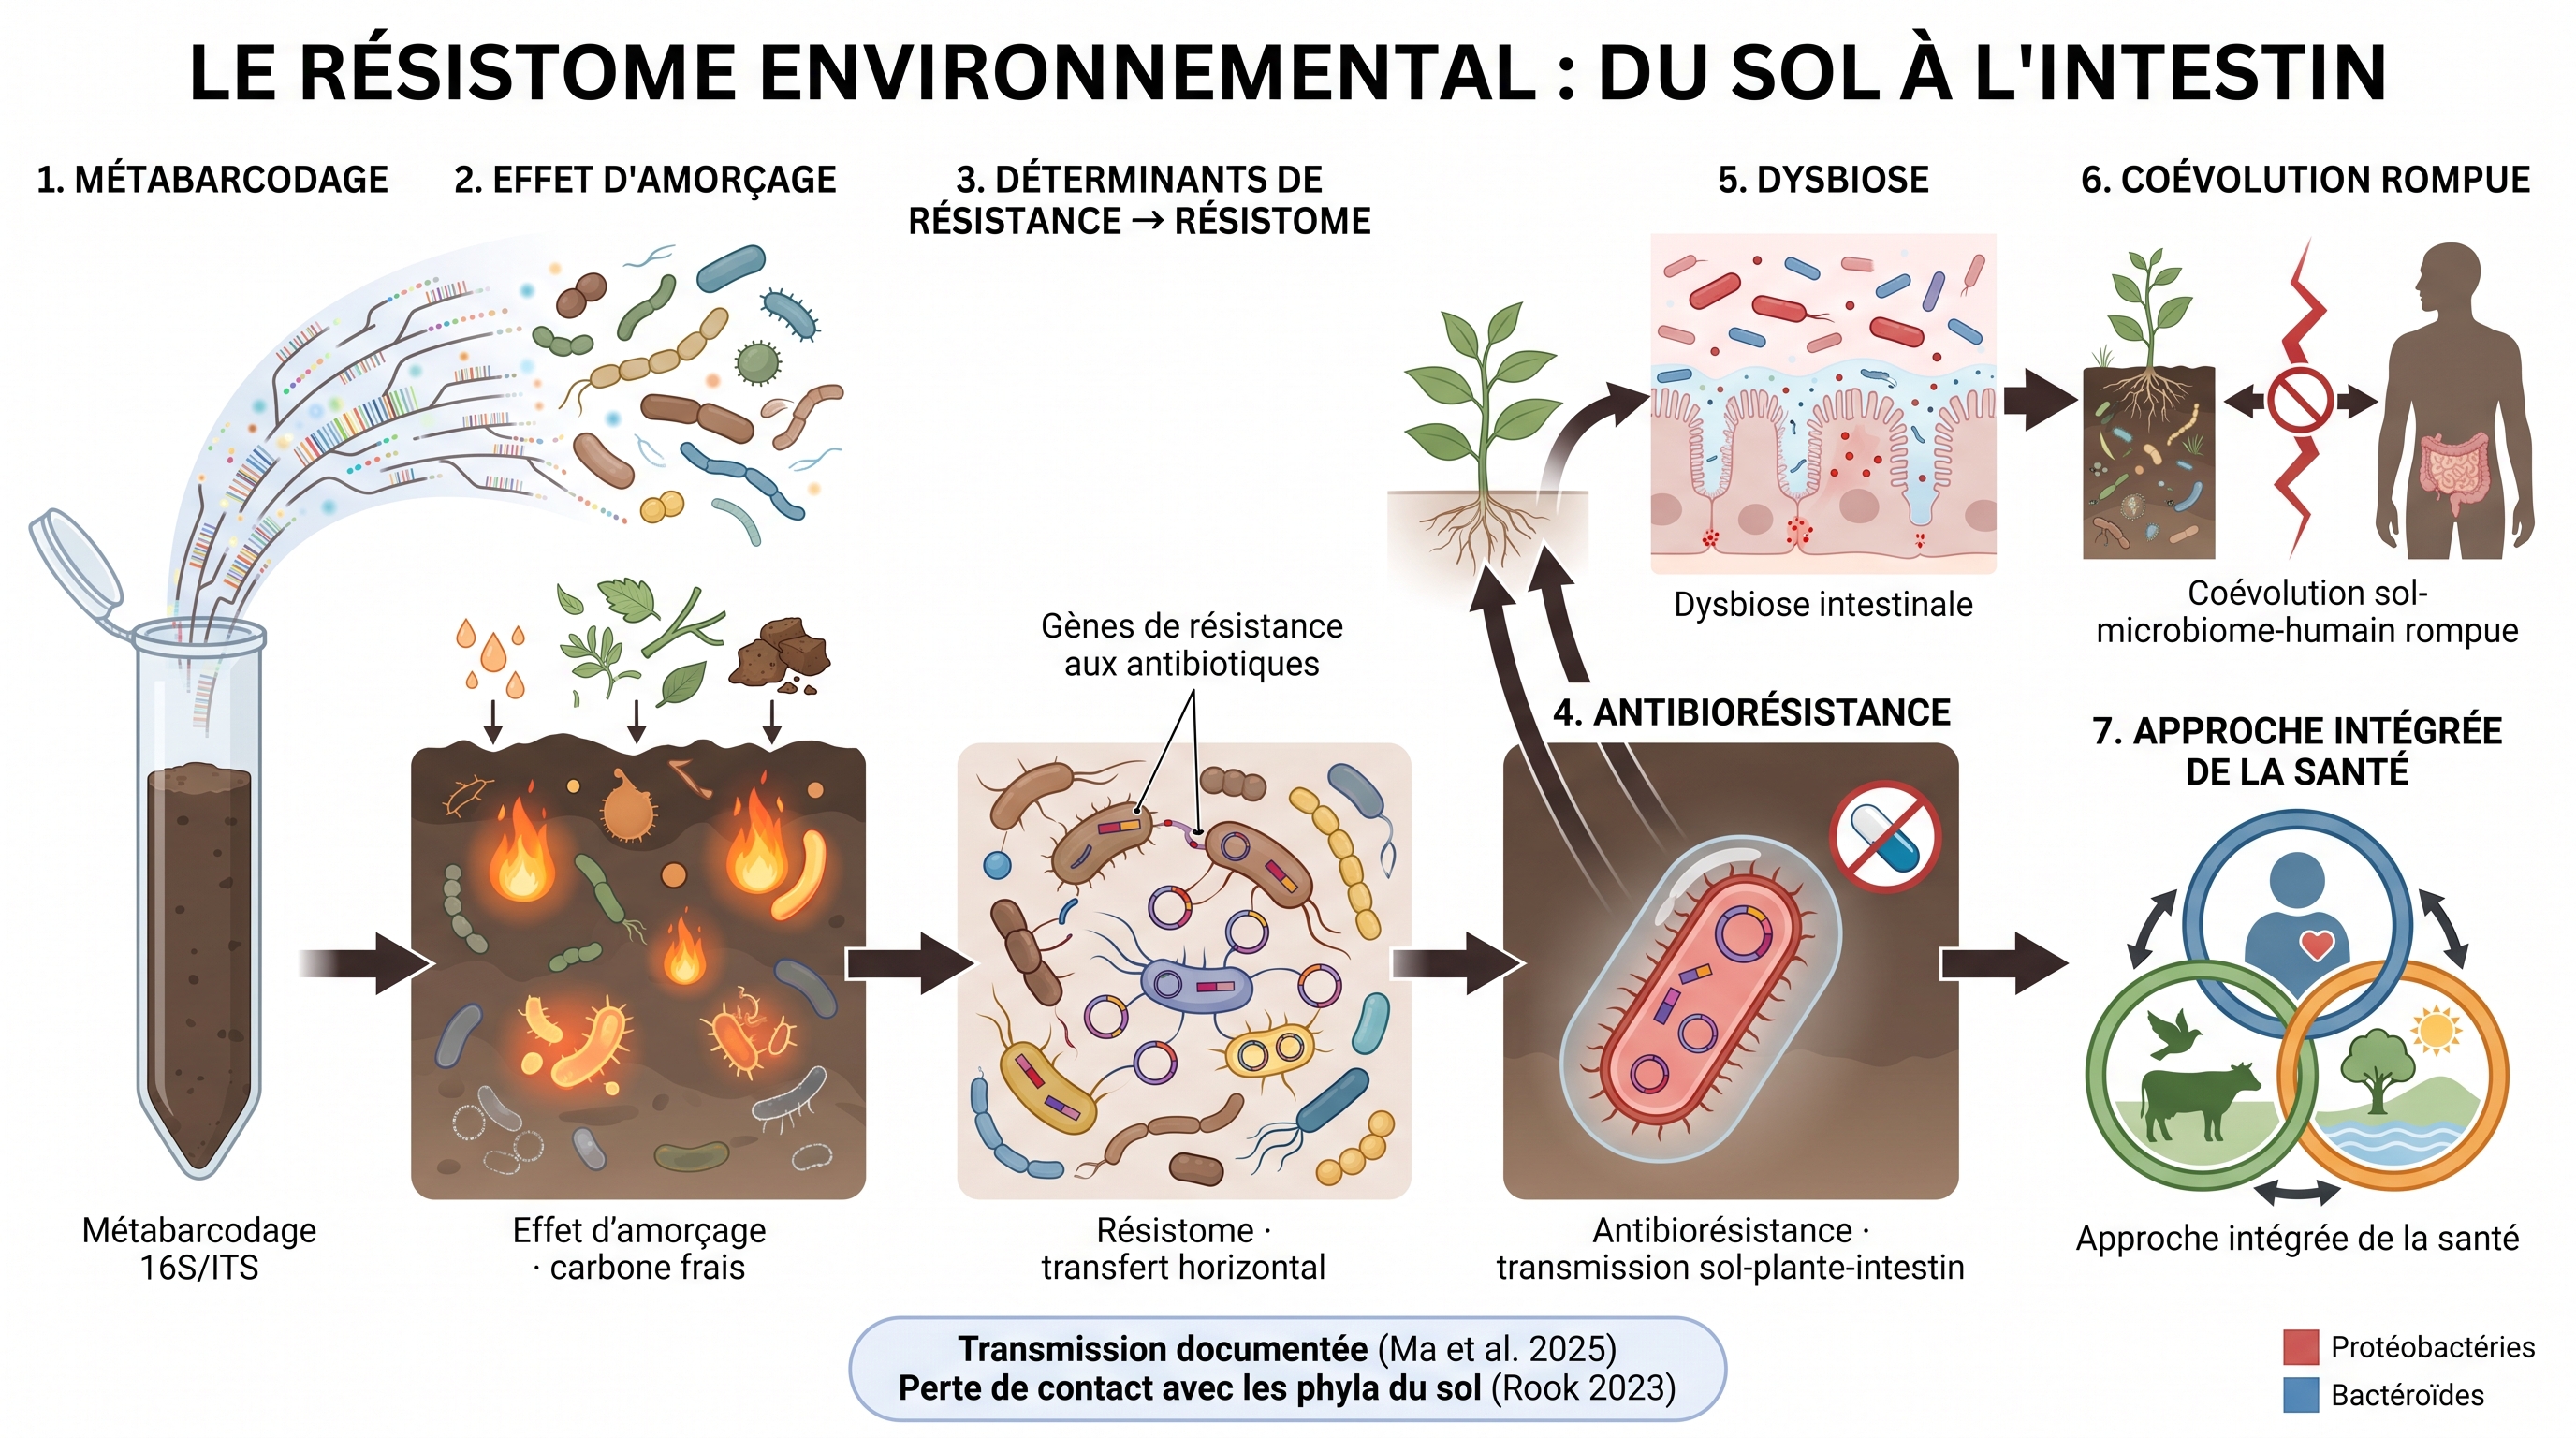
Des gènes de résistance aux antibiotiques dorment dans nos sols ; comprendre comment ils circulent jusqu'à nous, c'est penser la santé comme une seule chaîne. Le séquençage de l'ADN des sols révèle la diversité de leurs communautés microbiennes. Un apport de carbone frais en réveille une partie. Parmi elles sommeille un réservoir de gènes de résistance, présents naturellement mais amplifiés par les antibiotiques vétérinaires et certains intrants. Ensemble, ils forment le résistome, qui se transmet de bactérie à bactérie. Au contact de microbes pathogènes, il devient antibiorésistance. Selon une hypothèse en cours d'étude, ce résistome gagnerait notre intestin par l'alimentation et perturberait notre flore. D'où l'approche « une seule santé » reliant santé humaine, animale et des sols.
Illustration : Fig. C16-A · C16 — Résistome environnemental : du sol au One Health…
Science
- métabarcodage (S2) : Point de départ : le métabarcoding 16S/ITS révèle la richesse des communautés microbiennes natives du sol agricole, socle taxonomique sur lequel se greffera l'inventaire fonctionnel des gènes de résistance.
→ fiche #140 (pivot) · fiche #358 - Effet d’amorçage (S2) : Sur ce fond microbien caractérisé en pos1, l'apport de carbone frais (exsudats, résidus, intrants organiques) déclenche un effet d'amorçage qui stimule sélectivement les populations copiotrophes, premier levier qui modifie la structure des guildes et la pression de sélection.
→ fiche #76 - Déterminants de résistance (H3) : Parmi ces copiotrophes réveillés par l'amorçage sommeille un pool génétique latent : les gènes de résistance aux antibiotiques (ARG), présents naturellement via les Actinobacteria mais amplifiés par l'usage d'antibiotiques vétérinaires et les intrants agricoles.
→ fiche #19 · fiche #30 · fiche #84 - résistome (H3) : L'ensemble de ces ARG forme le résistome du sol, entité fonctionnelle transférable : la mobilité via éléments génétiques mobiles transforme un inventaire de gènes dispersés (pos3) en réservoir cohérent, échangeable entre taxons par transfert horizontal.
→ fiche #24 (cadre) · fiche #84 - antibiorésistance (H3) : Lorsque ce résistome rencontre des pathogènes, il se traduit en AMR phénotypique : la résistance passe du statut de potentiel génomique (pos4) à celui de crise sanitaire, amplifiée par la transmission sol-plante-intestin documentée par Ma et al. 2025.
→ fiche #11 · fiche #24 (cadre) · fiche #79 (cadre) · fiche #84 - dysbiose (H2) : L'AMR et les ARG circulants atteignent le microbiote intestinal humain via l'alimentation et provoquent une dysbiose : perte de diversité, dominance de pathobiontes, perméabilité accrue, bascule pathologique qui matérialise le lien sol-santé.
→ fiche #12 · fiche #13 · fiche #84 - Coévolution sol-microbiome-humain (H1) : Cette dysbiose n'est pas un accident isolé mais la rupture d'une co-évolution sol-microbiome-humain millénaire : la perte de contact avec les phyla microbiens du sol (hypothèse hygiéniste, Rook 2023) rend l'intestin vulnérable au résistome qu'il reçoit.
→ fiche #194 · fiche #220 (pivot) - Approche intégrée de la santé (H1) : Aboutissement : le cadre One Health (OMS/OIE/FAO) unifie en politique publique intégrée le constat des positions précédentes, reconnaissant que la santé humaine, animale et environnementale forment un continuum dont le résistome est l'un des traceurs les plus éloquents.
→ fiche #13 · fiche #22 (pivot) · fiche #24 (cadre) · fiche #64 +1
C17 : Cascade phosphore : du minéral inerte à l'os humain
Argument
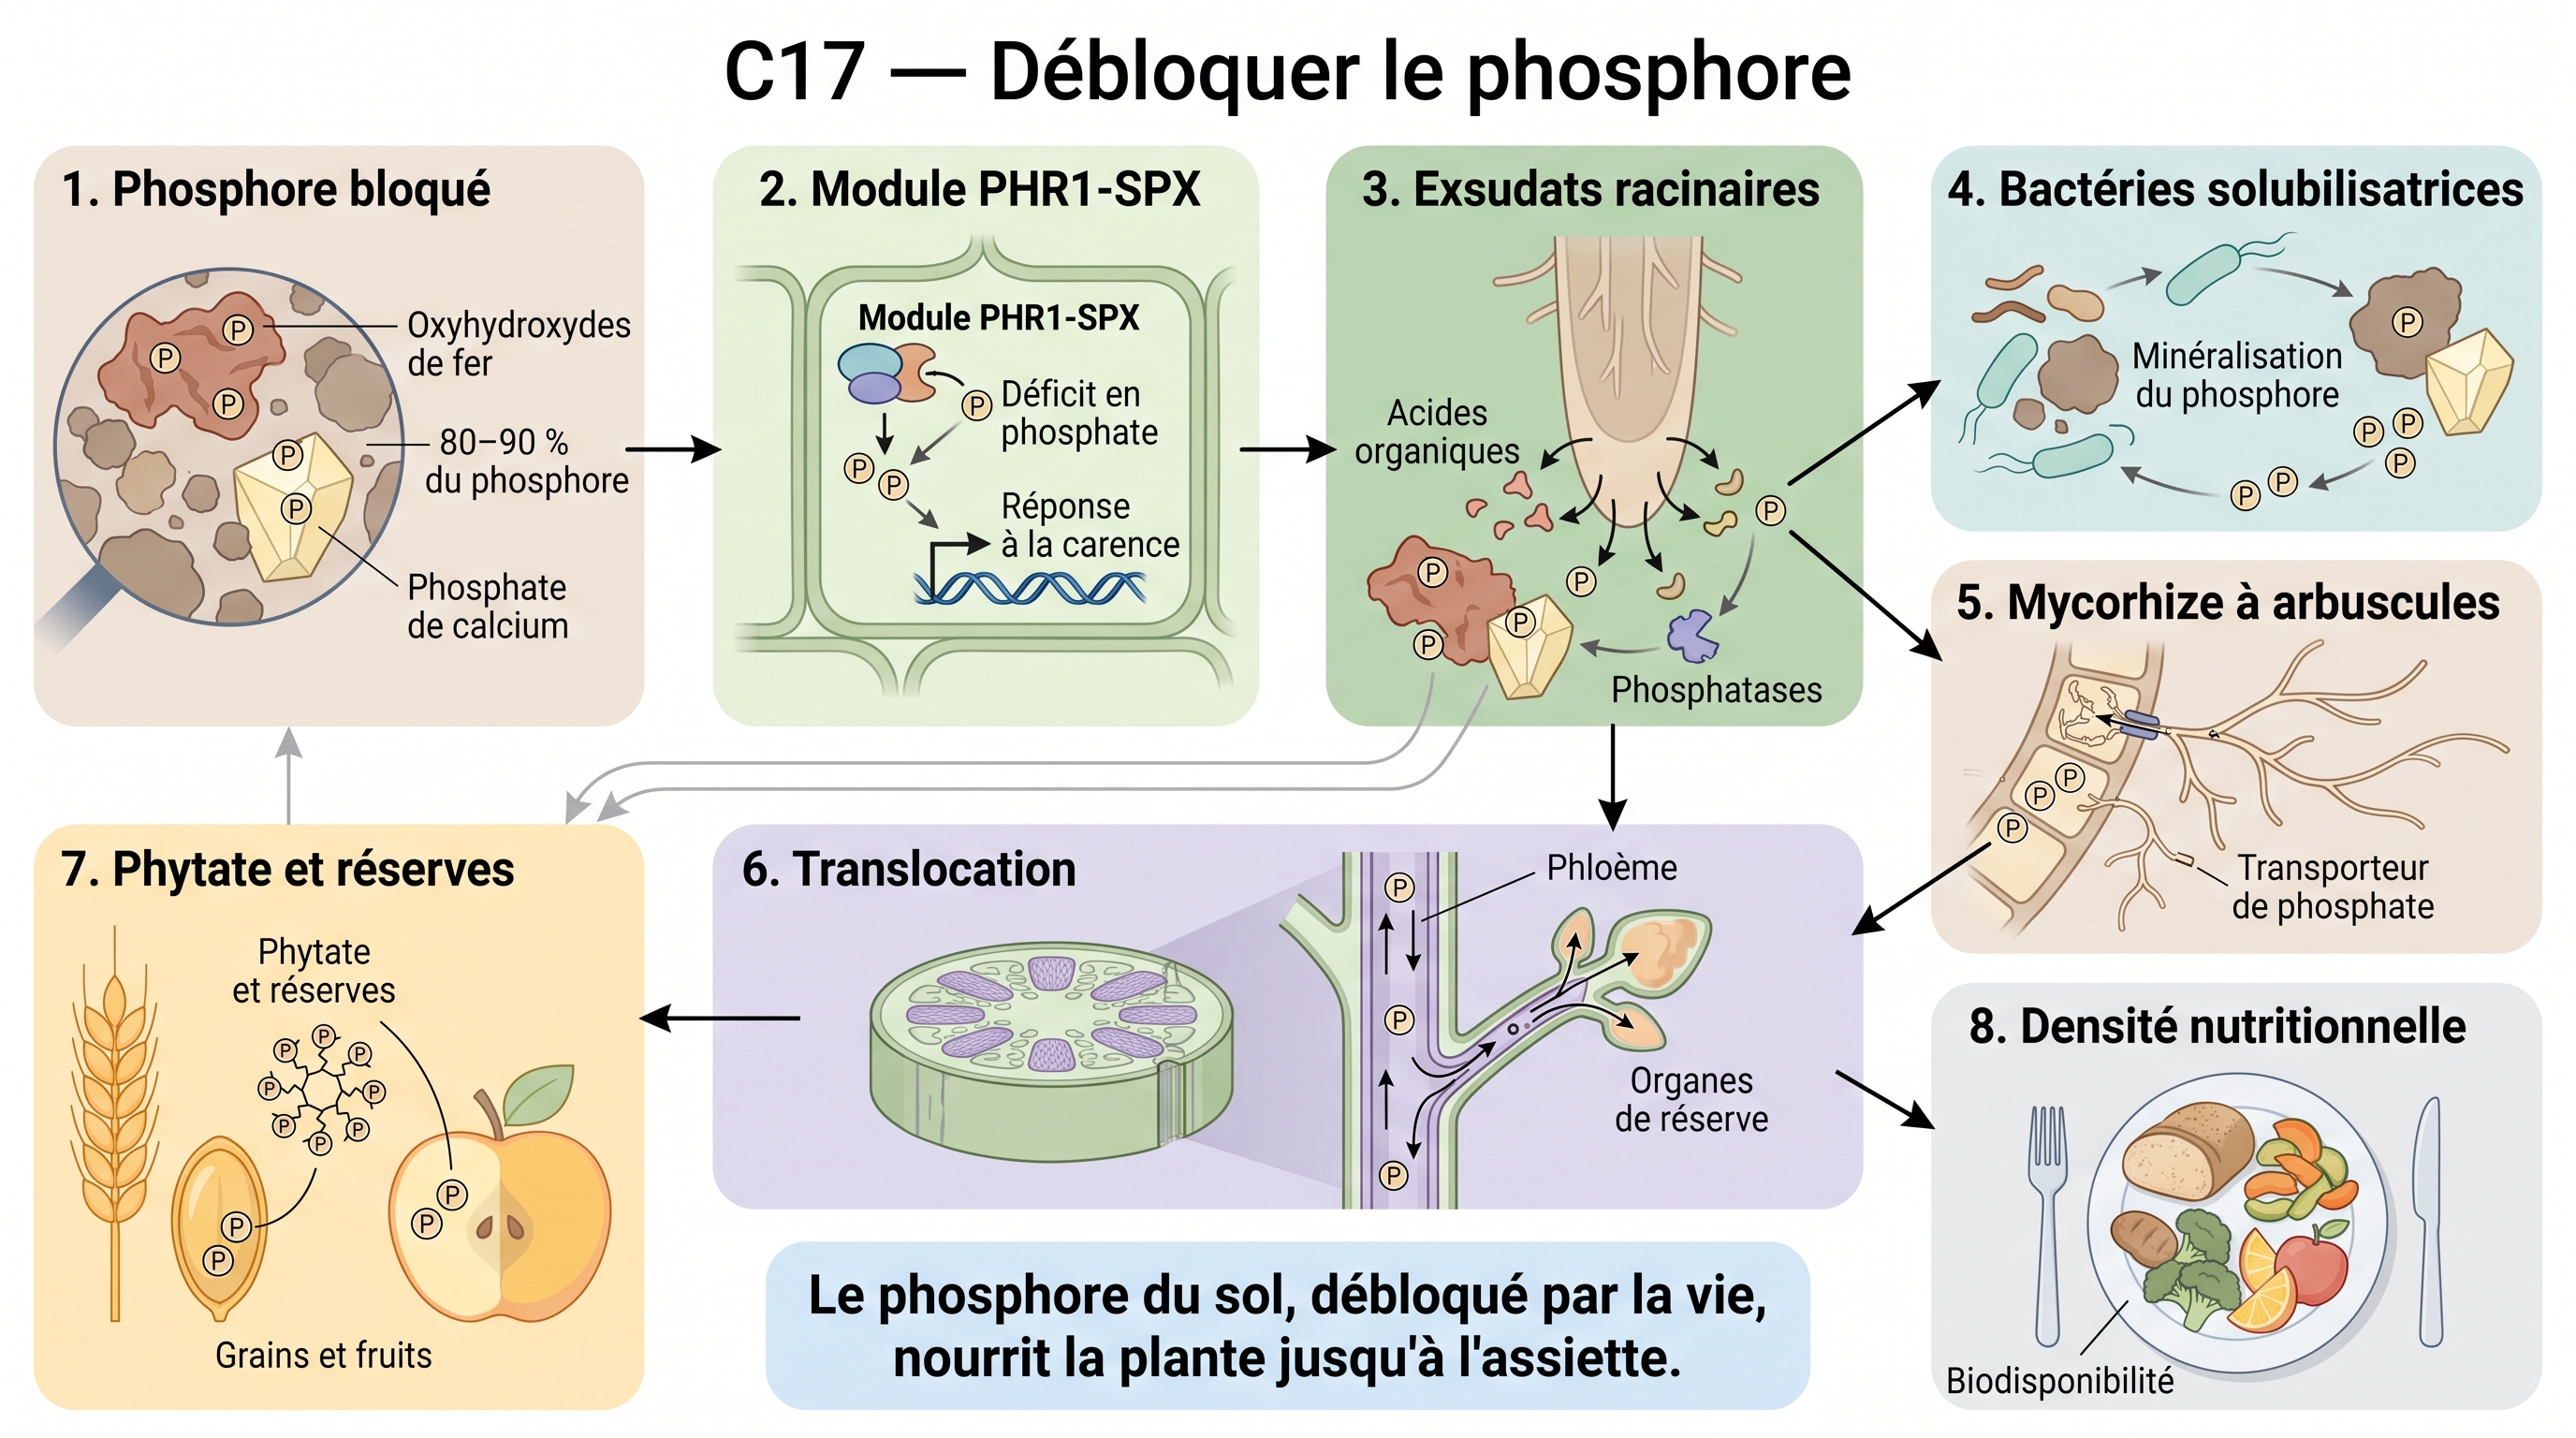
Le phosphore, nutriment indispensable à toute vie, est abondant dans les sols mais verrouillé dans des formes minérales insolubles. La vie du sol sait pourtant le débloquer. Face au manque, la plante déclenche une réponse : ses racines sécrètent des acides et des enzymes qui dissolvent ce phosphore, des bactéries spécialisées font de même, et les champignons mycorhiziens, fins réseaux reliés aux racines, élargissent la surface de captage pour l'acheminer jusqu'à la plante. Celle-ci le dirige vers les grains et les fruits, où il s'accumule en réserves. Cette charge minérale fait la richesse nutritionnelle de l'aliment, et donc de notre assiette. Mobiliser ce phosphore déjà présent évite d'épuiser une ressource minière finie.
Illustration : Fig. C17-A · C17 — Cascade phosphore : du minéral inerte à l'os humain…
Science
- phosphore (S1) : Point de départ : 80 à 90 % du phosphore du sol est bloqué sur les oxydes ferriques et les phosphates calciques insolubles — pool dominant, mais non disponible pour la plante.
→ fiche #4 (cadre) · fiche #31 · fiche #64 · fiche #65 +7 - PHR-SPX (V2) : Module PHR1-SPX : détection cellulaire du déficit Pi → activation transcriptionnelle des gènes PSI → sécrétion d'exsudats racinaires (acides organiques, phosphatases) + recrutement mycorhizien + transporteurs PHT. Pivot moléculaire de la réponse plante à la carence P, en amont des étapes opérationnelles.
→ fiche #31 · fiche #83 (pivot) - exsudats racinaires (V2) : Première arme opérationnelle de cette réponse, les exsudats racinaires (acides organiques, phosphatases) solubilisent le P fixé sur la phase minérale.
→ fiche #22 (pivot) · fiche #24 (cadre) · fiche #26 · fiche #35 +5 - Bactéries Solubilisatrices (S2) : Les bactéries phosphosolubilisatrices minéralisent le P organique et libèrent le phosphate, complétant l'action des exsudats : le pool de phosphate disponible se reconstitue.
→ fiche #14 · fiche #16 · fiche #26 · fiche #27 +4 - Mycorhize à arbuscules (S3) : Les mycorhizes à arbuscules étendent la surface d'absorption et transfèrent ce phosphate disponible jusqu'à la plante.
→ fiche #1 · fiche #2 · fiche #15 · fiche #19 +2 - translocation (V2) : Absorbé par les transporteurs PHT racinaires, le phosphate est transloqué via le phloème vers les organes puits — grains, fruits, tubercules — où il s'accumule sous forme de phytate et de réserves minérales.
→ fiche #83 (pivot) - densité nutritionnelle (H1) : Cette charge minérale des organes de réserve fait la densité nutritionnelle de l'aliment : biodisponibilité du P et du Ca, équilibre nutritionnel humain.
→ fiche #1 · fiche #64 · fiche #80 · fiche #83 (pivot)
C18 : Pompe oxalate-carbonate : séquestration C inorganique pérenne
Argument
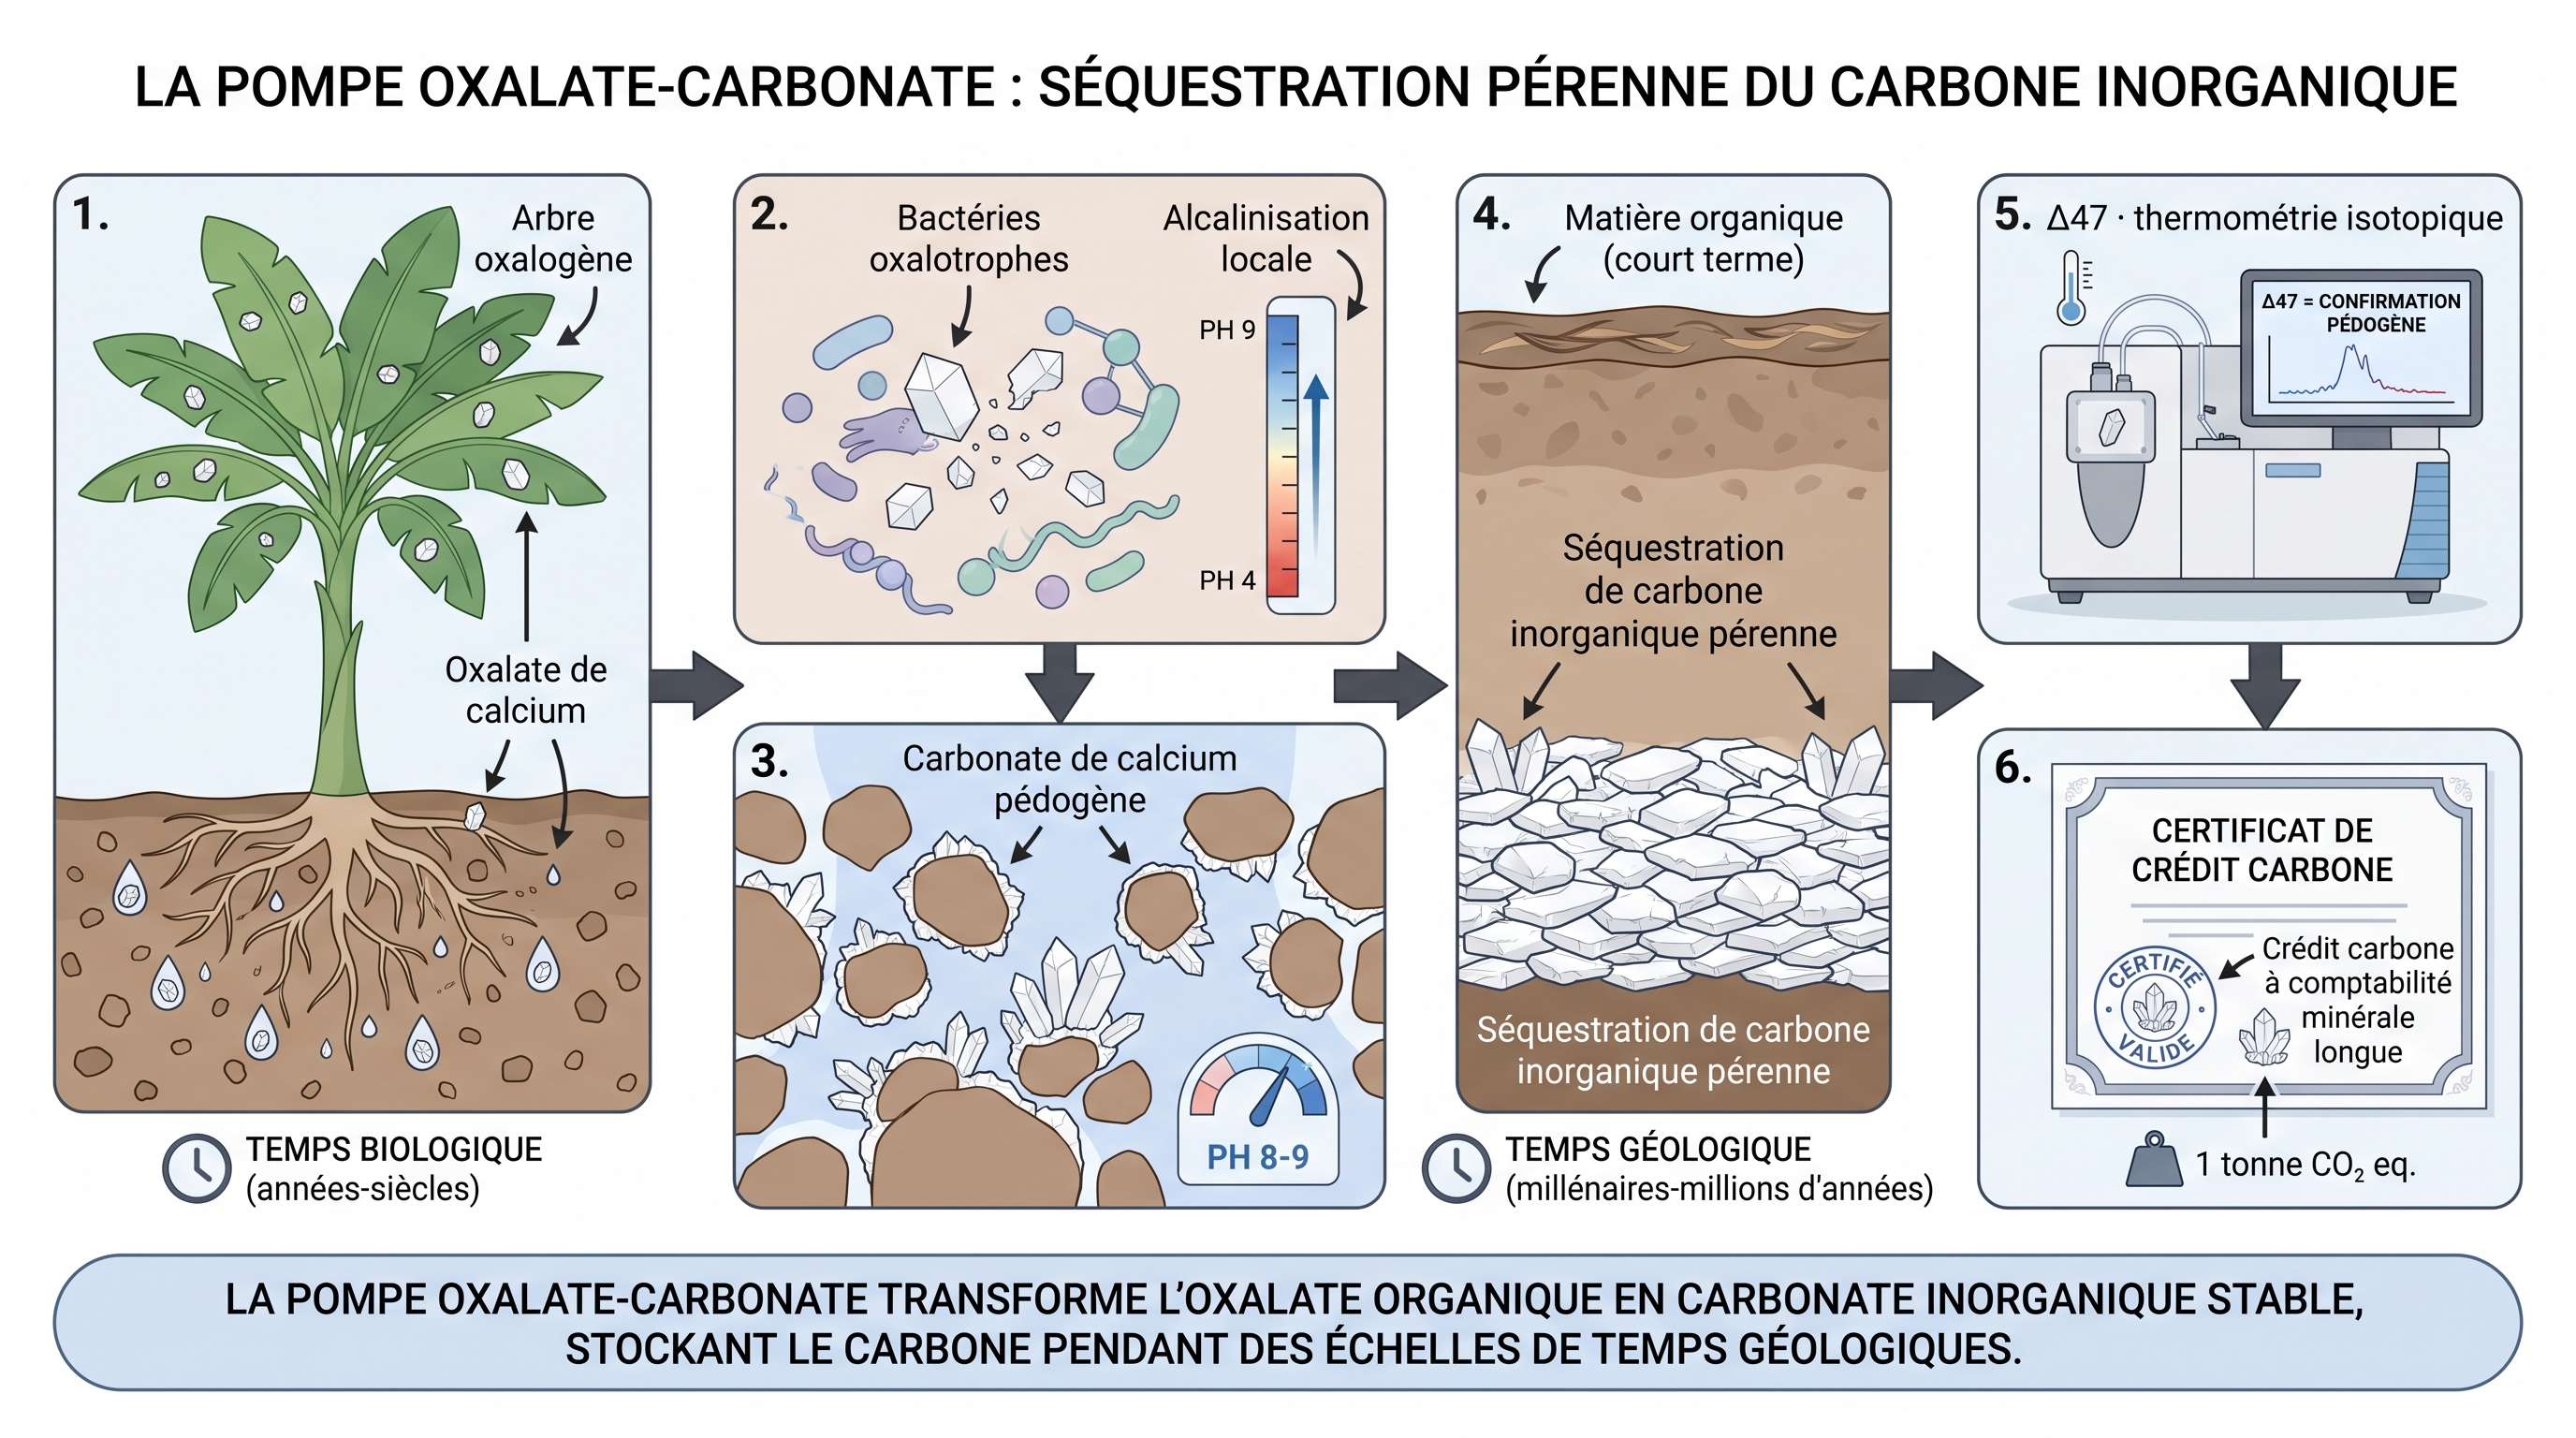
Certains arbres transforment une partie du carbone en pierre, un calcaire piégé pour 100 000 ans à 1 million d'années : une voie de stockage méconnue et quasi permanente. Ces arbres, dits oxalogènes, excrètent de l'oxalate de calcium dans leurs racines. Des bactéries spécialisées le transforment en calcaire, qui précipite dans le sol et y demeure à l'échelle géologique, bien au-delà du carbone organique. Des mesures physico-chimiques précises distinguent ce calcaire récent du calcaire ancien, ouvrant la voie à une comptabilité carbone rigoureuse et, potentiellement, à des crédits carbone pour l'agroforesterie tropicale. Les ordres de grandeur restent à consolider, mais la permanence du puits, elle, est établie.
Illustration : Fig. C18-A · C18 — Pompe oxalate-carbonate : séquestration C inorganique pérenne…
Science
- arbre oxalogène (P4) : Arbres oxalogènes (Iroko Milicia excelsa, Brosimum alicastrum, Terminalia, certains Ficus, certains Eucalyptus) excrètent oxalate de calcium dans rhizosphère et tissus. Concentrations foliaires Brosimum jusqu'à 45 g/kg matière sèche.
→ fiche #71 (cadre) · fiche #137 - oxalotrophes (S3) : Bactéries oxalotrophes (Cupriavidus, Oxalobacter, Oxalobacteraceae, Streptomyces, Bacillus) et champignons saprotrophes métabolisent l'oxalate via gènes oxc/oxdC/frc (oxalyl-CoA decarboxylase, formyl-CoA transferase). Consommation de protons → alcalinisation locale rhizosphérique pH 5,1 → 7-9.
→ fiche #71 · fiche #137 - carbonate de calcium pédogène (S1) : Précipitation de carbonate de calcium pédogène (calcite secondaire) à pH alcalinisé. Flux de précipitation documentés dans les écosystèmes oxalogènes tropicaux (Cailleau et al. 2011). Stabilise localement le complexe argilo-humique et amorce la formation de calcrètes en zones karstiques.
→ fiche #71 · fiche #239 - séquestration inorganique du carbone (S4) : Stockage minéral inorganique pérenne. Sous arbre oxalogène mature : 10-100 kg CaCO₃/m² profil. Permanence 10⁵-10⁶ ans (vs MAOM organique siècle-millénaire). Iroko mature : jusqu'à 29 t C/arbre soit 107 t CO₂ capté. Agroforesterie tropicale conçue : 0,29-15,21 Mg C/ha/an séquestré inorganique.
→ fiche #71 (cadre) · fiche #137 · fiche #239 - Δ47 (clumped isotopes) (S4) : MRV (Measurement-Reporting-Verification) du C inorganique pédogène : Δ47 valide l'origine pédogène du CaCO₃ (vs détritique), prérequis pour monétiser la séquestration VOC en crédits carbone vérifiables.
→ fiche #71 · fiche #239 - crédit carbone (F2) : Crédit carbone à comptabilité minérale longue, additionnalité forte
→ fiche #71 · fiche #137
C19 : Trophobiose Chaboussou : N soluble → attractivité ravageurs → AMR
Argument
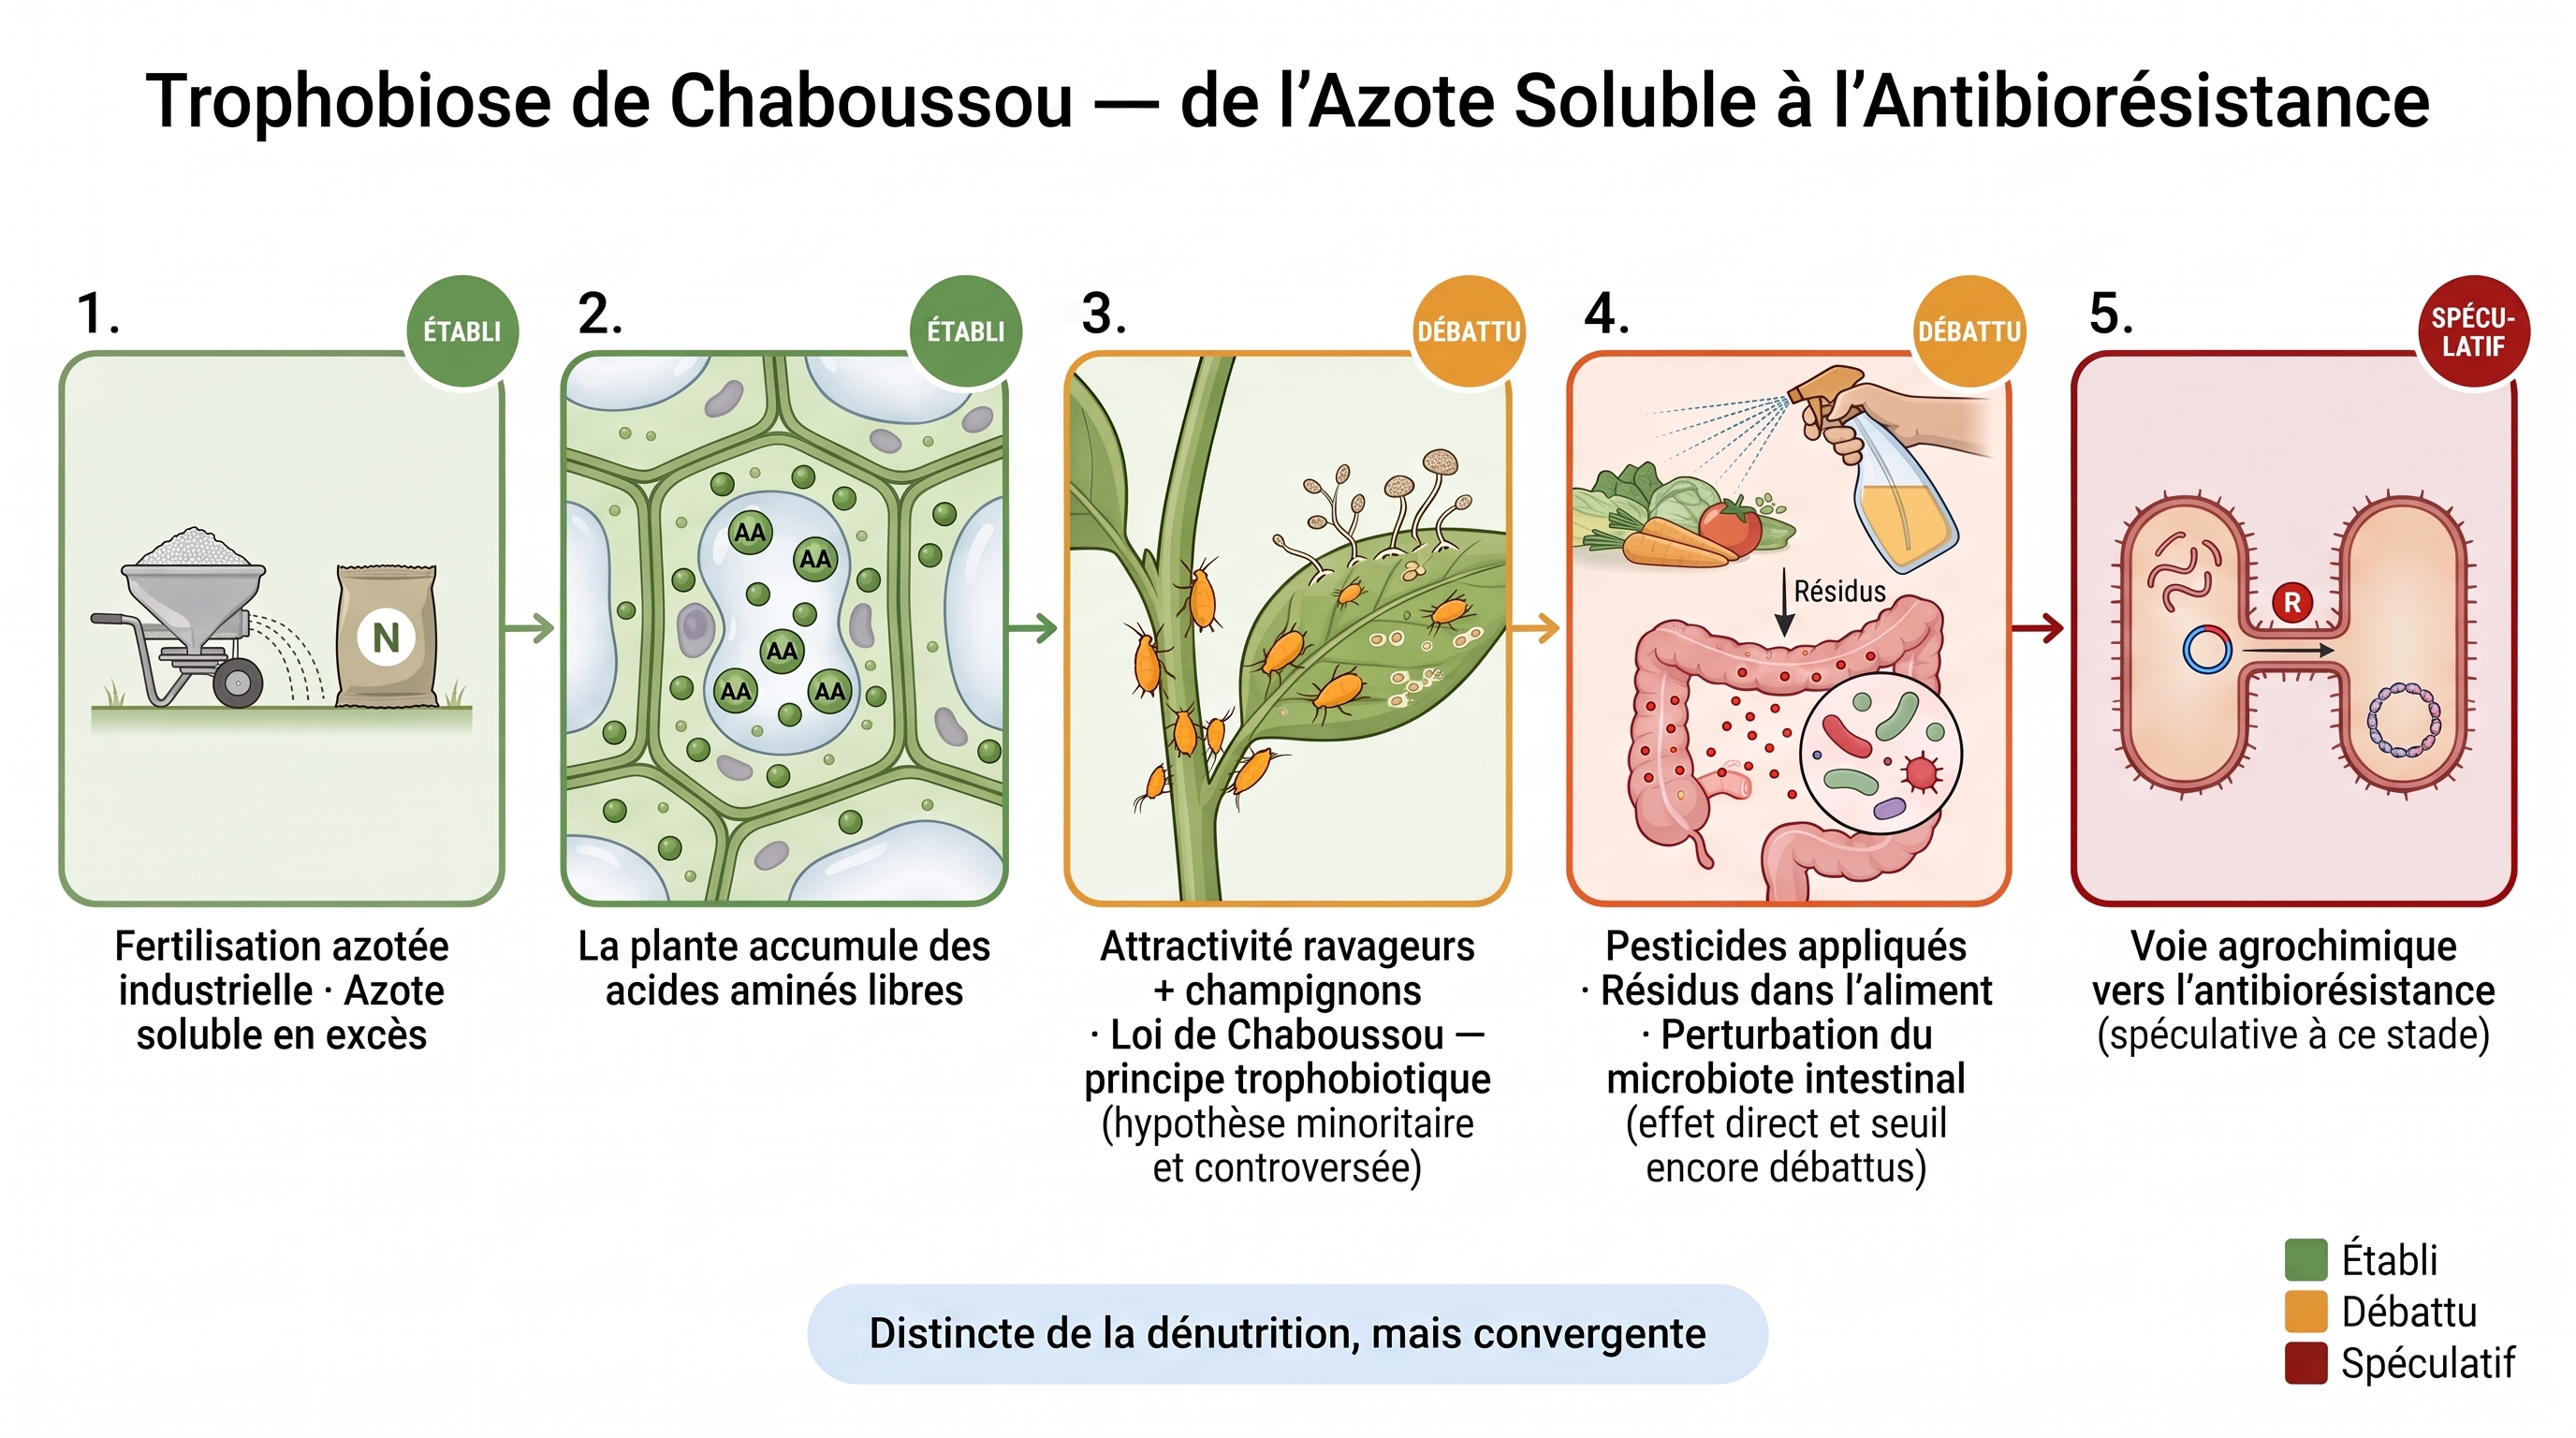
Une piste relie l'engrais azoté à notre santé en passant par les ravageurs et les pesticides ; elle reste minoritaire et controversée. L'azote industriel, fabriqué à bas coût par le procédé Haber-Bosch, a rendu la fertilisation massive. Selon une hypothèse dite de la trophobiose, une plante gorgée d'azote soluble accumule des acides aminés libres, briques des protéines restées non assemblées, et cette sève attirerait davantage d'insectes et de champignons. En réponse, on pulvériserait plus de pesticides, dont les résidus se retrouvent dans nos aliments. En laboratoire, ces résidus perturbent la flore intestinale ; leur effet aux doses réelles de l'alimentation reste débattu. Cette piste relie ainsi fertilisation, antibiorésistance et santé humaine, un enchaînement à confirmer.
Illustration : Fig. C19-A · C19 — Trophobiose Chaboussou : N soluble → attractivité ravageurs → antibiorésistance…
Science
- Haber-Bosch (F2) : Procédé Haber-Bosch génère azote minéral soluble bon marché, base de la fertilisation industrielle
→ fiche #10 · fiche #84 - acides aminés libres (V2) : La plante accumule des acides aminés libres faute de protéosynthèse complète
→ fiche #84 - Loi de la Trophobiose (V2) : Loi de Chaboussou : sève riche en AA libres devient attractante pour insectes et champignons
→ fiche #2 · fiche #12 · fiche #22 (pivot) · fiche #84 - Produit phytosanitaire (P3) : Recours aux fongicides et insecticides en réponse aux attaques amplifiées
→ fiche #16 · fiche #21 (cadre) · fiche #76 · fiche #80 +2 - antibiorésistance (H3) : Pression sélective sur la résistance antimicrobienne amplifiée par les pesticides
→ fiche #24 (cadre) · fiche #33 · fiche #84 - microbiome intestinal (H1) : Résidus phytosanitaires dans l'aliment, perturbation du microbiote intestinal humain
→ fiche #13 · fiche #24 (cadre) · fiche #84
C20 : Thermorégulation édaphique : sol vivant comme tampon climatique local
Argument
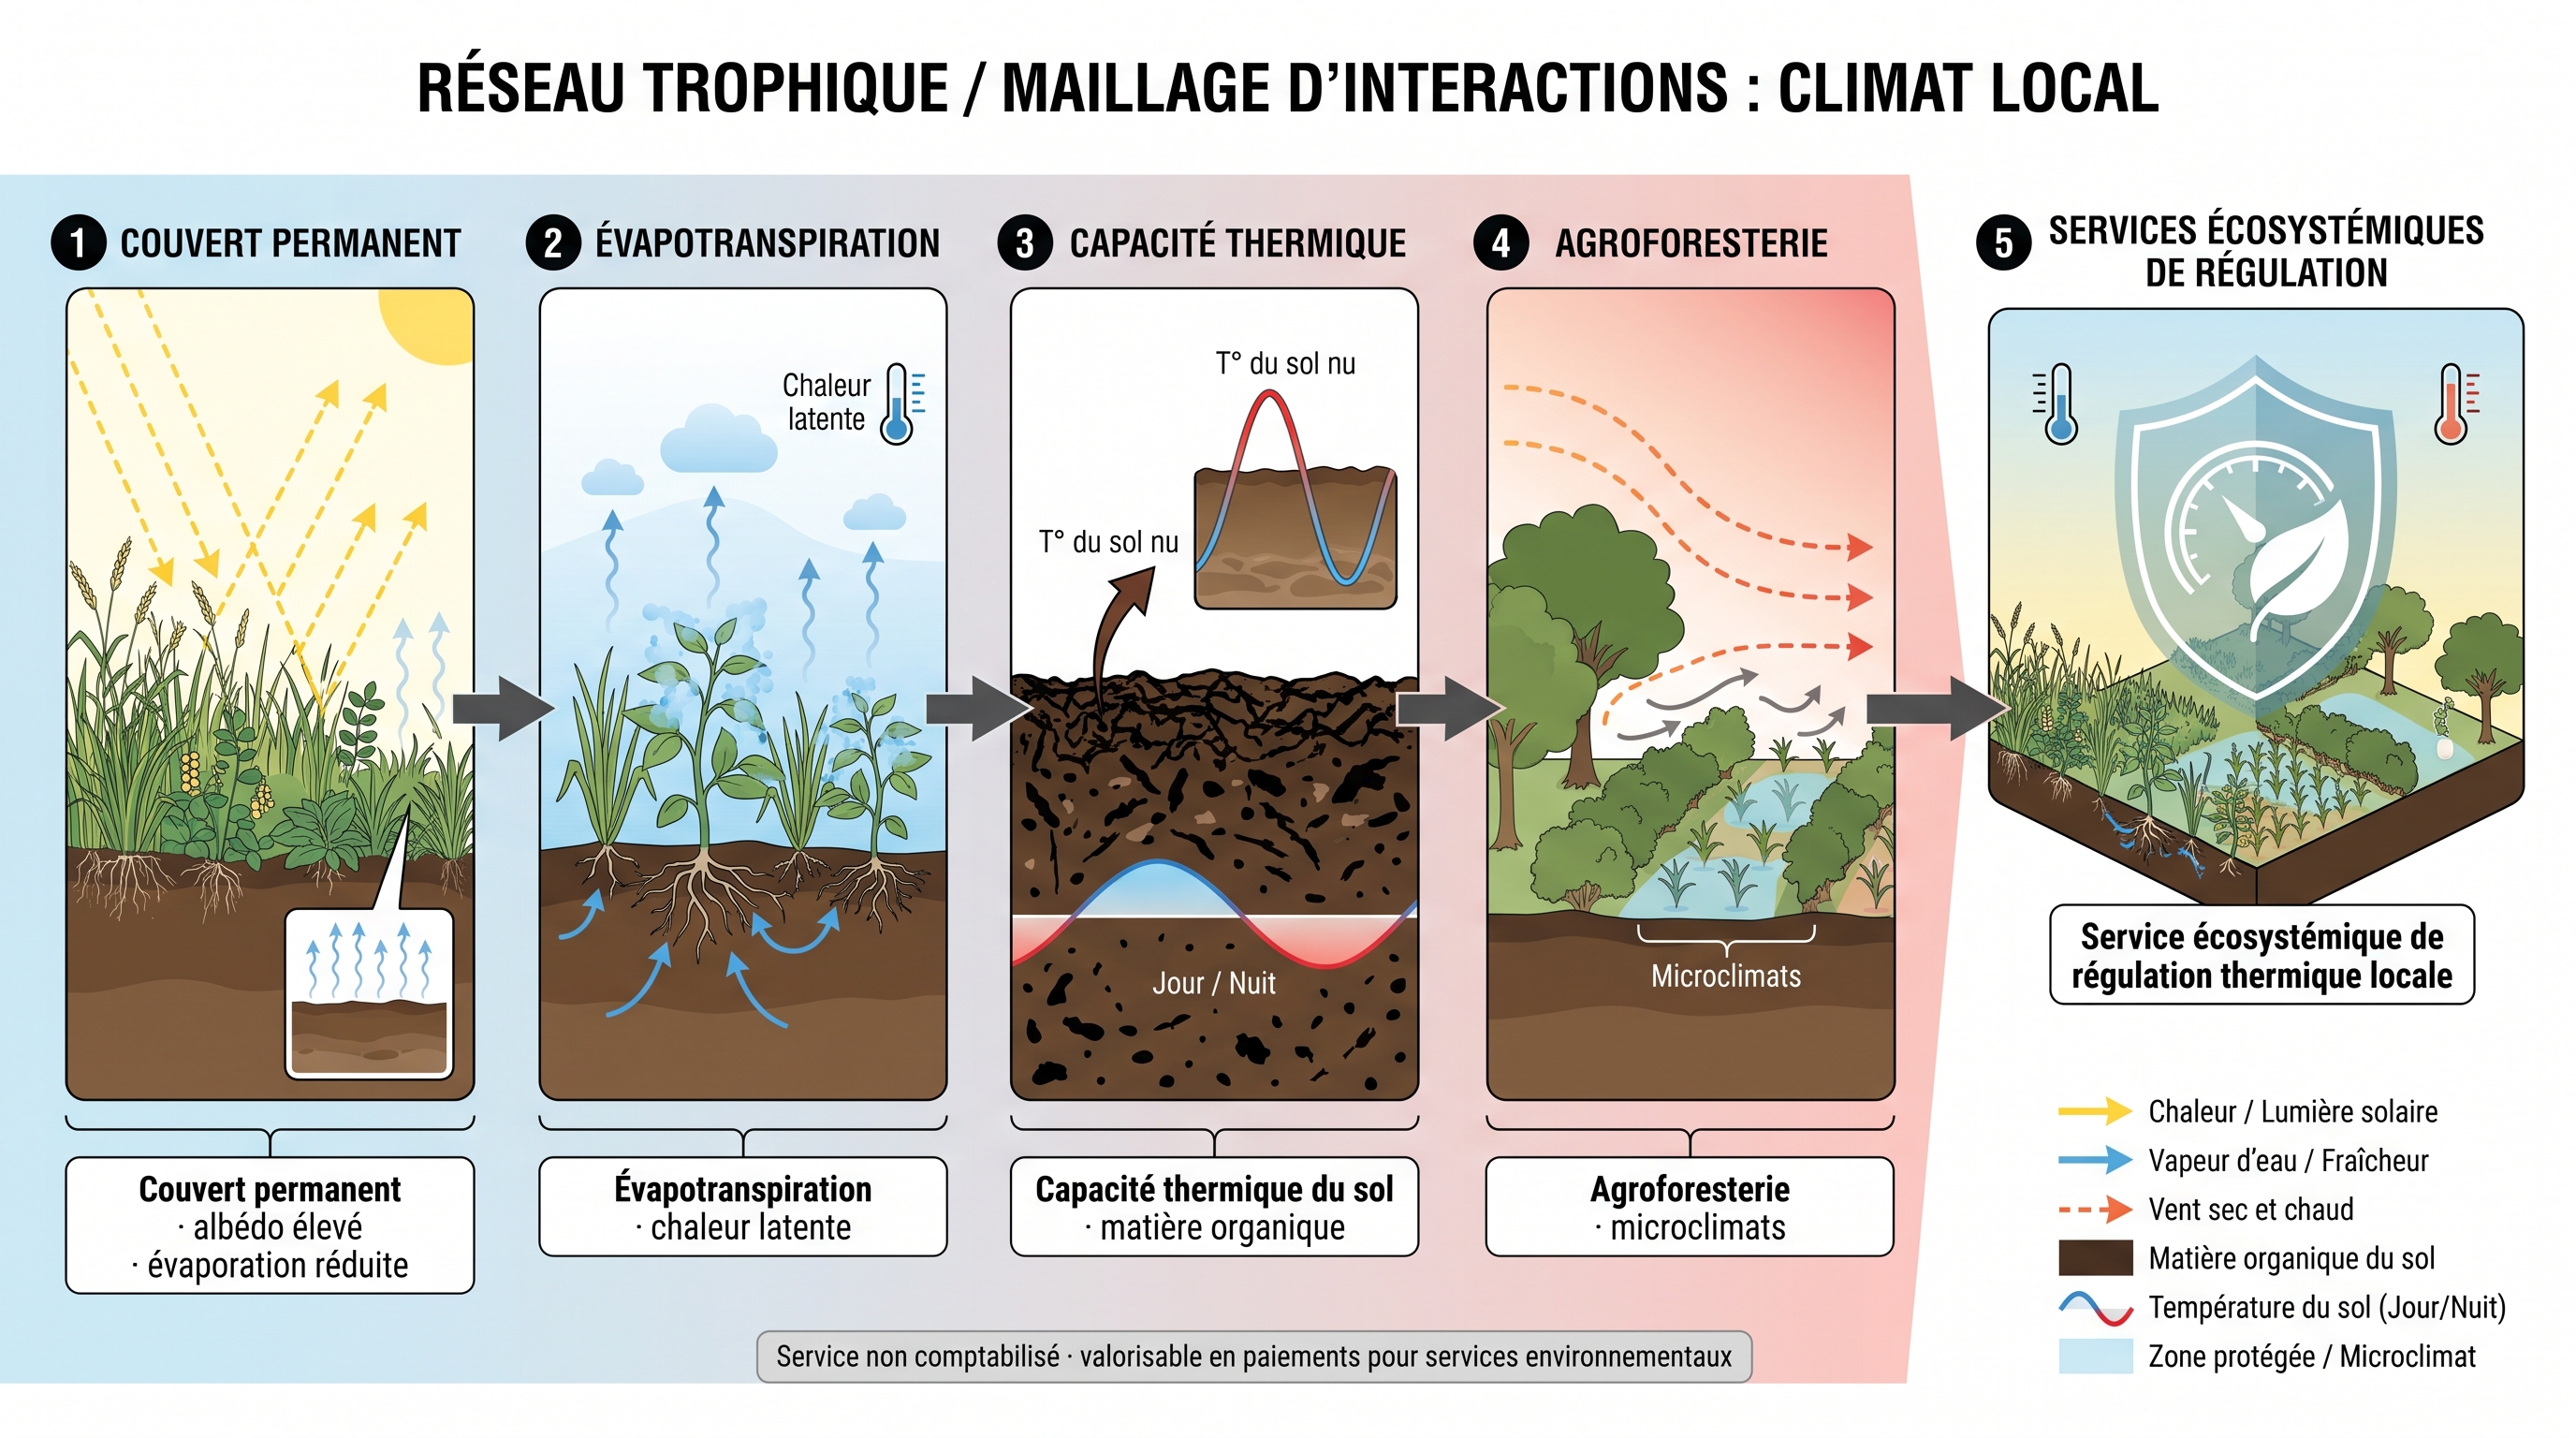
Un sol vivant et couvert se comporte comme un climatiseur local : il rafraîchit l'air et amortit les écarts de température. Un couvert végétal permanent renvoie davantage de lumière solaire et abaisse la température de surface. Les plantes évaporent de l'eau, ce qui rafraîchit l'air à leur contact. En profondeur, une matière organique abondante lisse les variations entre le jour et la nuit. À l'échelle du paysage, haies et arbres brisent les vents secs et créent des microclimats. Mis bout à bout, ces mécanismes forment un service de régulation thermique locale, aujourd'hui non comptabilisé mais potentiellement valorisable.
Illustration : Fig. C20-A · C20 — Thermorégulation édaphique : sol vivant comme tampon climatique local…
Science
- Couvert permanent (P2) : Premier mécanisme : un couvert permanent augmente l'albédo et réduit l'évaporation directe, abaissant la température de surface.
→ fiche #34 · fiche #79 (cadre) · fiche #85 - évapotranspiration (S0) : À cela s'ajoute l'évapotranspiration racinaire, qui dissipe la chaleur latente et rafraîchit l'air près du sol.
→ fiche #34 · fiche #79 (cadre) · fiche #85 - capacité thermique (S1) : En profondeur, une matière organique élevée augmente la capacité thermique du sol et lisse les variations diurnes.
→ fiche #34 · fiche #79 (cadre) · fiche #83 (pivot) · fiche #85 - agroforesterie (P4) : À l'échelle du paysage, haies et arbres créent des micro-climats, brisent les vents secs et modèrent l'évapotranspiration.
→ fiche #1 · fiche #18 · fiche #23 · fiche #26 +5 - services écosystémiques de régulation (F2) : Ensemble, ces mécanismes convergents constituent un service écosystémique de régulation thermique locale — non comptabilisé mais valorisable en paiements pour services environnementaux.
→ fiche #11 · fiche #76 · fiche #80 · fiche #85
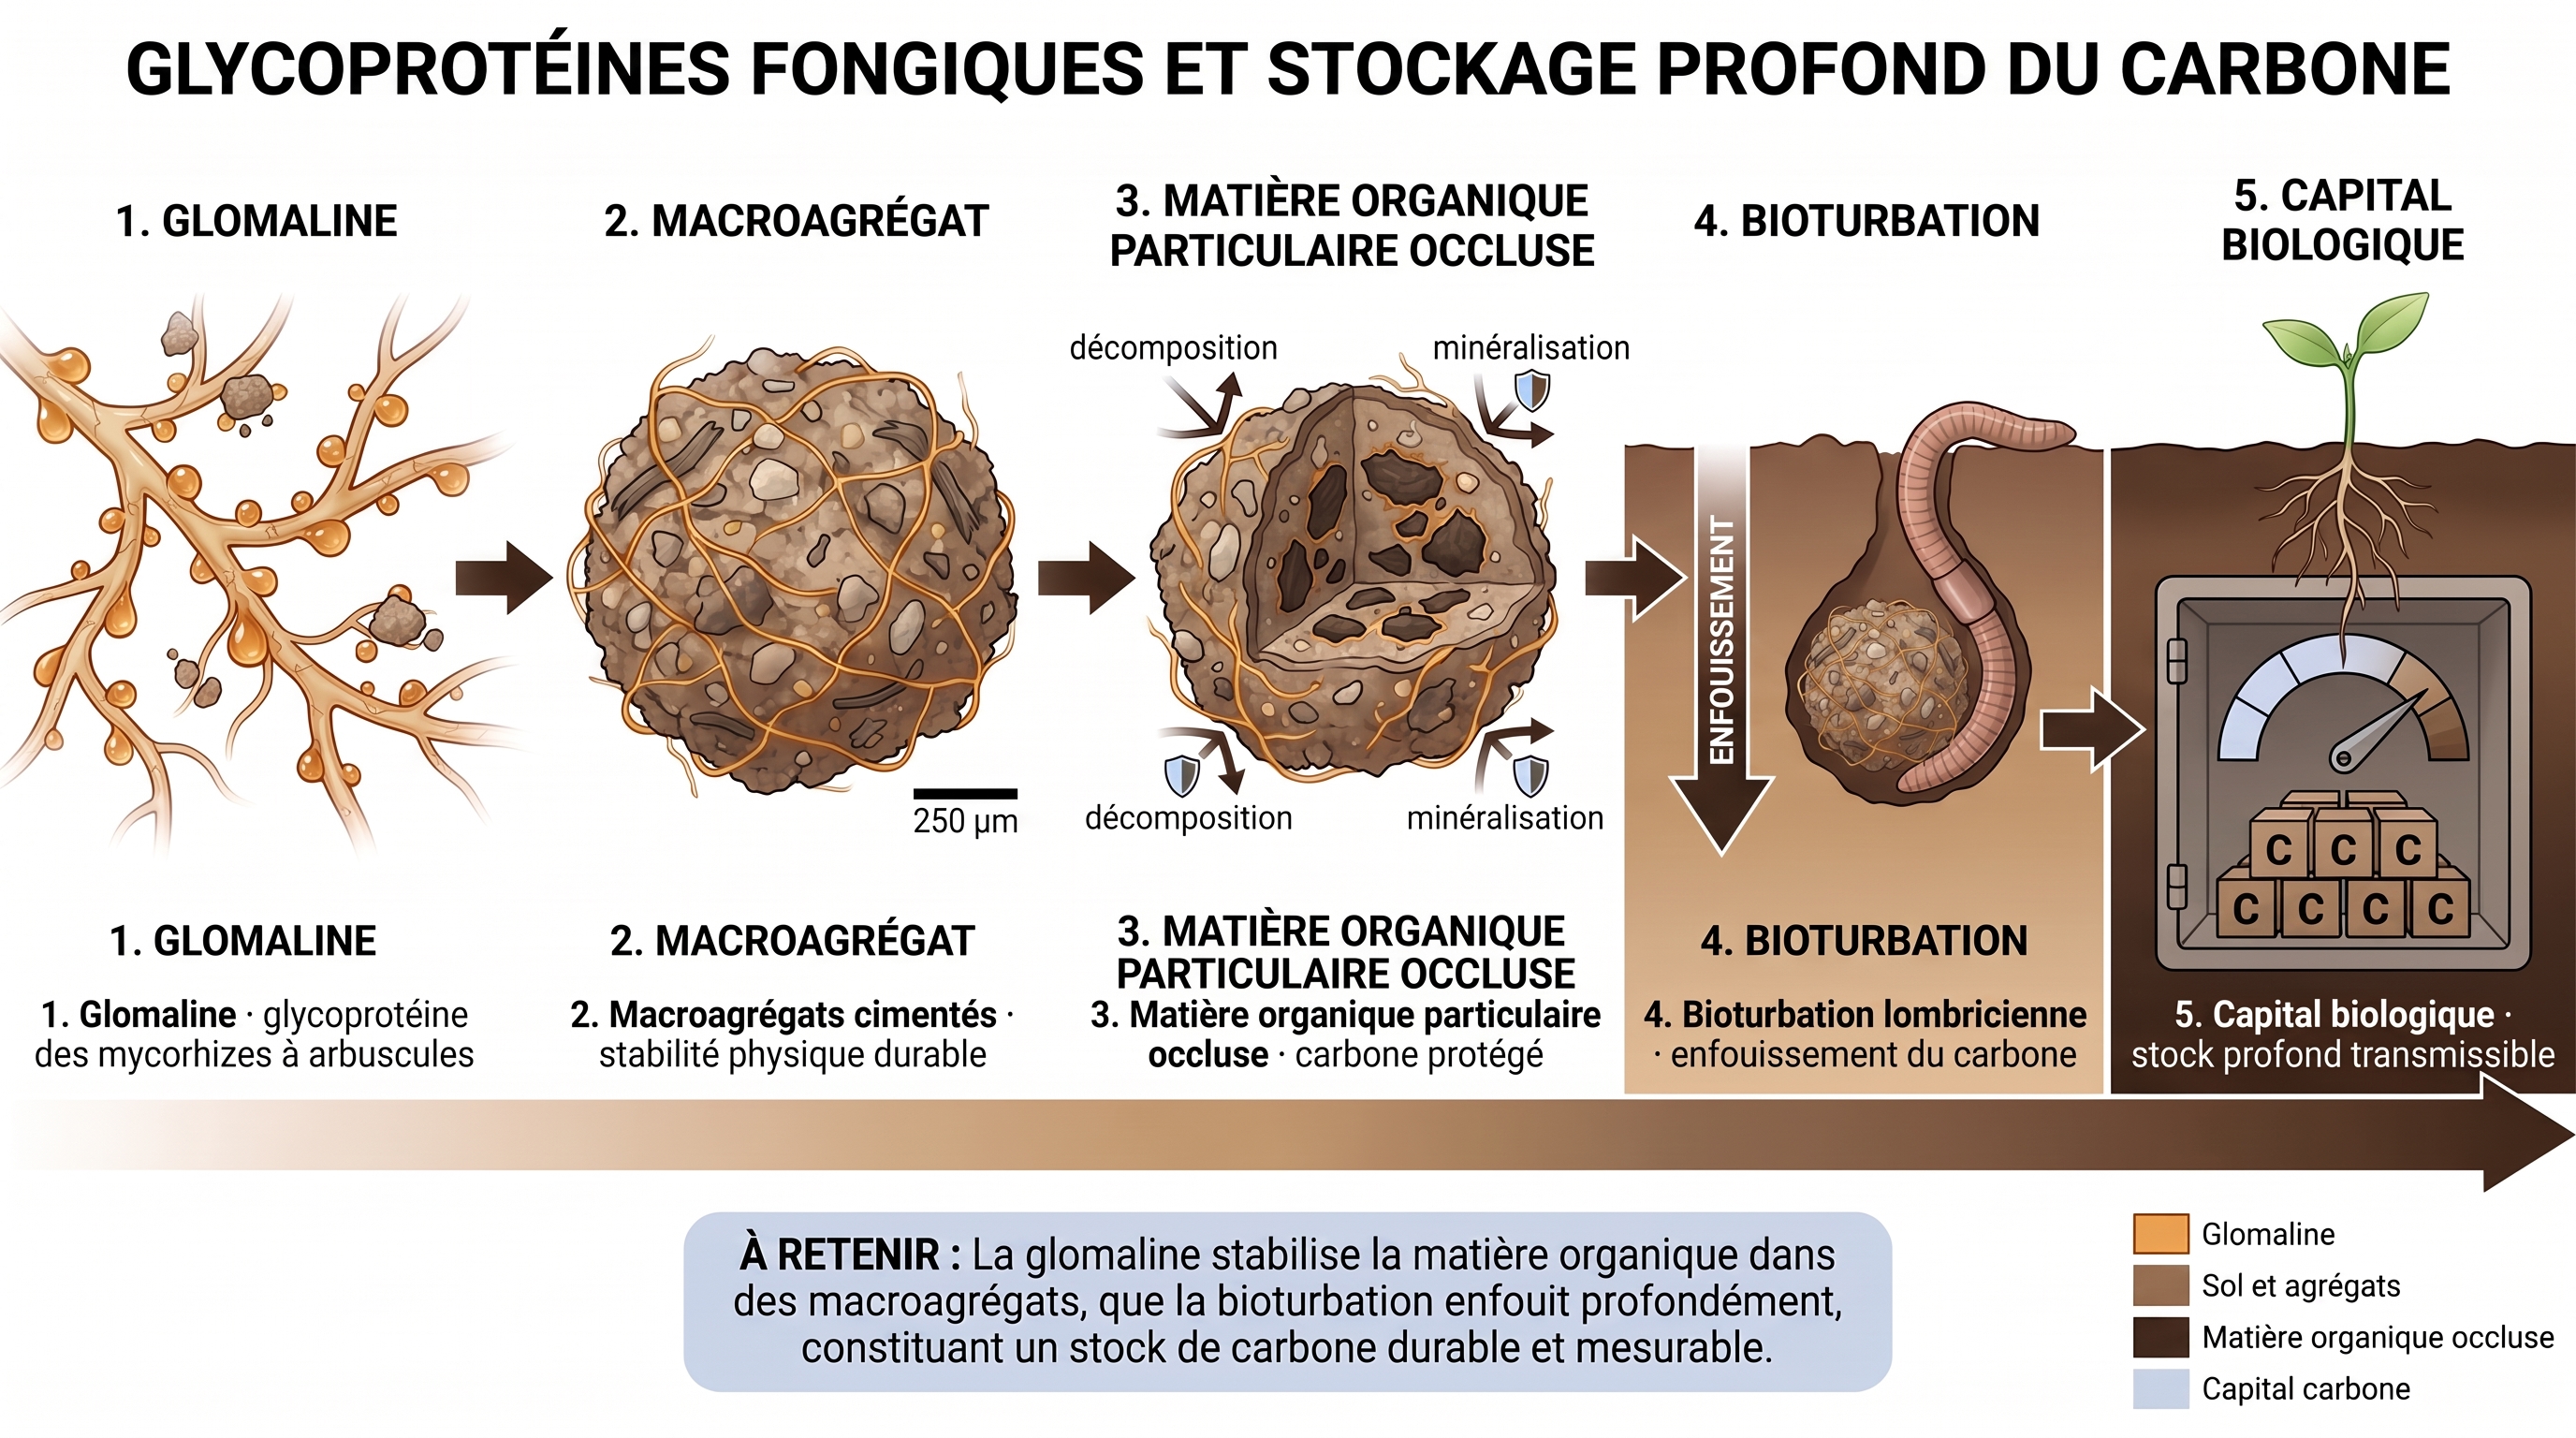
C21 : Glycoprotéines fongiques : de la glomaline au stockage C profond
Argument
Les champignons mycorhiziens, alliés microscopiques des racines, fabriquent un ciment biologique qui soude le sol en mottes et protège une part du carbone. Ils sécrètent des protéines collantes qui agglomèrent la terre en agrégats stables. Ces mottes enferment des débris organiques et ralentissent leur dégradation. Les vers de terre les enfouissent en profondeur. Le carbone ainsi stocké devient mesurable et durable, même si le mécanisme exact de protection reste discuté. C'est un capital biologique qui se construit dans le sol et se transmet.
Illustration : Fig. C21-A · C21 — Glycoprotéines fongiques : de la glomaline au stockage C profond…
Science
- glomaline (S3) : Mycorhizes à arbuscules synthétisent la glomaline, glycoprotéine représentant 3-5 % de la matière organique des sols agricoles
→ fiche #107 - macroagrégat (S1) : La glomaline cimente les macroagrégats supérieurs à 250 micromètres, stabilité physique durable
→ fiche #11 · fiche #63 · fiche #79 (cadre) - matière organique particulaire occluse (S4) : Occlusion physique protège le carbone de la minéralisation, voie de stabilisation distincte
→ fiche #11 · fiche #25 · fiche #34 · fiche #65 +2 - Bioturbation (V1) : Bioturbation lombricienne déplace agrégats stables en profondeur, enfouit le carbone
→ fiche #19 · fiche #63 · fiche #79 (cadre) - Capital biologique (F2) : Stock carbone profond mesurable, capital biologique transmissible
→ fiche #90 · fiche #112 (pivot)
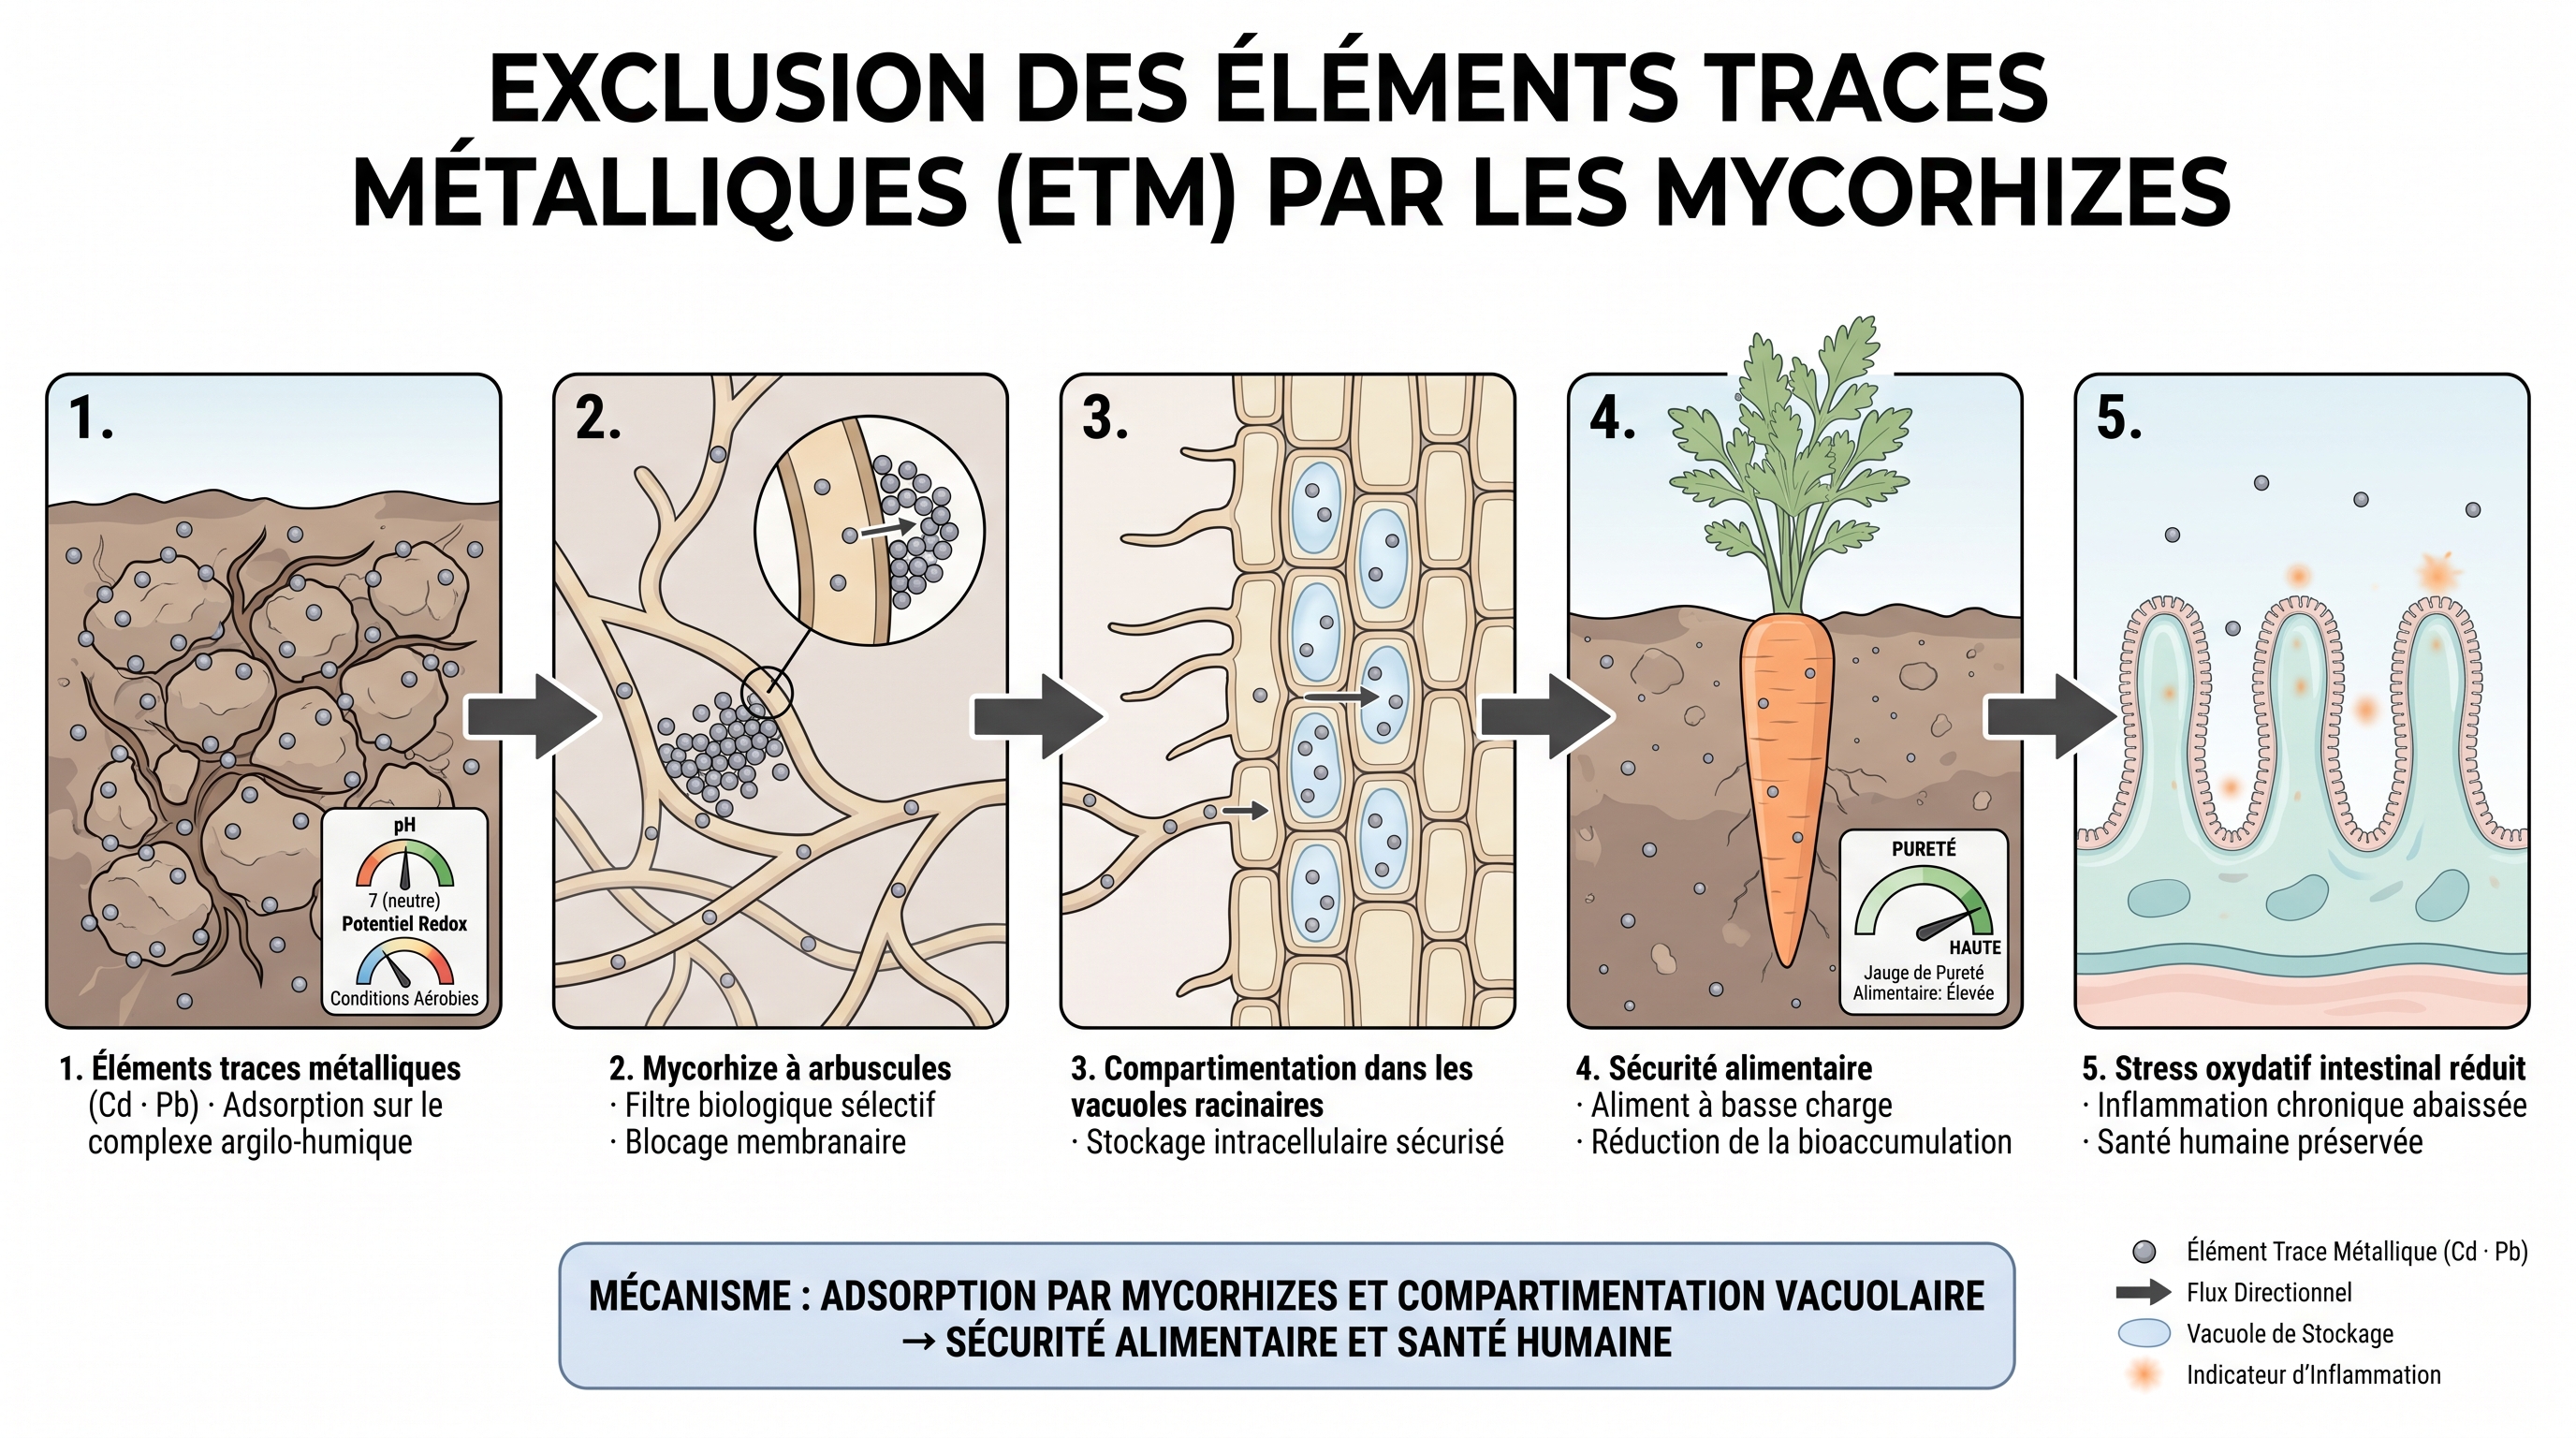
C22 : Métaux lourds : exclusion mycorhizienne et sécurité alimentaire
Argument
Sur un sol chargé en métaux lourds — cadmium, plomb —, un allié discret peut faire écran avant l'assiette : les mycorhizes, ces champignons qui s'associent aux racines. Même sur un sol contaminé, ces métaux sont plus ou moins mobiles selon l'acidité et l'oxygénation. Pour de nombreux couples plante-champignon, le champignon semble piéger les métaux dans sa paroi, et la plante les confine loin de ses graines. L'aliment peut ainsi rester pauvre en métaux lourds. Prudence : l'effet n'est pas universel, et le bénéfice santé — moins de stress oxydatif, cette usure des cellules, moins d'inflammation — reste une hypothèse séduisante, non démontrée chez l'humain.
Illustration : Fig. C22-A · C22 — Métaux lourds : exclusion mycorhizienne et sécurité alimentaire…
Science
- Éléments traces métalliques (S1) : Éléments traces métalliques (Cd, Pb) adsorbés sur le complexe argilo-humique, biodisponibles selon pH et redox
→ fiche #91 (pivot) · fiche #110 - Mycorhize à arbuscules (S3) : Mycorhizes à arbuscules séquestrent les métaux dans la paroi hyphale : filtre biologique sélectif
→ fiche #31 - mycorhize (V2) : Plante symbiotique exclut ou compartimente les métaux dans les vacuoles racinaires
→ fiche #26 · fiche #35 · fiche #64 - Sécurité alimentaire (H1) : Aliment à basse charge en métaux lourds malgré sol potentiellement contaminé
→ fiche #11 · fiche #25 · fiche #67 · fiche #80 - stress oxydatif (H2) : Moindre stress oxydatif intestinal et inflammation chronique abaissée
→ fiche #22 (pivot) · fiche #62
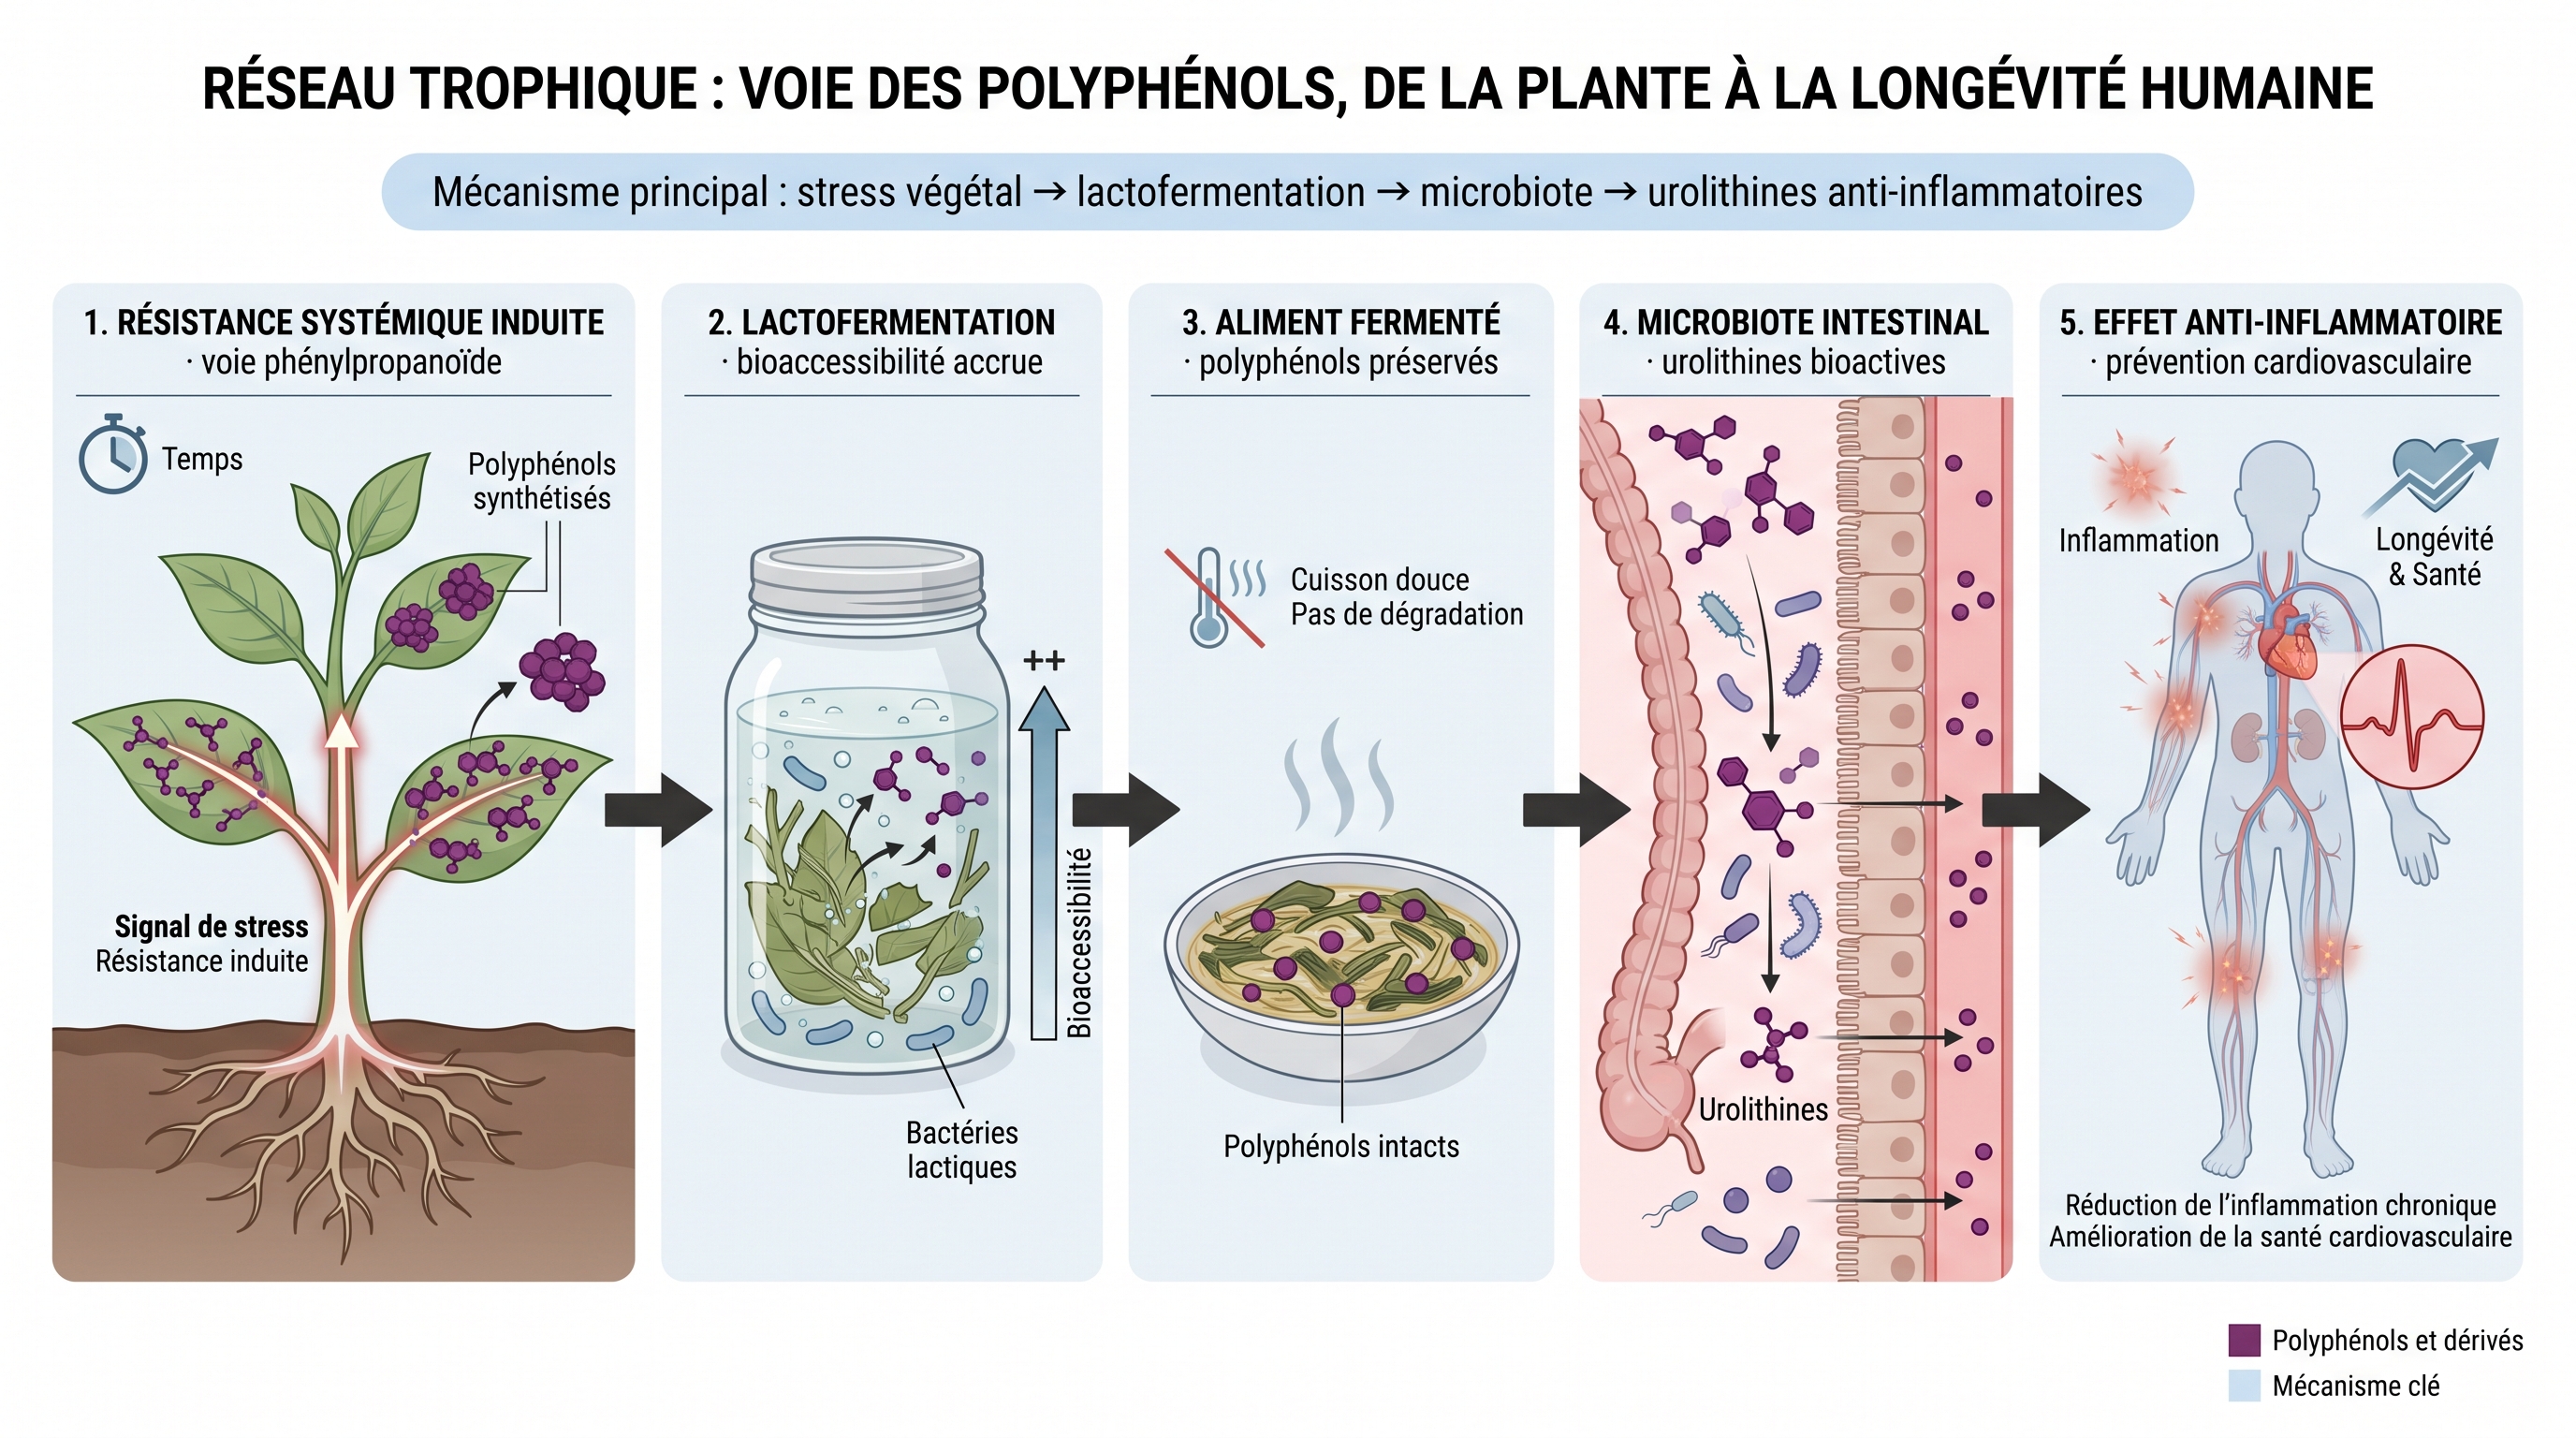
C23 : Polyphénols : du stress racinaire à la longévité humaine
Argument
Quand une plante subit un stress, elle ne fait pas que survivre : elle produit des polyphénols, ces molécules défensives. Si l'aliment passe ensuite par la lactofermentation — une conservation par bactéries lactiques, sans cuisson —, ces polyphénols deviennent plus accessibles au corps et sont en partie préservés. Dans notre intestin, le microbiote — nos bactéries — les transforme en dérivés actifs, comme les urolithines. À l'arrivée, des effets anti-inflammatoires et cardiovasculaires sont documentés, et les études épidémiologiques associent une alimentation riche en polyphénols à une plus grande longévité. Corrélation, pas preuve de cause à effet : la qualité d'un aliment se construit au champ puis à la fermentation.
Illustration : Fig. C23-A · C23 — Polyphénols : du stress racinaire à la longévité humaine…
Science
- Résistance systémique induite (V2) : Résistance systémique induite active la voie phénylpropanoïde et la production de polyphénols
→ fiche #32 · fiche #82 · fiche #86 - lactofermentation (V3) : Fermentation lactique enrichit la bioaccessibilité des polyphénols dans l'aliment transformé
→ fiche #67 · fiche #86 - Aliment fermenté (H1) : Polyphénols préservés en cuisson lactofermentée, densité nutritionnelle fonctionnelle
→ fiche #1 · fiche #86 - urolithines (H2) : Métabolisation par le microbiote intestinal en urolithines et équol, dérivés bioactifs
→ fiche #13 · fiche #20 · fiche #86 - inflammation chronique (H2) : Effet anti-inflammatoire systémique, longévité métabolique, prévention cardiovasculaire
→ fiche #86
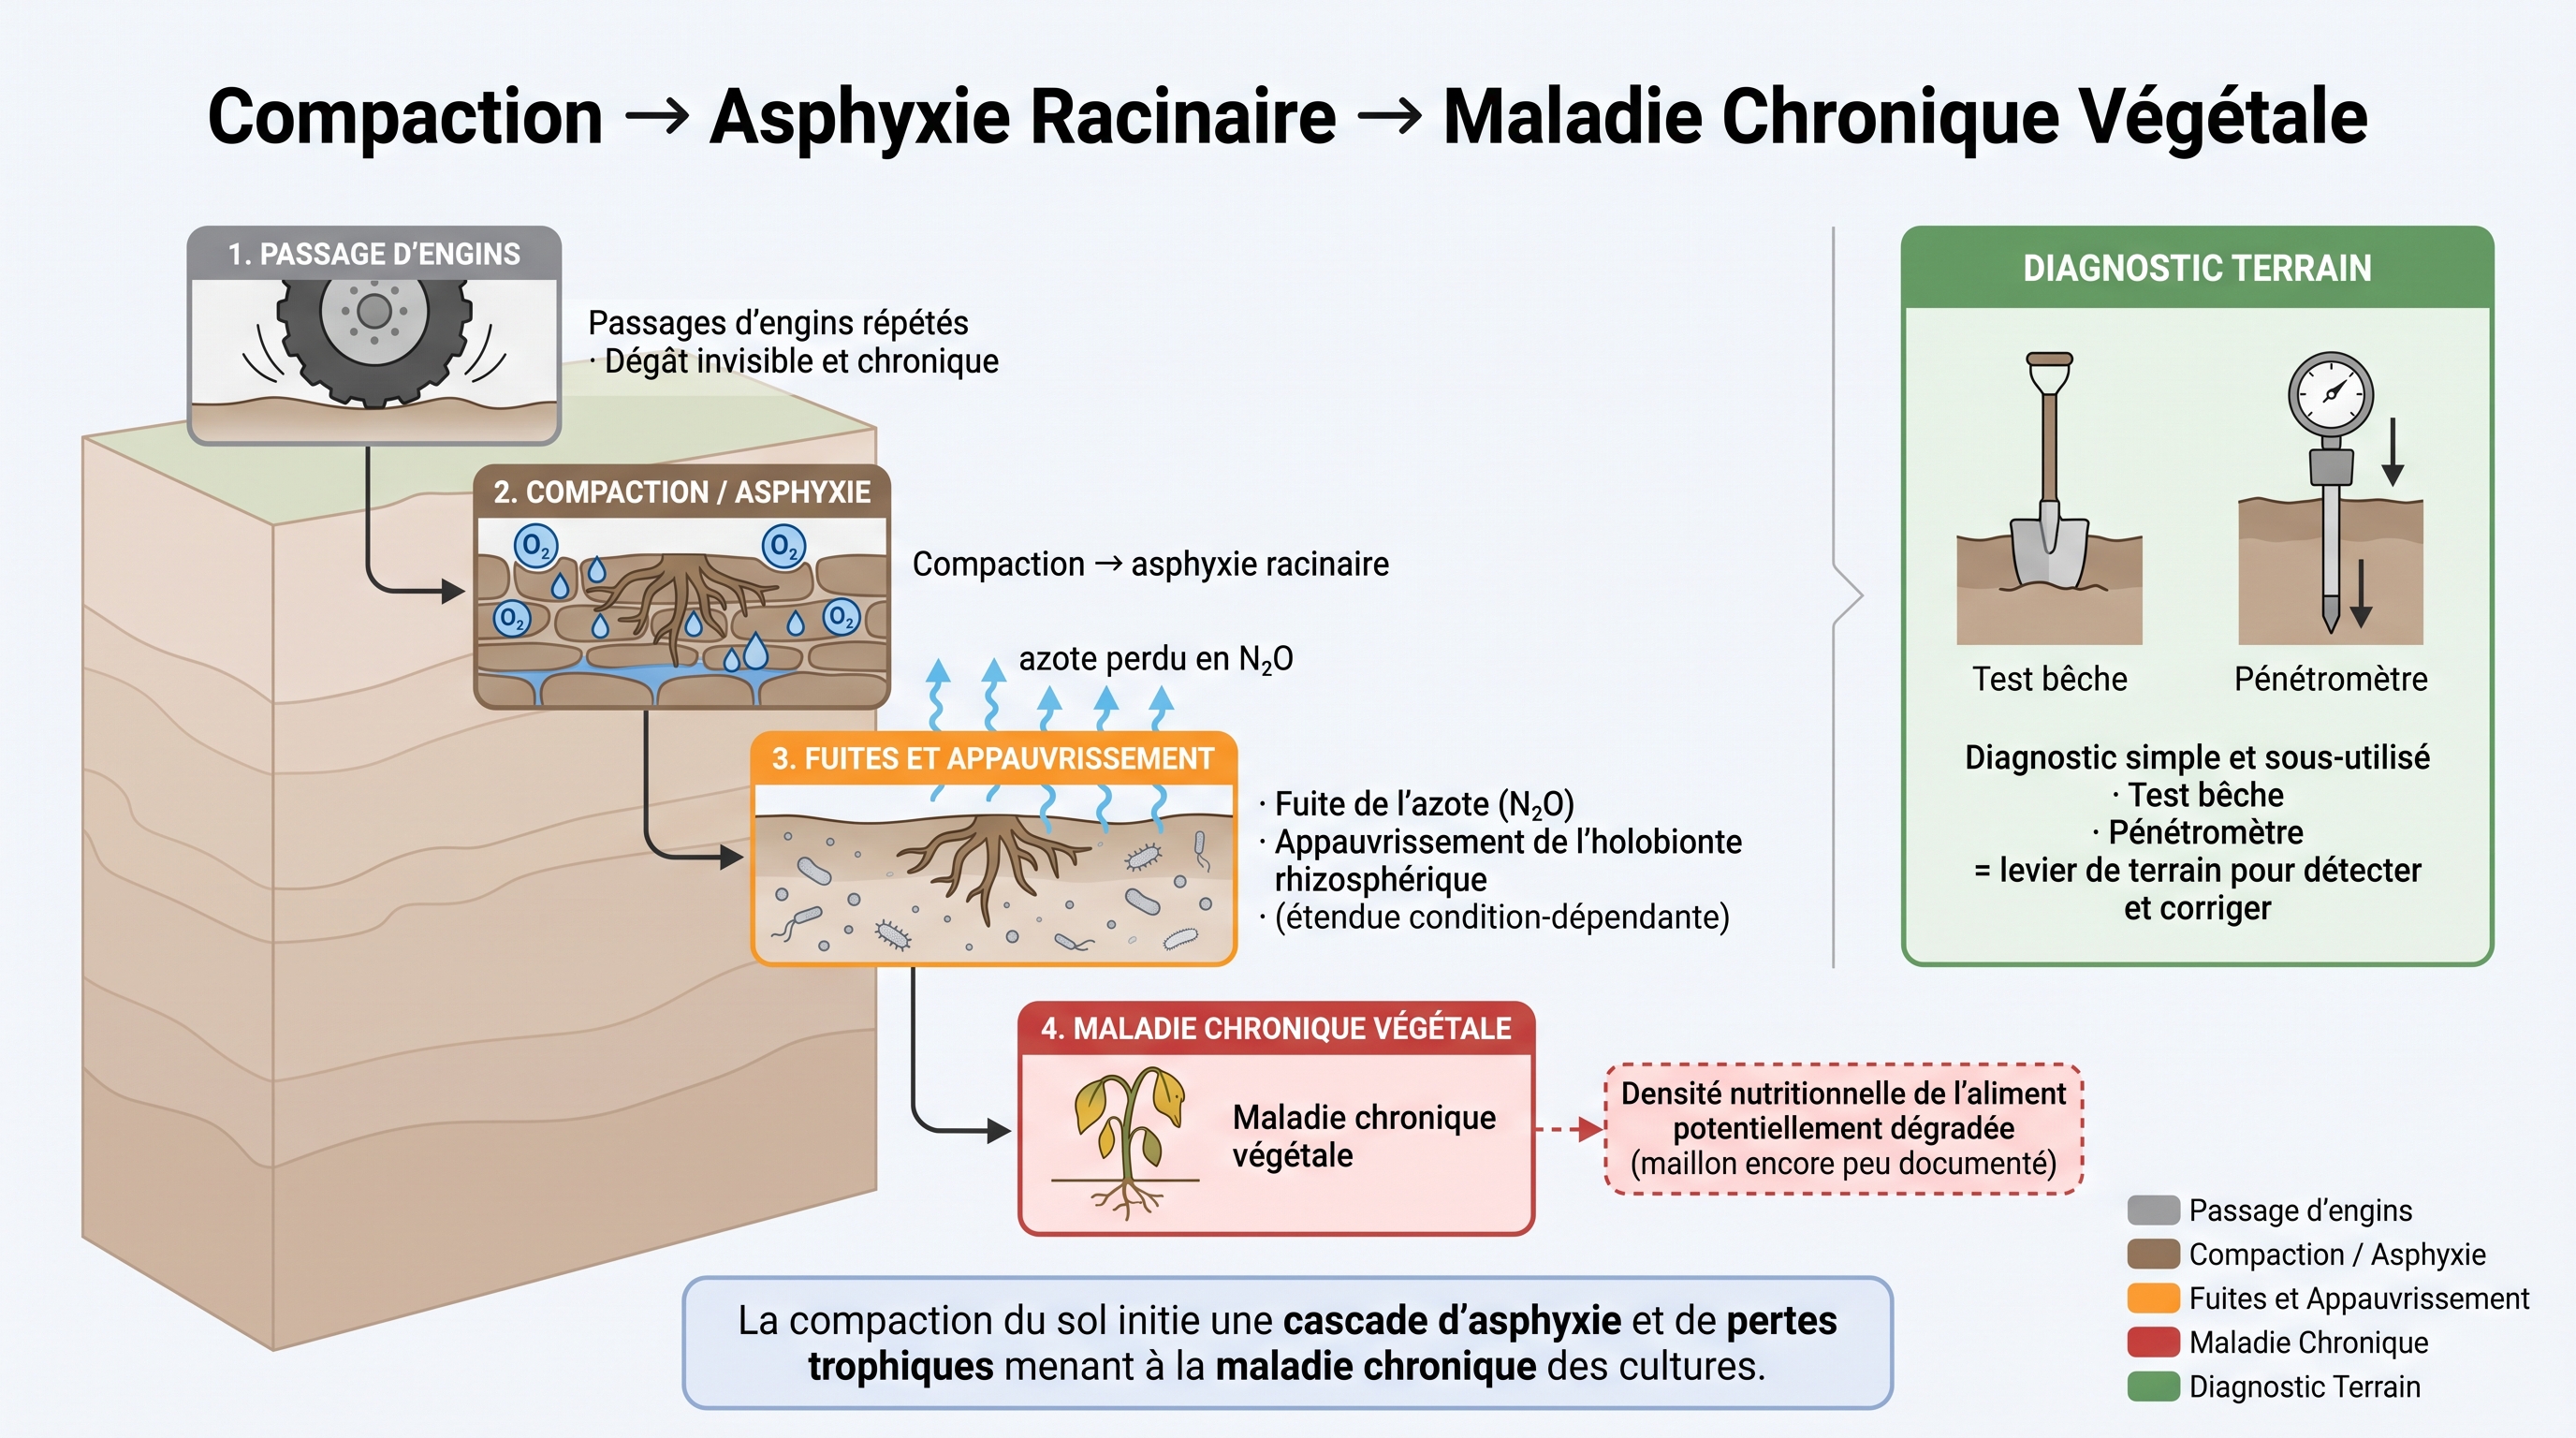
C24 : Compaction → asphyxie racinaire → maladie chronique végétale
Argument
Le passage répété des engins tasse le sol en profondeur, sans que rien ne se voie en surface. Ce tassement détruit les gros pores qui laissent circuler l'air et l'eau : en conditions humides, l'eau stagne et les racines manquent d'oxygène — c'est l'asphyxie racinaire. Faute d'air, une partie de l'azote du sol s'échappe en protoxyde d'azote, un gaz à effet de serre. Les racines, confinées en surface, voient leur cortège de micro-organismes s'appauvrir et deviennent plus vulnérables aux maladies. La qualité de l'aliment pourrait s'en ressentir, même si ce dernier maillon reste peu documenté. Le réflexe simple : une bêche, ou un pénétromètre (une sonde qui mesure la dureté du sol), suffit à déceler ce tassement et à enclencher sa correction.
Illustration : Fig. C24-A · C24 — Compaction → asphyxie racinaire → maladie chronique végétale…
Science
- compaction du sol (P2) : Point de départ : les passages d'engins et la charge à l'essieu induisent une compaction de subsurface, chronique et peu visible.
→ fiche #79 (cadre) - macroporosité (S1) : Cette compaction détruit la macroporosité du sol et fait chuter la conductivité hydraulique.
→ fiche #79 (cadre) · fiche #87 - anoxie racinaire (S0) : La porosité effondrée, l'eau stagne : saturation transitoire et anoxie racinaire chronique en conditions humides.
→ fiche #23 · fiche #26 · fiche #79 (cadre) · fiche #87 - dénitrification (S4) : En conditions anoxiques, la dénitrification s'accélère : pertes d'azote en protoxyde d'azote (N₂O) et baisse de l'efficience azotée.
→ fiche #79 (cadre) · fiche #81 · fiche #87 - Holobionte (V2) : Privées d'oxygène et cantonnées en surface, les racines voient leur holobionte rhizosphérique s'appauvrir, d'où une vulnérabilité accrue aux pathogènes.
→ fiche #21 (cadre) · fiche #87 - densité nutritionnelle (H1) : Au terme de la cascade, la maladie chronique végétale dégrade la densité nutritionnelle de l'aliment — perte en micronutriments et antioxydants, impact direct sur la santé des populations qui en dépendent.
→ fiche #87 · fiche #89 (pivot) - profil sol (P1) : Levier de terrain : le diagnostic visuel par la bêche et le pénétromètre, simple et sous-utilisé, détecte la compaction et enclenche sa correction.
→ fiche #243 · fiche #352 (pivot)
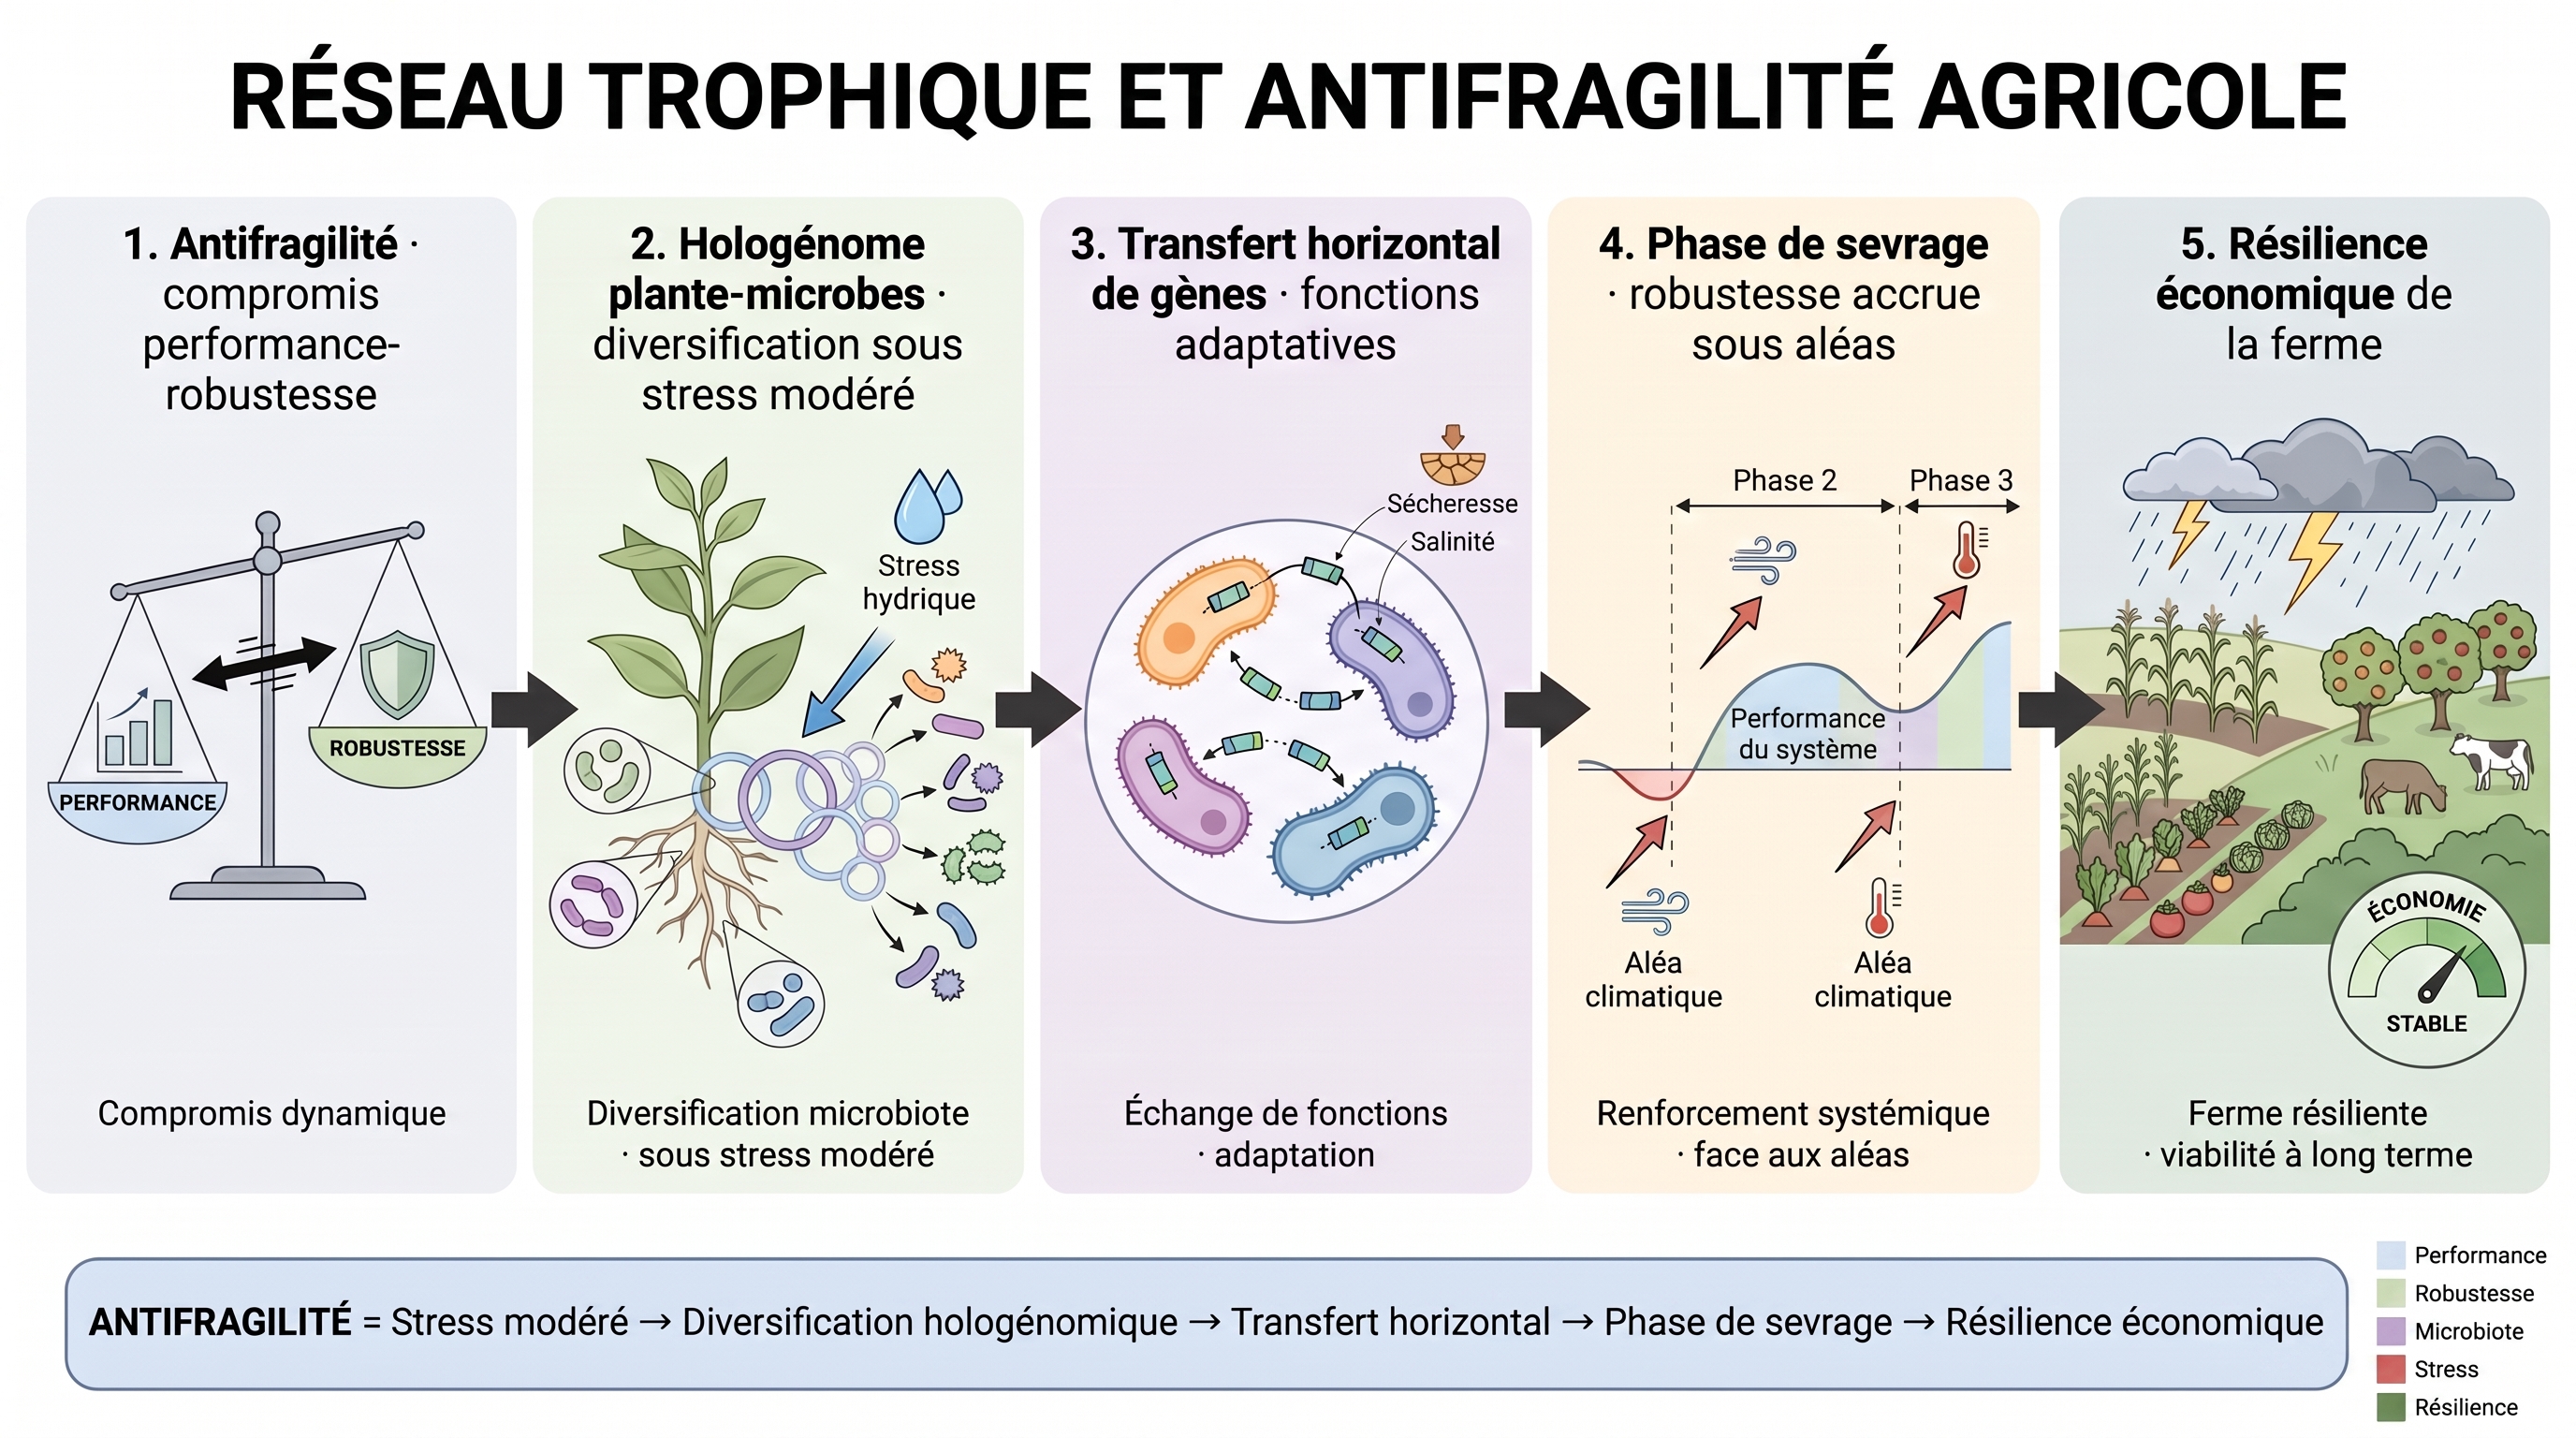
C25 : Antifragilité : du stress hydrique à l'innovation génomique
Argument
Et si une difficulté modérée, loin d'affaiblir, renforçait ? C'est l'intuition de l'antifragilité, un cadre de pensée plutôt qu'un mécanisme prouvé de bout en bout. En biologie végétale, des travaux suggèrent qu'un stress hydrique modéré pousserait la plante et ses micro-organismes associés (son « hologénome ») à se diversifier, voire à échanger des gènes utiles face à la sécheresse. Sur le terrain, certains praticiens décrivent une « phase de sevrage » où le système, moins assisté, gagnerait en robustesse. Tout cela reste interprétatif ; mais l'idée est féconde : une ferme qui accepte les aléas plutôt que de les fuir pourrait y gagner une résilience économique. Et un système moins assisté, plus autonome face aux aléas, dépendrait moins des intrants dont les excès peuvent dégrader la qualité de l'eau.
Illustration : Fig. C25-A · C25 — Antifragilité : du stress hydrique à l'innovation génomique…
Science
- Antifragilité (F2) : La loi de Hamant décrit, dans les systèmes vivants, un compromis entre performance et robustesse.
→ fiche #86 - stress hydrique (S2) : Le déclencheur du mécanisme : le stress hydrique sélectionne les holobiontes capables de tolérer le déficit — il n'est pas subi mais traduit en pression de sélection. C'est lui qui fait basculer le système du cadre antifragile vers l'innovation génomique, le matériau biologique étant mis à l'épreuve par la contrainte hydrique.
→ fiche #36 - Hologénome (V2) : Un stress modéré stimule la diversification de l'hologénome plante-microbes.
→ fiche #32 · fiche #86 · fiche #88 - transfert horizontal de gènes (S2) : En situation de stress, le transfert horizontal de gènes recrute des fonctions adaptatives (sécheresse, salinité).
→ fiche #1 · fiche #18 · fiche #19 · fiche #20 +5 - phase de sevrage (P5) : En phase de sevrage, le système gagne en robustesse sous les aléas climatiques.
→ fiche #1 · fiche #15 · fiche #26 · fiche #32 +2 - Résilience (F2) : La ferme antifragile tire sa résilience économique de la valorisation des compromis.
→ fiche #11 · fiche #13 · fiche #21 (cadre) · fiche #62 +6
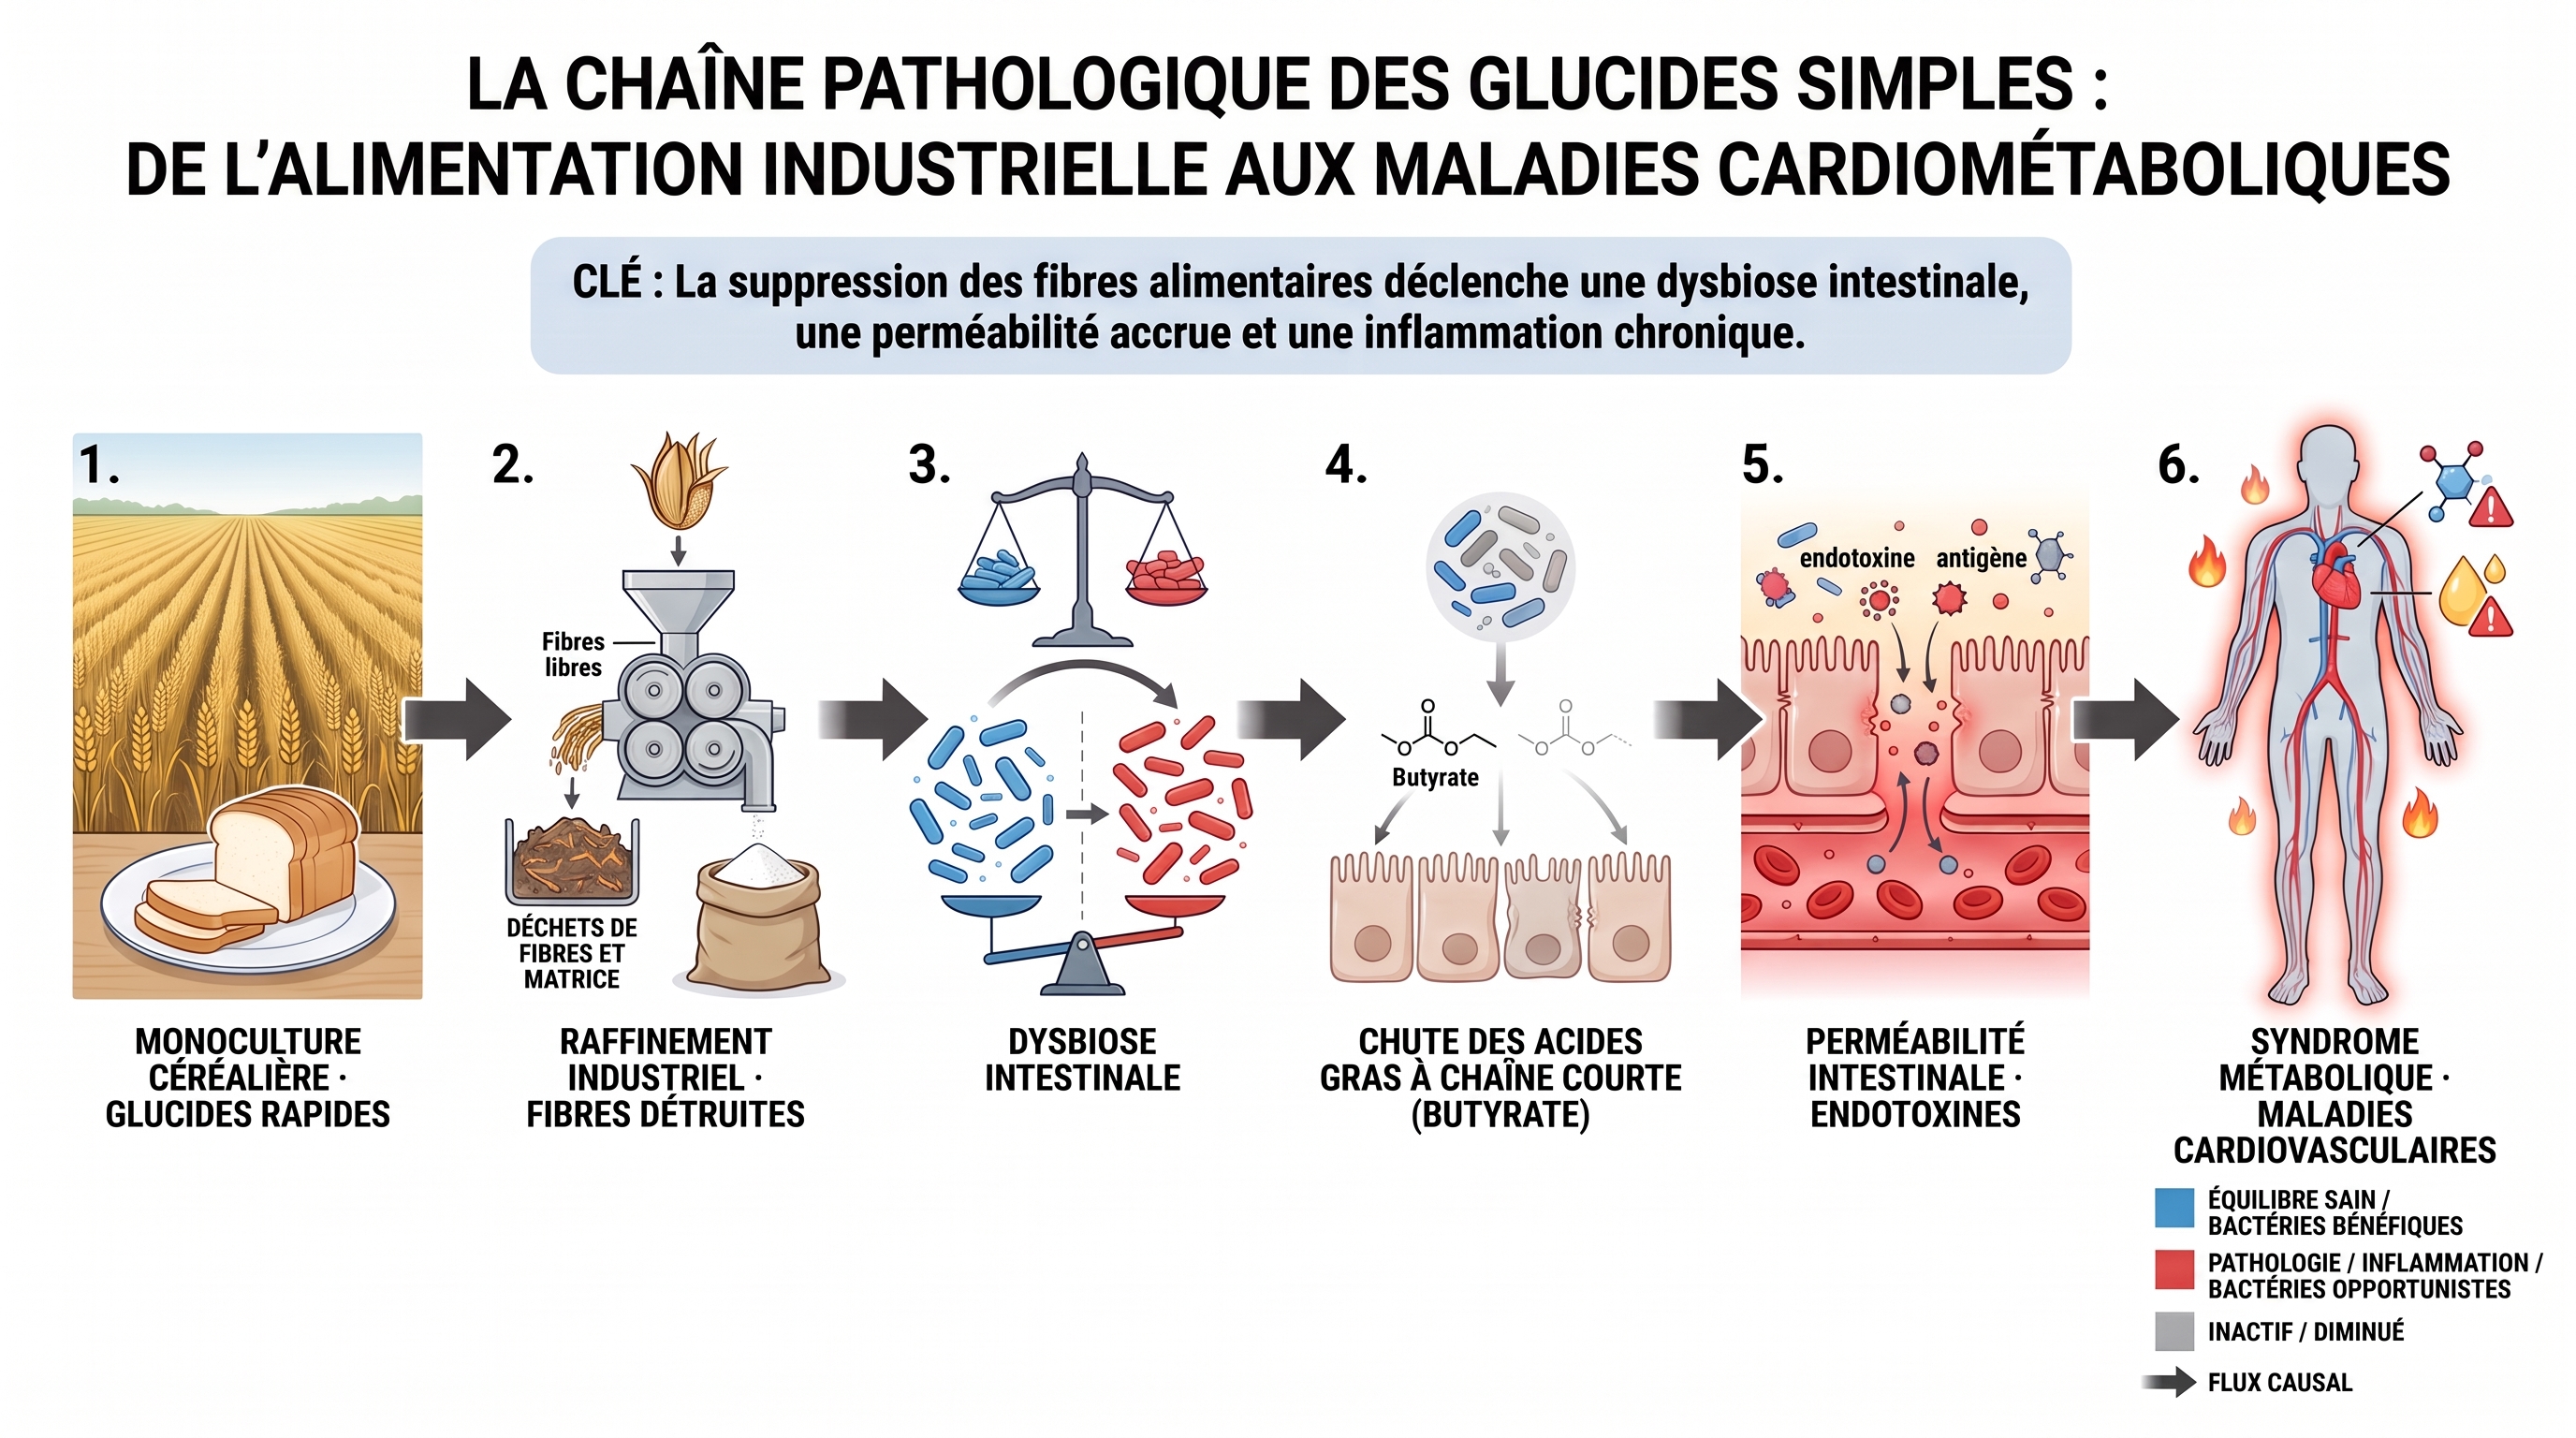
C26 : Sucre simple → dysbiose intestinale → maladie cardiométabolique
Argument
Un choix d'agriculture peut se lire dans notre intestin. La monoculture céréalière oriente l'alimentation vers des sucres rapides, que le raffinage prive de leurs fibres et de leur matrice. Or les fibres nourrissent notre microbiote, nos bactéries intestinales : sans elles, sa composition se déséquilibre — certaines familles prolifèrent, d'autres reculent (tendance variable selon les études). Les bactéries qui fabriquent le butyrate, cet acide gras qui entretient la barrière intestinale, se raréfient. La barrière s'ouvrirait, laissant filtrer des toxines bactériennes qui entretiendraient une inflammation de bas grade — un maillon aux preuves encore émergentes et non consensuelles. Installée, cette inflammation est associée au syndrome métabolique et aux maladies cardiovasculaires.
Illustration : Fig. C26-A · C26 — Sucre simple → dysbiose intestinale → maladie cardiométabolique…
Science
- monoculture (P2) : Point de départ : la monoculture céréalière à fort index glycémique simplifie l'assolement et oriente l'alimentation vers des glucides rapides.
→ fiche #86 - raffinement industriel (H1) : En aval, le raffinement industriel détruit fibres et matrice alimentaire native, privant le bol alimentaire de ses substrats fermentescibles.
→ fiche #34 · fiche #86 - Pathologie de l'homéostasie intestinale (H2) : Privé de fibres, le microbiote bascule en dysbiose : les Proteobacteria prolifèrent tandis que les Bacteroidetes s'effondrent.
→ fiche #13 · fiche #86 - Acides gras à chaîne courte (H2) : La dysbiose appauvrit les bactéries fermentaires productrices d'acides gras à chaîne courte (butyrate surtout) ; or le butyrate nourrit les colonocytes et entretient la barrière intestinale. Sa chute est le maillon mécaniste vers la rupture de barrière.
→ fiche #131 · fiche #219 (pivot) - Perméabilité intestinale (H2) : La chute du butyrate compromet les jonctions serrées : la barrière devient perméable (leaky gut), laissant passer endotoxines et antigènes — porte d'entrée de l'inflammation systémique de bas grade.
→ fiche #86 - syndrome métabolique (H1) : Installée durablement, cette inflammation de bas grade nourrit le syndrome métabolique et les maladies cardiovasculaires — terme de la cascade.
→ fiche #86
C27 : Cycle érosion civilisationnelle : monoculture → effondrement (Sumer/Maya/Rome/Dust Bowl)
Argument
Sumer, les Mayas, Rome, le Dust Bowl américain : derrière ces effondrements, un même motif se répète — un sol épuisé par la simplification. Quand une société mise tout sur une seule culture, elle fragilise la régulation naturelle du sol. L'érosion emporte alors le sol fertile bien plus vite qu'il ne se reconstruit ; de nos jours, on estime à environ 24 milliards de tonnes la terre fertile perdue chaque année. Certains sols irrigués se salinisent : le sel chasse les éléments qui tiennent la terre, et elle se désagrège. La diversité des variétés cultivées se réduit, la dépendance aux importations s'installe. Cette lecture reste une typologie historique, pas une loi mécanique ; mais elle rappelle que les civilisations durables, elles, diversifiaient.
Illustration : Fig. C27-A · C27 — Cycle érosion civilisationnelle : monoculture → effondrement (Sumer/Maya/Rome/Dust Bowl)…
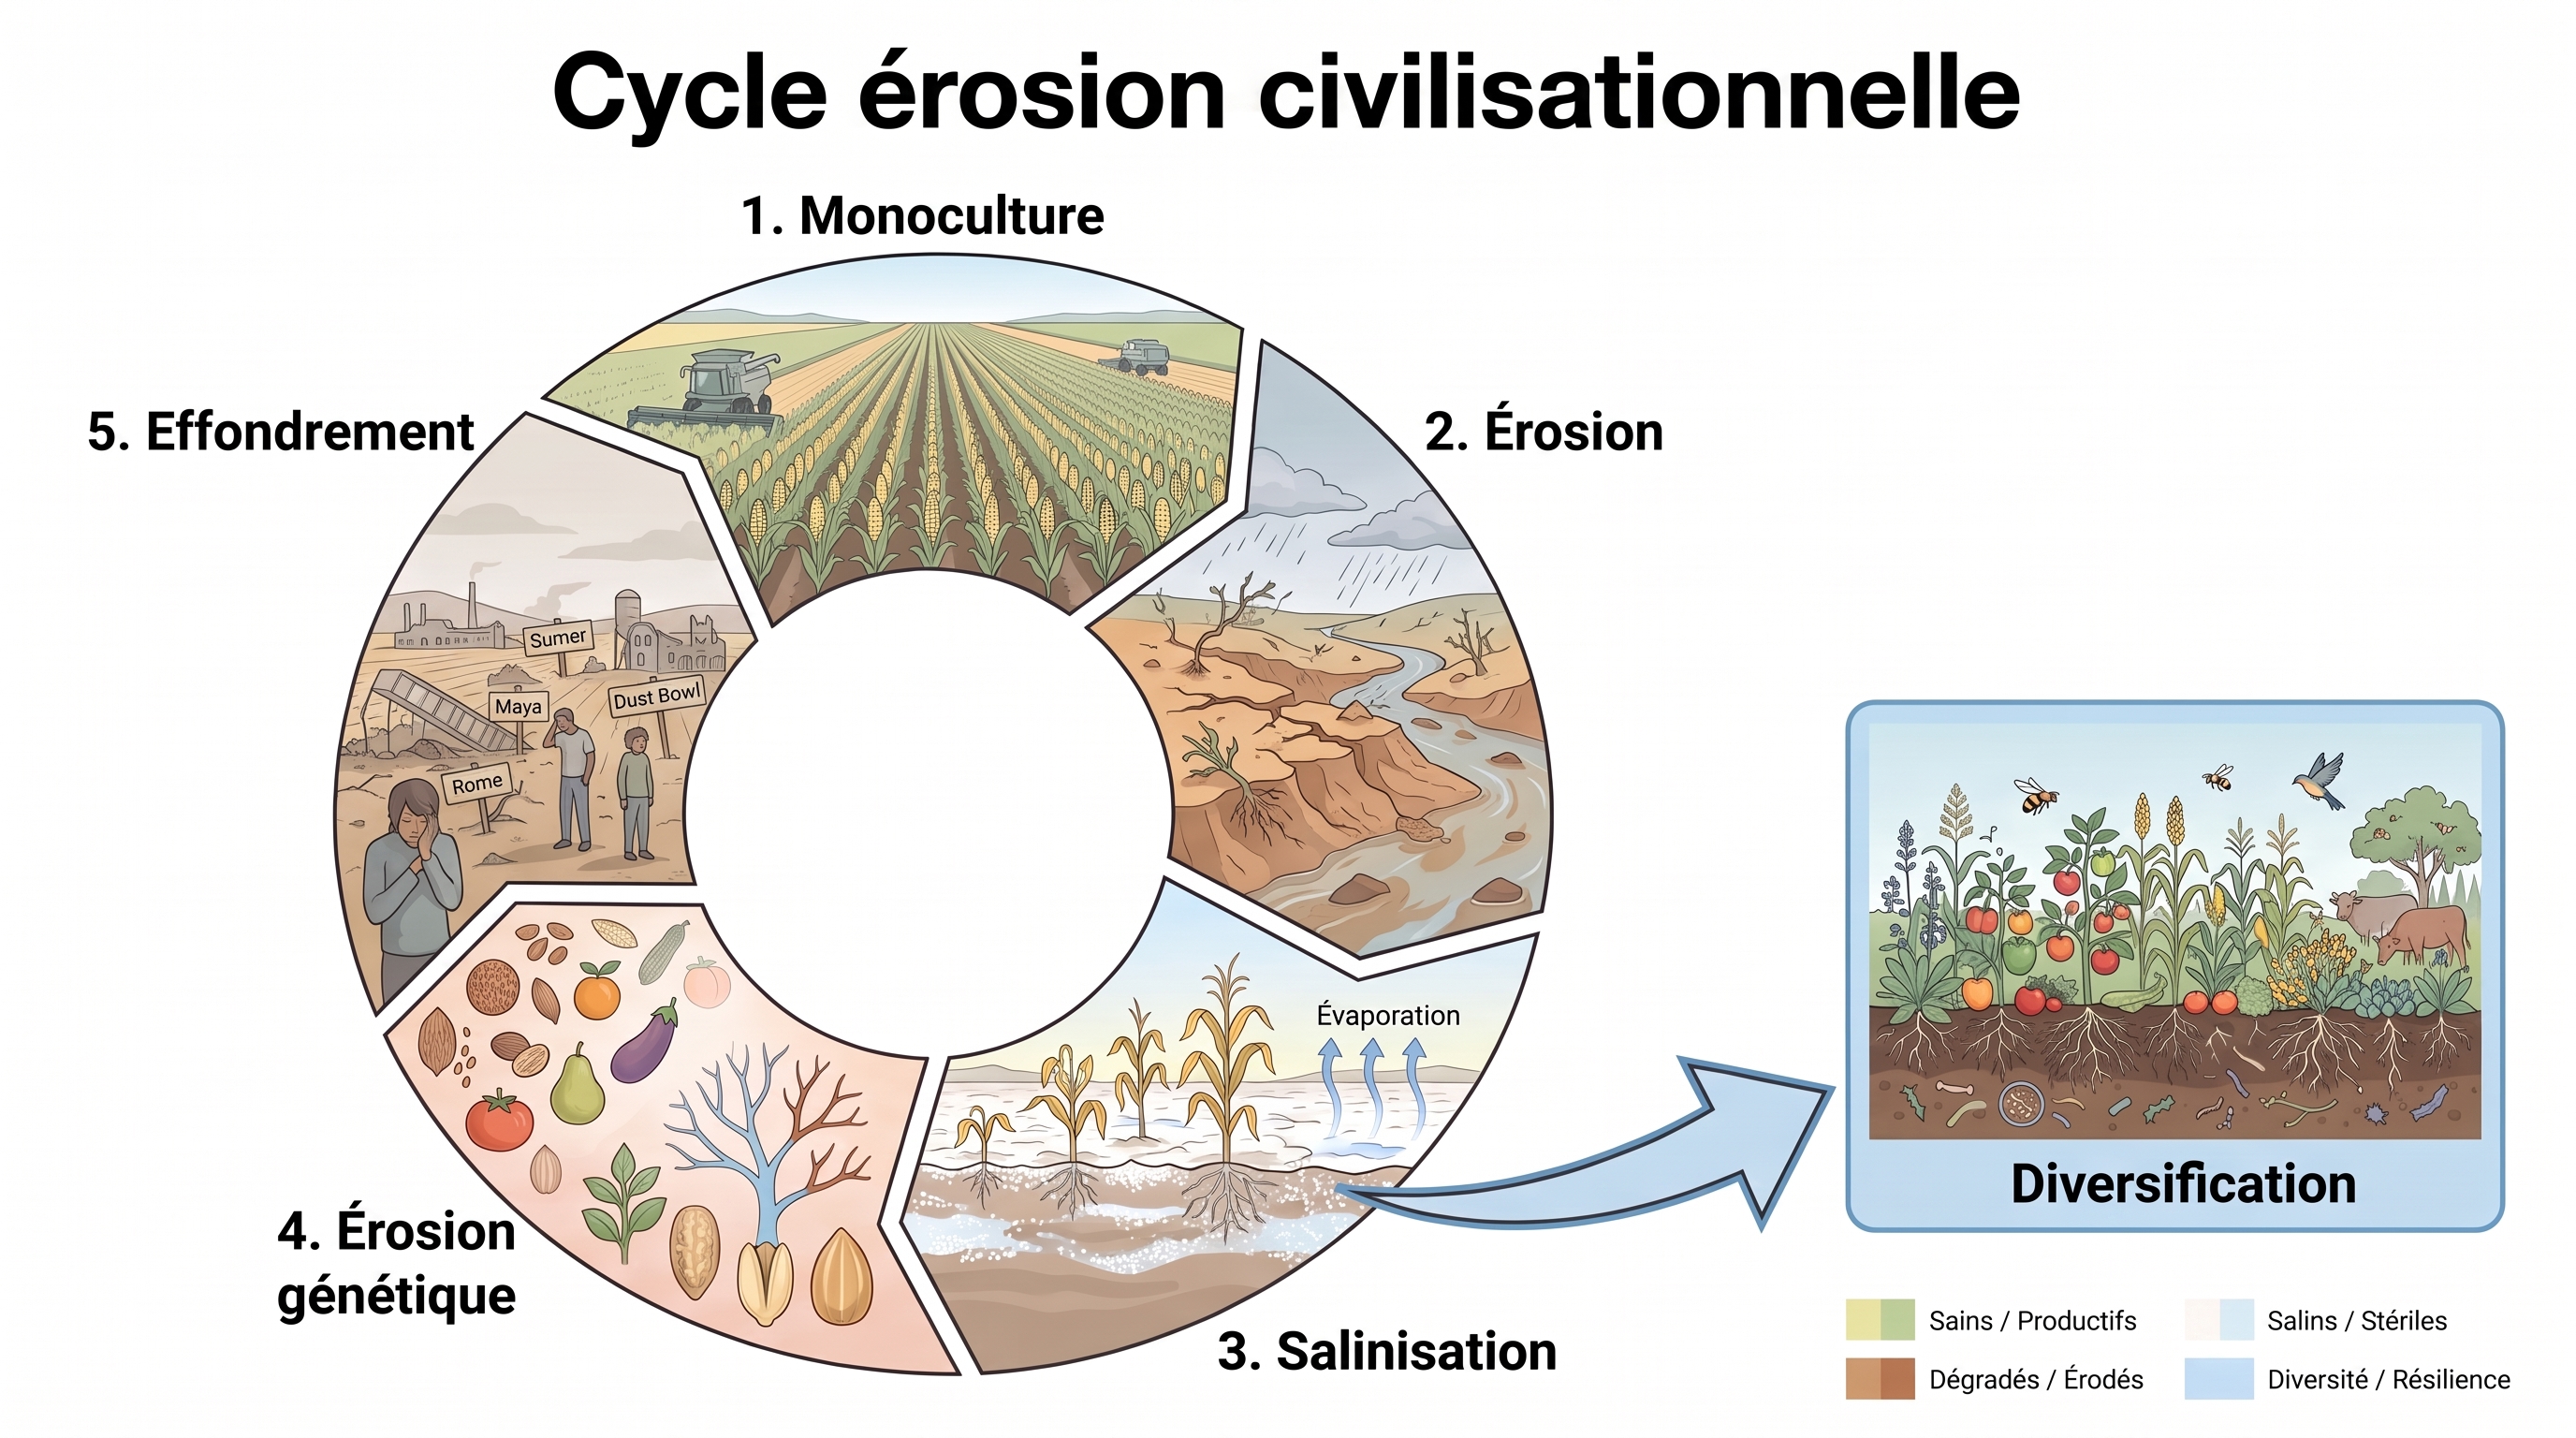
Science
- monoculture (P2) : Simplification trophique : système simplifié (1 espèce dominante, intrants standardisés). Sumer = orge ; Maya = maïs ; Dust Bowl USA = blé. Perte fondamentale de la régulation top-down.
→ fiche #72 (cadre) · fiche #139 - érosion (S1) : Vitesse érosion 10-100× pédogenèse (Pimentel 1995, Montgomery 2007). Formation 100-1000 ans/cm vs destruction 10-100×. Données contemporaines : environ 24 Gt de sol fertile perdues par an au niveau mondial (UNCCD 2017).
→ fiche #72 (cadre) - Salinisation des sols (S1) : Disrupt Fe-P-S-Na sur 1500 ans (Sumer). Na⁺ déplace Ca²⁺ → effondrement cation bridging → MAOM se désagrège → CEC s'effondre. Manifeste : terres cultivées deviennent stériles.
→ fiche #72 · fiche #92 - érosion génique (F2) : Sur des sols appauvris, la monoculture érode aussi la diversité génétique cultivée : un pool variétal étroit, vulnérable aux maladies et aux aléas, plafonne les rendements et installe la dépendance aux importations (Rome importe massivement d'Égypte et du Maghreb) — crises alimentaires récurrentes.
→ fiche #72 · fiche #113 - Effondrement civilisationnel (F1) : Effondrement institutionnel ou migration. Sumer 1500 ans ; Maya 250-900 AD effondrement progressif ; Dust Bowl 1936 = Soil Conservation Service 1935 = réponse politique. Civilisations durables (Inca terrasses, Chinois zones humides) = antifragiles par diversification.
→ fiche #72 · fiche #80
C28 : Enhanced Rock Weathering : roche broyée → cation bridging → MAOM stable + CDR
Argument
Et si un simple épandage de poudre de roche — du basalte finement broyé — aidait à fixer le carbone ? C'est le pari de l'altération accélérée. Au contact du sol, les racines et leurs micro-organismes attaquent la roche par leurs acides, libérant calcium, magnésium et potassium. Ces éléments font double emploi : ils « pontent » la matière organique sur les argiles — des essais mesurent des hausses de carbone du sol à deux chiffres —, et ils piègent le CO2 sous forme de bicarbonates, du carbone dissous lentement emporté vers l'océan, où il demeure des millénaires. De quoi générer des crédits carbone additionnels. Deux prudences : les gains varient fortement selon les sols, et la roche peut libérer des traces de métaux — un risque que le récit climatique doit encore instruire.
Illustration : Fig. C28-A · C28 — Enhanced Rock Weathering : roche broyée → cation bridging → MAOM stable + CDR…
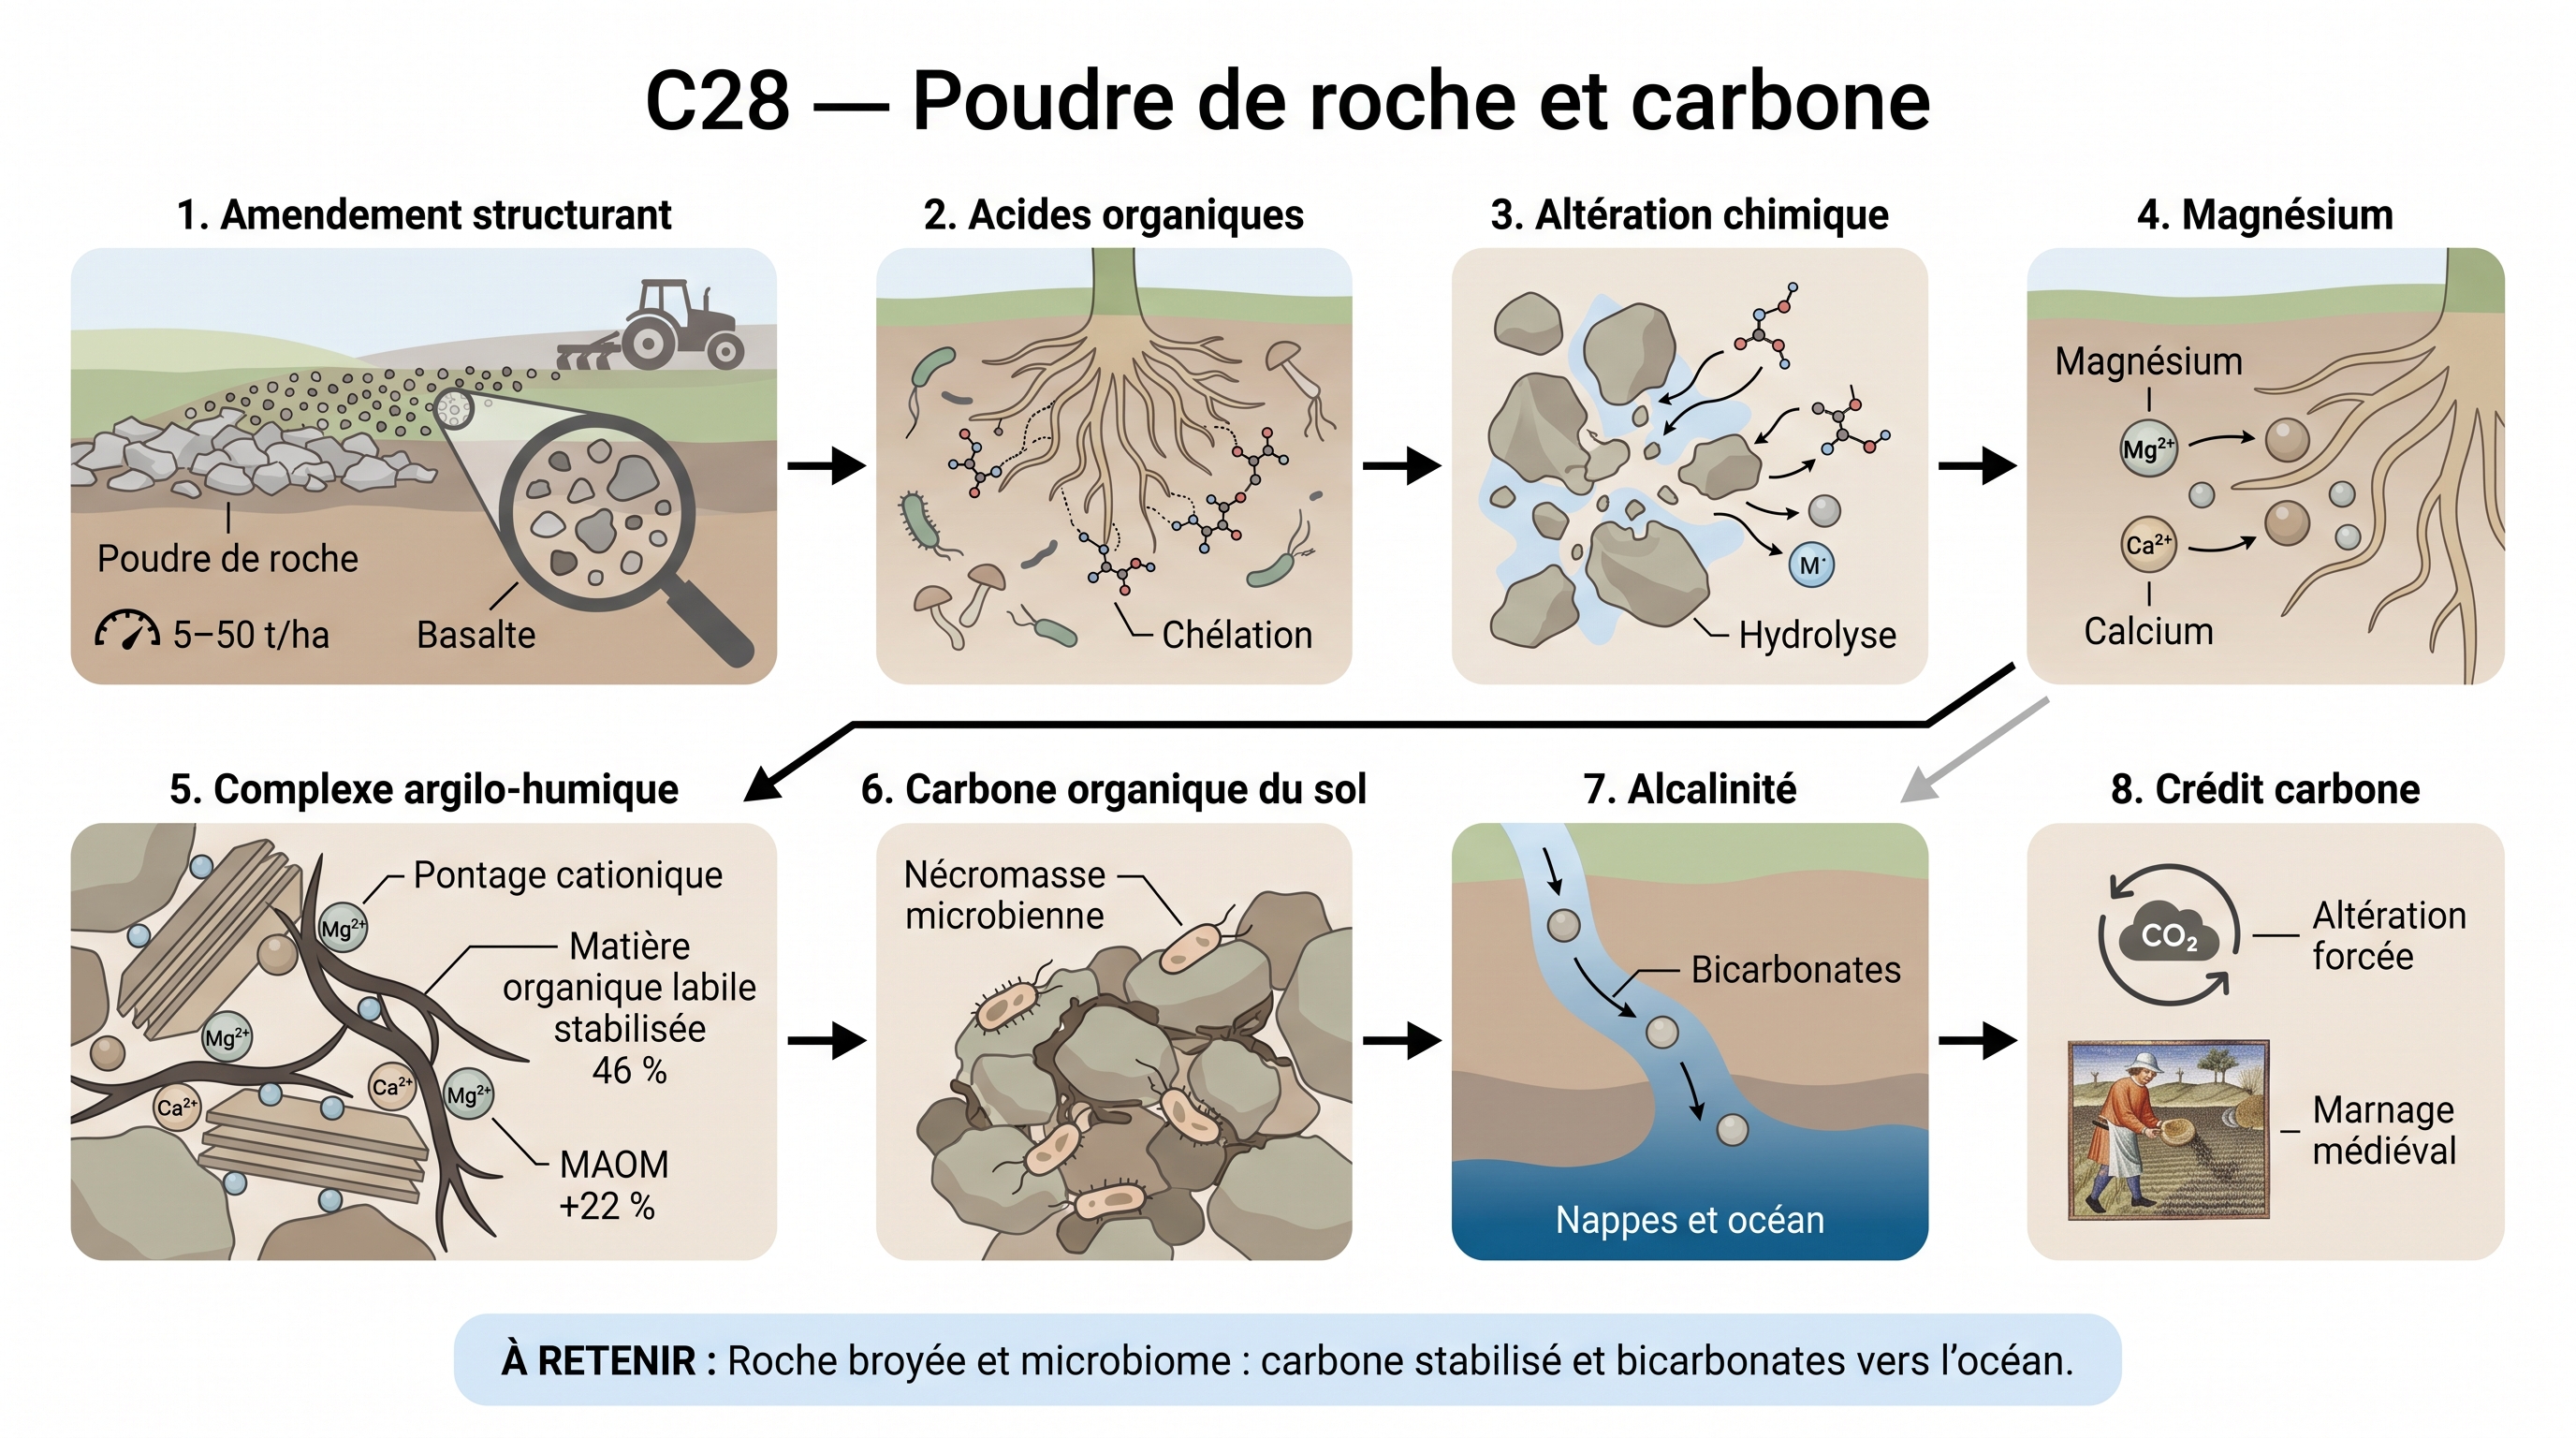
Science
- amendement structurant (P1) : Roche silicatée broyée (basalte ~50 µm, dunite, olivine) épandue sur cropland. Granulométrie clé : surface spécifique × cinétique altération. Apport 5-50 t/ha selon roche.
→ fiche #25 (pivot) · fiche #92 (cadre) - acides organiques (S2) : Racines et microbiome exsudent des acides organiques (citrate, oxalate, gluconate) qui chélatent les cations et abaissent le pH au contact des grains de roche : c'est le moteur biotique qui amplifie fortement l'altération par rapport à un sol nu (Drever 1994).
→ fiche #134 · fiche #287 - Altération chimique (S4) : Ainsi attaqués, les silicates s'hydrolysent : la dissolution libère les cations et consomme le CO₂ dissous, d'autant plus vite que la granulométrie est fine (basalte ~50 µm).
→ fiche #92 (pivot) · fiche #134 - magnésium (S1) : Libération progressive Ca²⁺, Mg²⁺, K⁺, Si, P selon roche. Basalte : Ca/Mg/K disponibles +62-252 % (Richardson 2024). Mobilité préférentielle Ca²⁺ et Mg²⁺ vers la rhizosphère.
→ fiche #244 (pivot) - Complexe argilo-humique (S1) : Cation bridging Ca²⁺/Mg²⁺ entre groupements carboxylates organiques et sites argileux : MAOM +22 % (Buss 2023), MO labile stabilisée 46 %. Mécanisme central : le modèle du continuum structuré du sol (SCM).
→ fiche #92 (pivot) · fiche #208 (pivot) - matière organique associée aux minéraux (S4) : Une fraction se stabilise en MAOM via micro-condensation de la nécromasse microbienne sur les surfaces minérales : SOC +69-135 % en 0-20 cm sur basalte (Richardson 2024) — le puits de carbone biotique du sol.
→ fiche #65 · fiche #92 - alcalinité (S4) : En parallèle de ce puits biotique, les cations libérés équilibrent le CO₂ dissous sous forme de bicarbonates HCO₃⁻, lessivés vers les nappes puis l'océan où ils sont stockés 10⁴-10⁵ ans — le puits géochimique propre de l'ERW.
→ fiche #92 (pivot) · fiche #239 - crédit carbone (F2) : Bilan CDR additionnel 0,3-0,8 tCO₂/t roche, potentiel mondial 0,5-2 Gt CO₂/an cropland (Tao & Houlton 2024, Palma 2025). Trade-off : effet contre-productif plantes (Buss 2023) atténué par co-application organique (Almaraz 2025). Continuité historique : marnage médiéval = ERW carbonatique.
→ fiche #25 (cadre) · fiche #75 · fiche #92
C29 : Cycle K régénératif : du minéral verrouillé au cœur humain
Argument
Votre santé cardiovasculaire se joue en partie sous terre : la capacité d'un sol à libérer son potassium piégé conditionne la densité minérale des aliments de votre assiette. Ce minéral, essentiel à la régulation de la tension, est pour l'essentiel emprisonné dans les roches du sol (feldspaths, micas), hors d'atteinte des racines. Bactéries et champignons du sol le libèrent par des acides qui rongent la roche ; il rejoint alors la solution du sol, où la plante le puise. L'agriculture régénératrice referme la boucle : les résidus de culture restituent au sol l'essentiel du potassium prélevé, et des plantes à racines profondes le remontent du sous-sol. Au bout de la chaîne : des aliments plus denses en minéraux et, potentiellement, un moindre risque cardiovasculaire.
Illustration : Fig. C29-A · C29 — Cycle K régénératif : du minéral verrouillé au cœur humain…
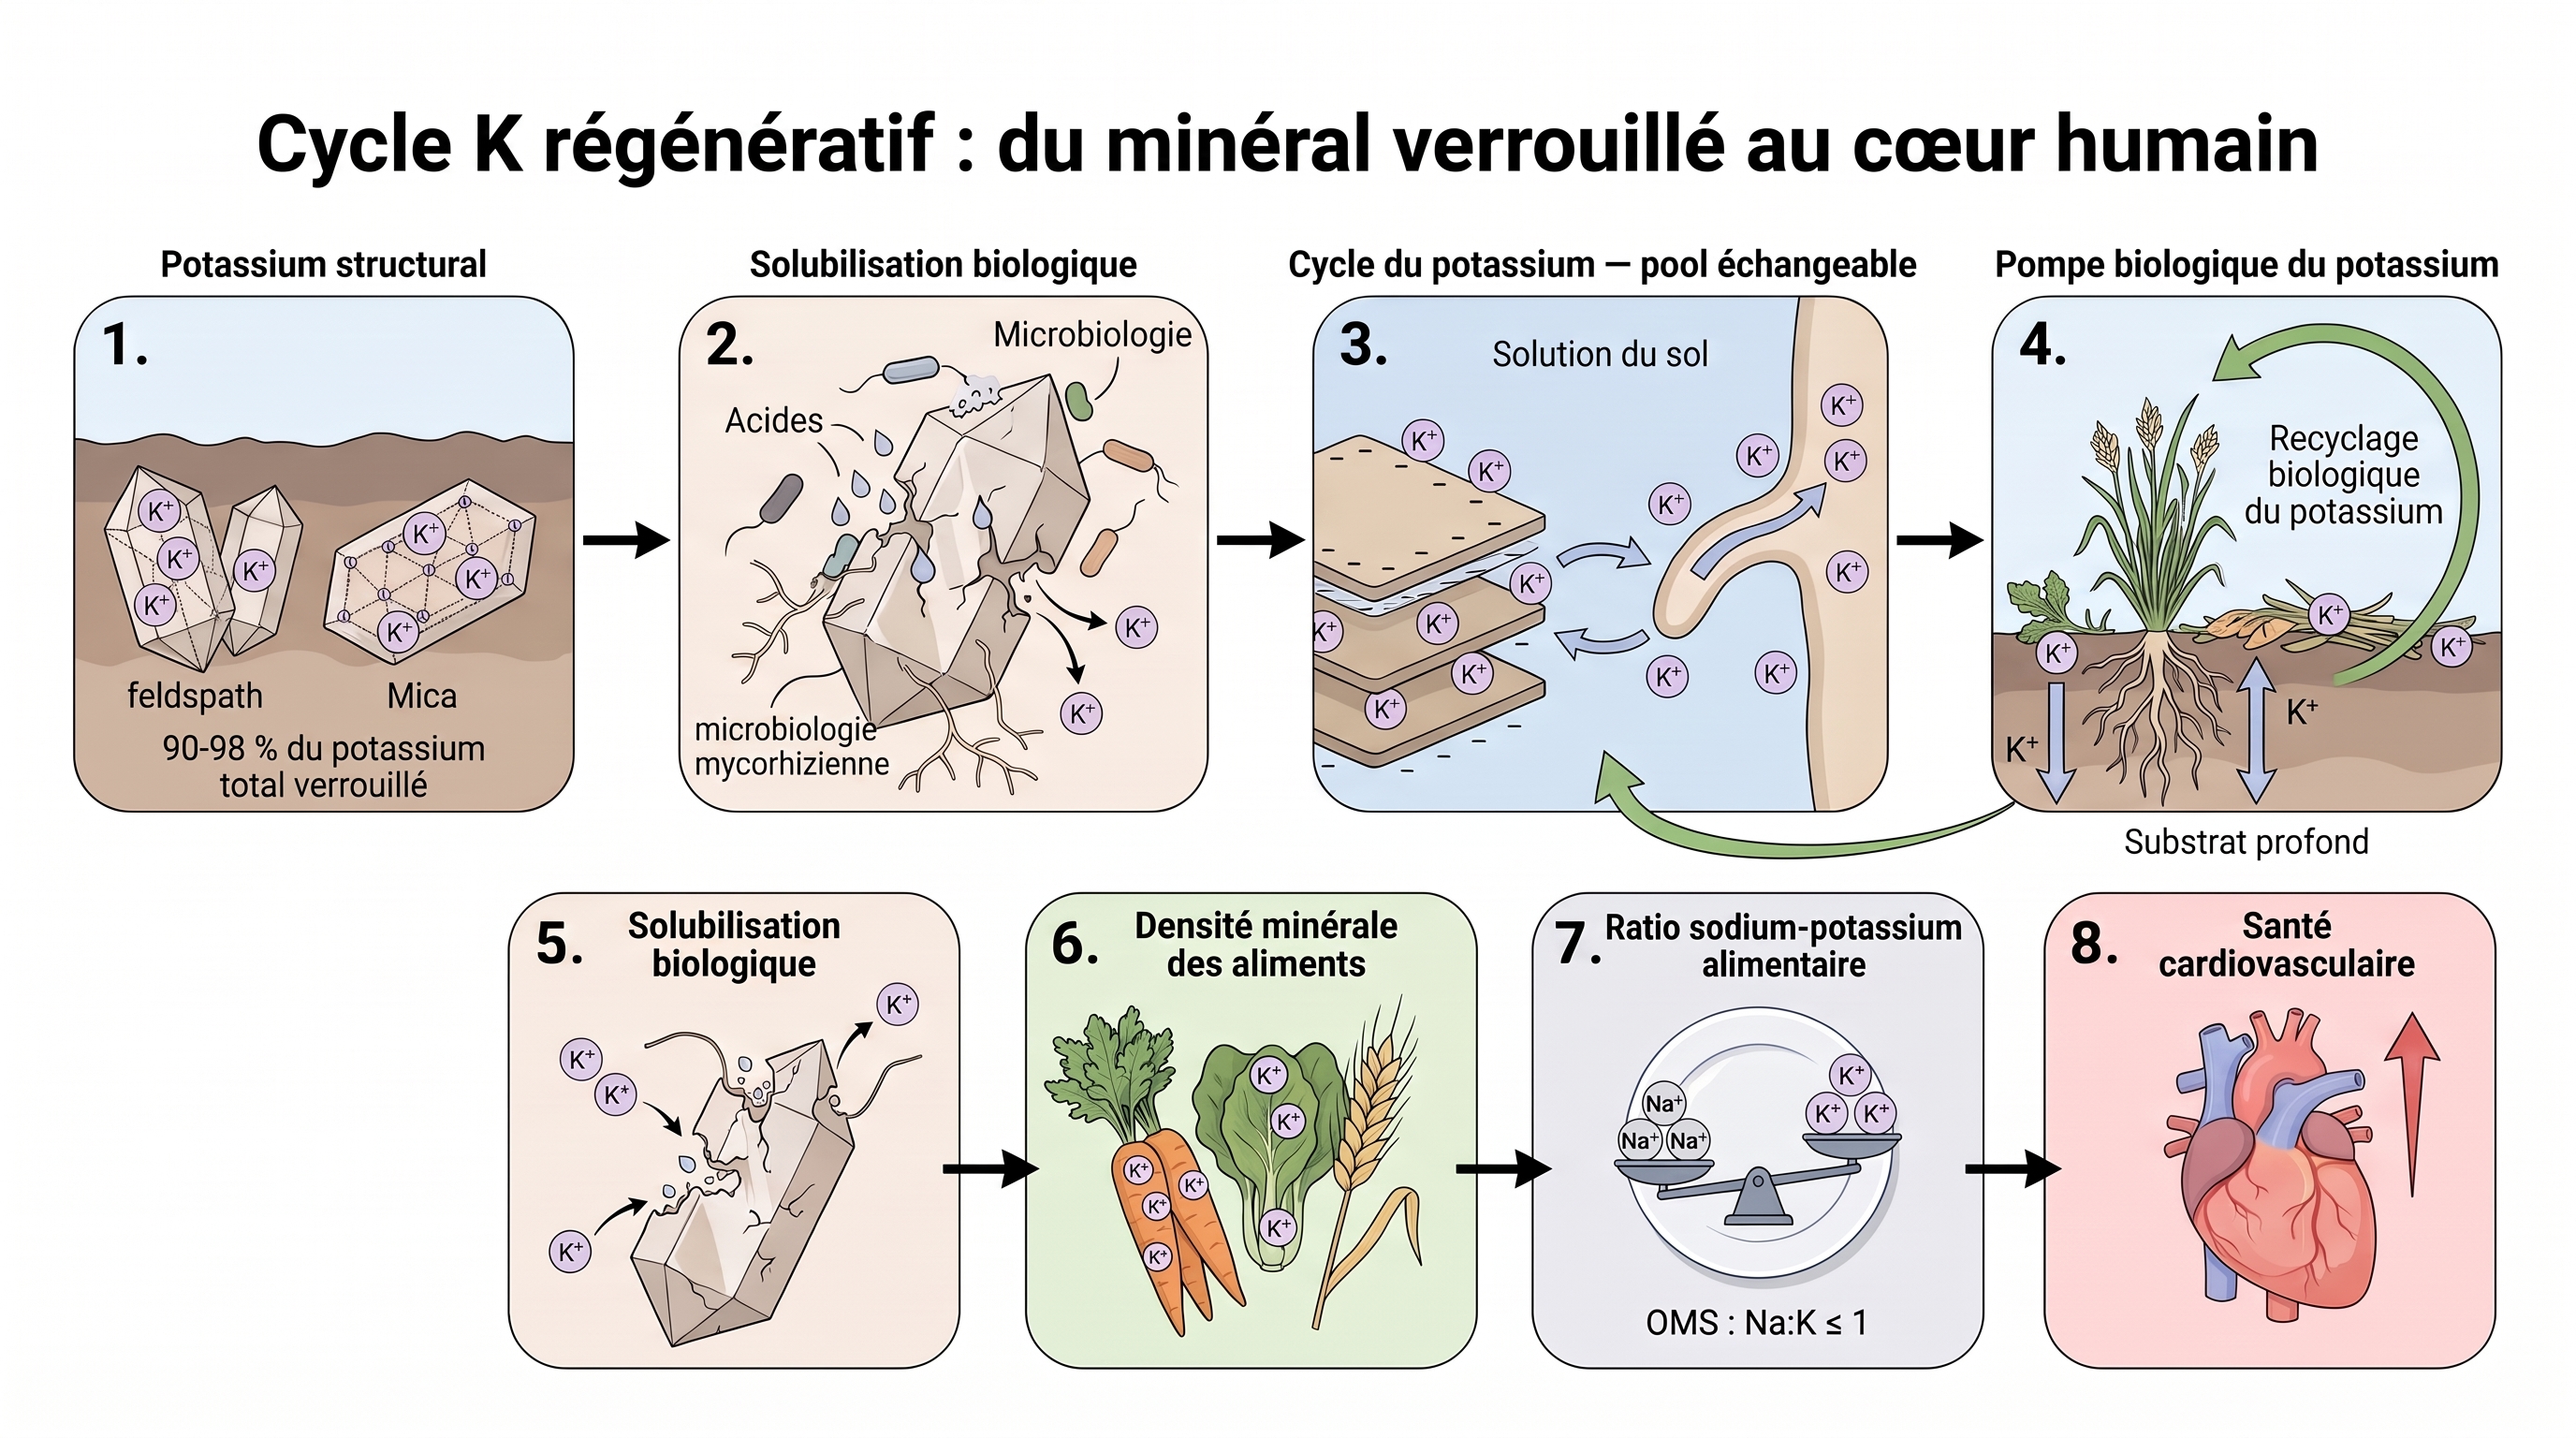
Science
- Potassium structural (S4) : Point de départ : 90-98 % du potassium total est verrouillé dans les feldspaths potassiques (orthose, microcline) et les micas (biotite, muscovite). Sa libération par altération géochimique pure est extrêmement lente. Le pool non-échangeable (1-10 %) entre les feuillets des argiles 2:1 (illite, vermiculite) constitue le second réservoir, fonctionnellement majeur (jusqu'à 73 % du K prélevé en culture intensive).
→ fiche #30 (cadre) · fiche #134 - solubilisation biologique (S4) : Activation biologique : les bactéries solubilisatrices de potassium (KSB — Bacillus mucilaginosus, edaphicus, circulans, Pseudomonas, Paenibacillus, Arthrobacter) et les réseaux fongiques mycorhiziens libèrent le K verrouillé via acidolyse (acides organiques de faible PM : citrique, tartrique, oxalique) et chélation des cations métalliques structurants (Al³⁺). Les hyphes exercent en plus des forces mécaniques créant des microfissures. Les lichens pionniers initient la pédogenèse via cristaux d'oxalates. Synergie AMF-bactéries décuple la mobilisation.
→ fiche #101 · fiche #134 (cadre) - cycle du potassium (S4) : Le K passe dans le pool échangeable (~1 % du total, adsorbé sur la CEC) puis en solution (ions K⁺ directement assimilables, ~1 % de l'échangeable). Seuil d'activation : les plantes sécrètent davantage d'exsudats dès que K solution < 10-20 µM. Flux altération biologique : 46-69 kg K/ha/an depuis le pool non-échangeable. Le paradoxe diagnostique : un K échangeable mesuré faible peut être compatible avec une nutrition adéquate si la cinétique de transfert depuis le non-échangeable est active.
→ fiche #30 (cadre) - Pompe biologique du potassium (P1) : Levier agronomique régénératif : recyclage interne du K via résidus de culture (75-80 % du K prélevé reste dans les résidus, libéré rapidement — 45 kg K/ha en 30 jours après destruction d'un couvert diversifié). Couverts à racines pivotantes pompent le K du sous-sol vers la surface (transfert vertical ascendant). KSB+feldspath réduit de 50 % les doses d'engrais potassiques minéraux sans perte de rendement. Synergie carbone-potassium : boucle de rétroaction positive (K → biomasse → C organique → CEC → rétention K).
→ fiche #30 · fiche #69 - Densité minérale des aliments (H1) : Le K mobilisé alimente la plante dont il régule l'accumulation des sucres et la qualité organoleptique. La densité minérale des cultures dépend directement de la capacité du sol à mobiliser ses réserves K. Le déclin historique 1999-2015 du K dans la viande de bœuf, le porc, la dinde, les fruits, les légumes et les céréales est corrélé aux pratiques de fertilisation insoutenables (prélèvements > apports). L'élévation du CO₂ atmosphérique pourrait aggraver cette dilution minérale.
→ fiche #39 · fiche #64 - Ratio sodium-potassium alimentaire (H1) : Le ratio molaire Na:K alimentaire est aujourd'hui considéré comme un prédicteur de mortalité plus pertinent que les apports individuels. L'OMS recommande Na:K ≤ 1. Les recommandations actuelles ciblent un apport sodium < 2000 mg/jour et potassium ≥ 3510 mg/jour (4700 mg AHA), objectifs difficilement atteignables avec une alimentation issue de sols appauvris. L'apport élevé en K module les effets délétères de l'excès de sodium.
→ fiche #30 · fiche #39 - Santé cardiovasculaire (H1) : Aboutissement : chaque unité d'augmentation du ratio Na/K accroît le risque d'événements cardiovasculaires et de mortalité de 50 % (Zwager 2023). Une tendance à l'augmentation de la mortalité globale est observée dès que ce ratio dépasse 1,203 mg/mg/jour (Liu 2024). Inversement, un apport élevé en K est associé à un moindre risque de MCV (Mosallanezhad 2023). La fertilité potassique régénérative du sol et la santé cardiovasculaire humaine sont mécaniquement et biologiquement liées.
→ fiche #39
C30 : Mesure rigoureuse de la biodiversité → cadrage du diagnostic → décisions agronomiques objectivées
Argument
Passer du ressenti « il y a beaucoup de vers » à un chiffre objectif de la biodiversité, comparable entre parcelles et entre années : voilà ce qui change le diagnostic et la décision. On compte les vers, on relève leurs catégories écologiques — ceux de surface, ceux qui creusent en profondeur. Un échantillonnage reproductible et des calculs standardisés convertissent ces observations en un nombre effectif de « taxons », c'est-à-dire de groupes d'êtres vivants. On estime aussi les espèces passées inaperçues, et l'on mesure la diversité fonctionnelle : non plus combien d'espèces, mais quels rôles elles jouent. Suivies année après année, ces mesures tracent une trajectoire objectivable face à un témoin — un « capital biologique » utile au diagnostic et à la décision.
Illustration : Fig. C30-A · C30 — Mesure rigoureuse de la biodiversité → cadrage du diagnostic → décisions agronomiques objectivées…
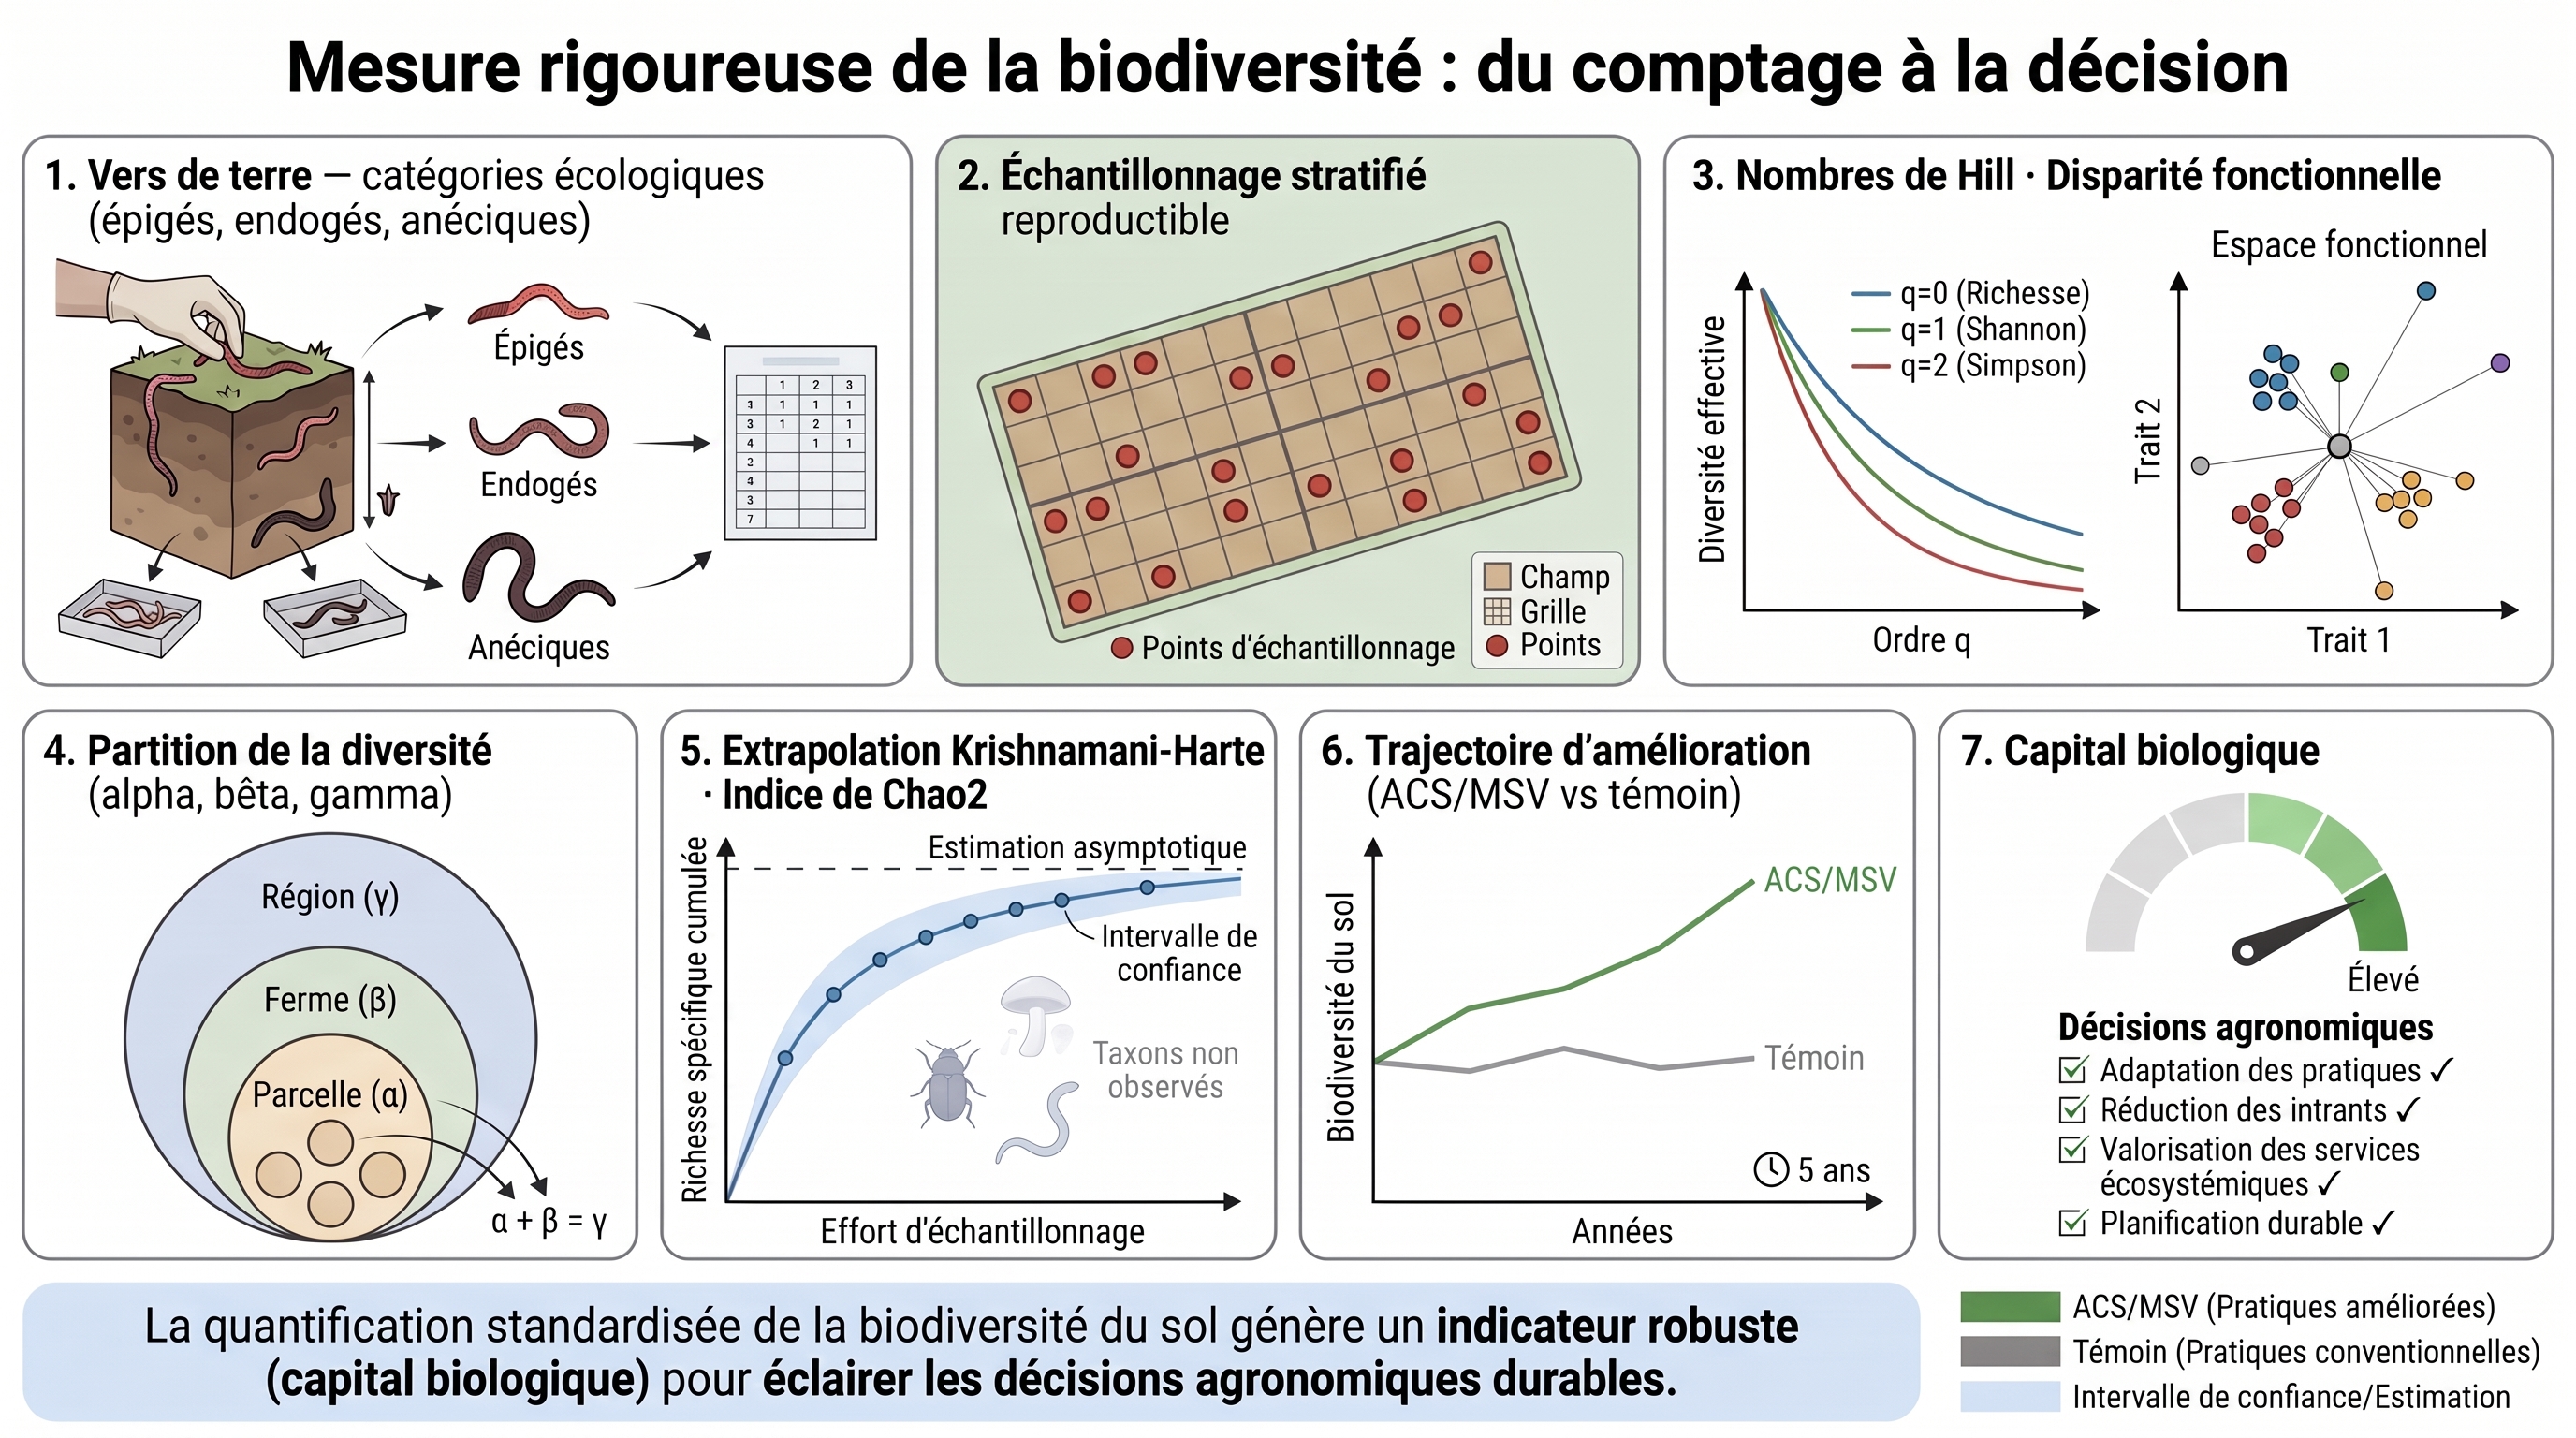
Science
- Vers de terre (P1) : Point de départ : comptage de vers et relevé des catégories écologiques (épigés/endogés/anéciques) — donnée qualitative à objectiver.
→ fiche #76 - échantillonnage stratifié reproductible (S2) : Protocole d'échantillonnage stratifié et reproductible, condition de toute comparaison ultérieure entre parcelles et années.
→ fiche #231 - nombres de Hill (S2) : Calcul des nombres de Hill (q=0 richesse, q=1 Shannon, q=2 Simpson) : conversion des indices ad hoc en nombre effectif de taxons, interprétable et comparable.
→ fiche #231 - disparité fonctionnelle (S2) : Mesure de la disparité fonctionnelle (distance entre catégories Bouché ou guildes) : la diversité devient fonctionnelle, pas seulement taxonomique.
→ fiche #231 - partition de la diversité (alpha, bêta, gamma) (S2) : Décomposition α/β/γ entre placettes et exploitation : distingue diversité intra-habitat et renouvellement inter-habitat.
→ fiche #125 · fiche #231 - extrapolation Krishnamani-Harte (S2) : Extrapolation (méthode Krishnamani-Harte) vers la richesse régionale à partir de placettes échantillonnées.
→ fiche #231 - indice de Chao2 (S2) : Estimation Chao 2 des taxons non échantillonnés : corrige le biais de sous-estimation de la richesse observée.
→ fiche #231 - trajectoire d'amélioration (ACS/MSV vs témoin) (P1) : Ces mesures rigoureuses, suivies année après année, établissent une trajectoire d'amélioration ACS/MSV vs témoin, scientifiquement défendable.
→ fiche #243 - Capital biologique (F2) : La trajectoire prouvée s'agrège alors en indicateur synthétique de capital biologique : un input objectivé pour la décision et l'évaluation économique du vivant.
→ fiche #75 · fiche #243
C31 : Cycle rhizophagique : exsudats racinaires → densité nutritionnelle
Argument
La plante ne se contente pas d'absorber ce que le sol lui offre : elle pourrait aussi digérer une partie des microbes qu'elle héberge — une voie d'acquisition encore débattue. Ses racines sécrètent des sucres qui attirent des bactéries ; selon une hypothèse émergente, la racine les ferait pénétrer dans ses cellules puis les digérerait partiellement, récupérant au passage de l'azote et certains micronutriments comme le zinc ou le fer. Cette voie s'ajouterait à celles, mieux établies, de la symbiose et de la solubilisation minérale. À la clé : une contribution possible à des aliments plus denses en nutriments.
Illustration : Fig. C31-A · Cycle de la Rhizophagie…
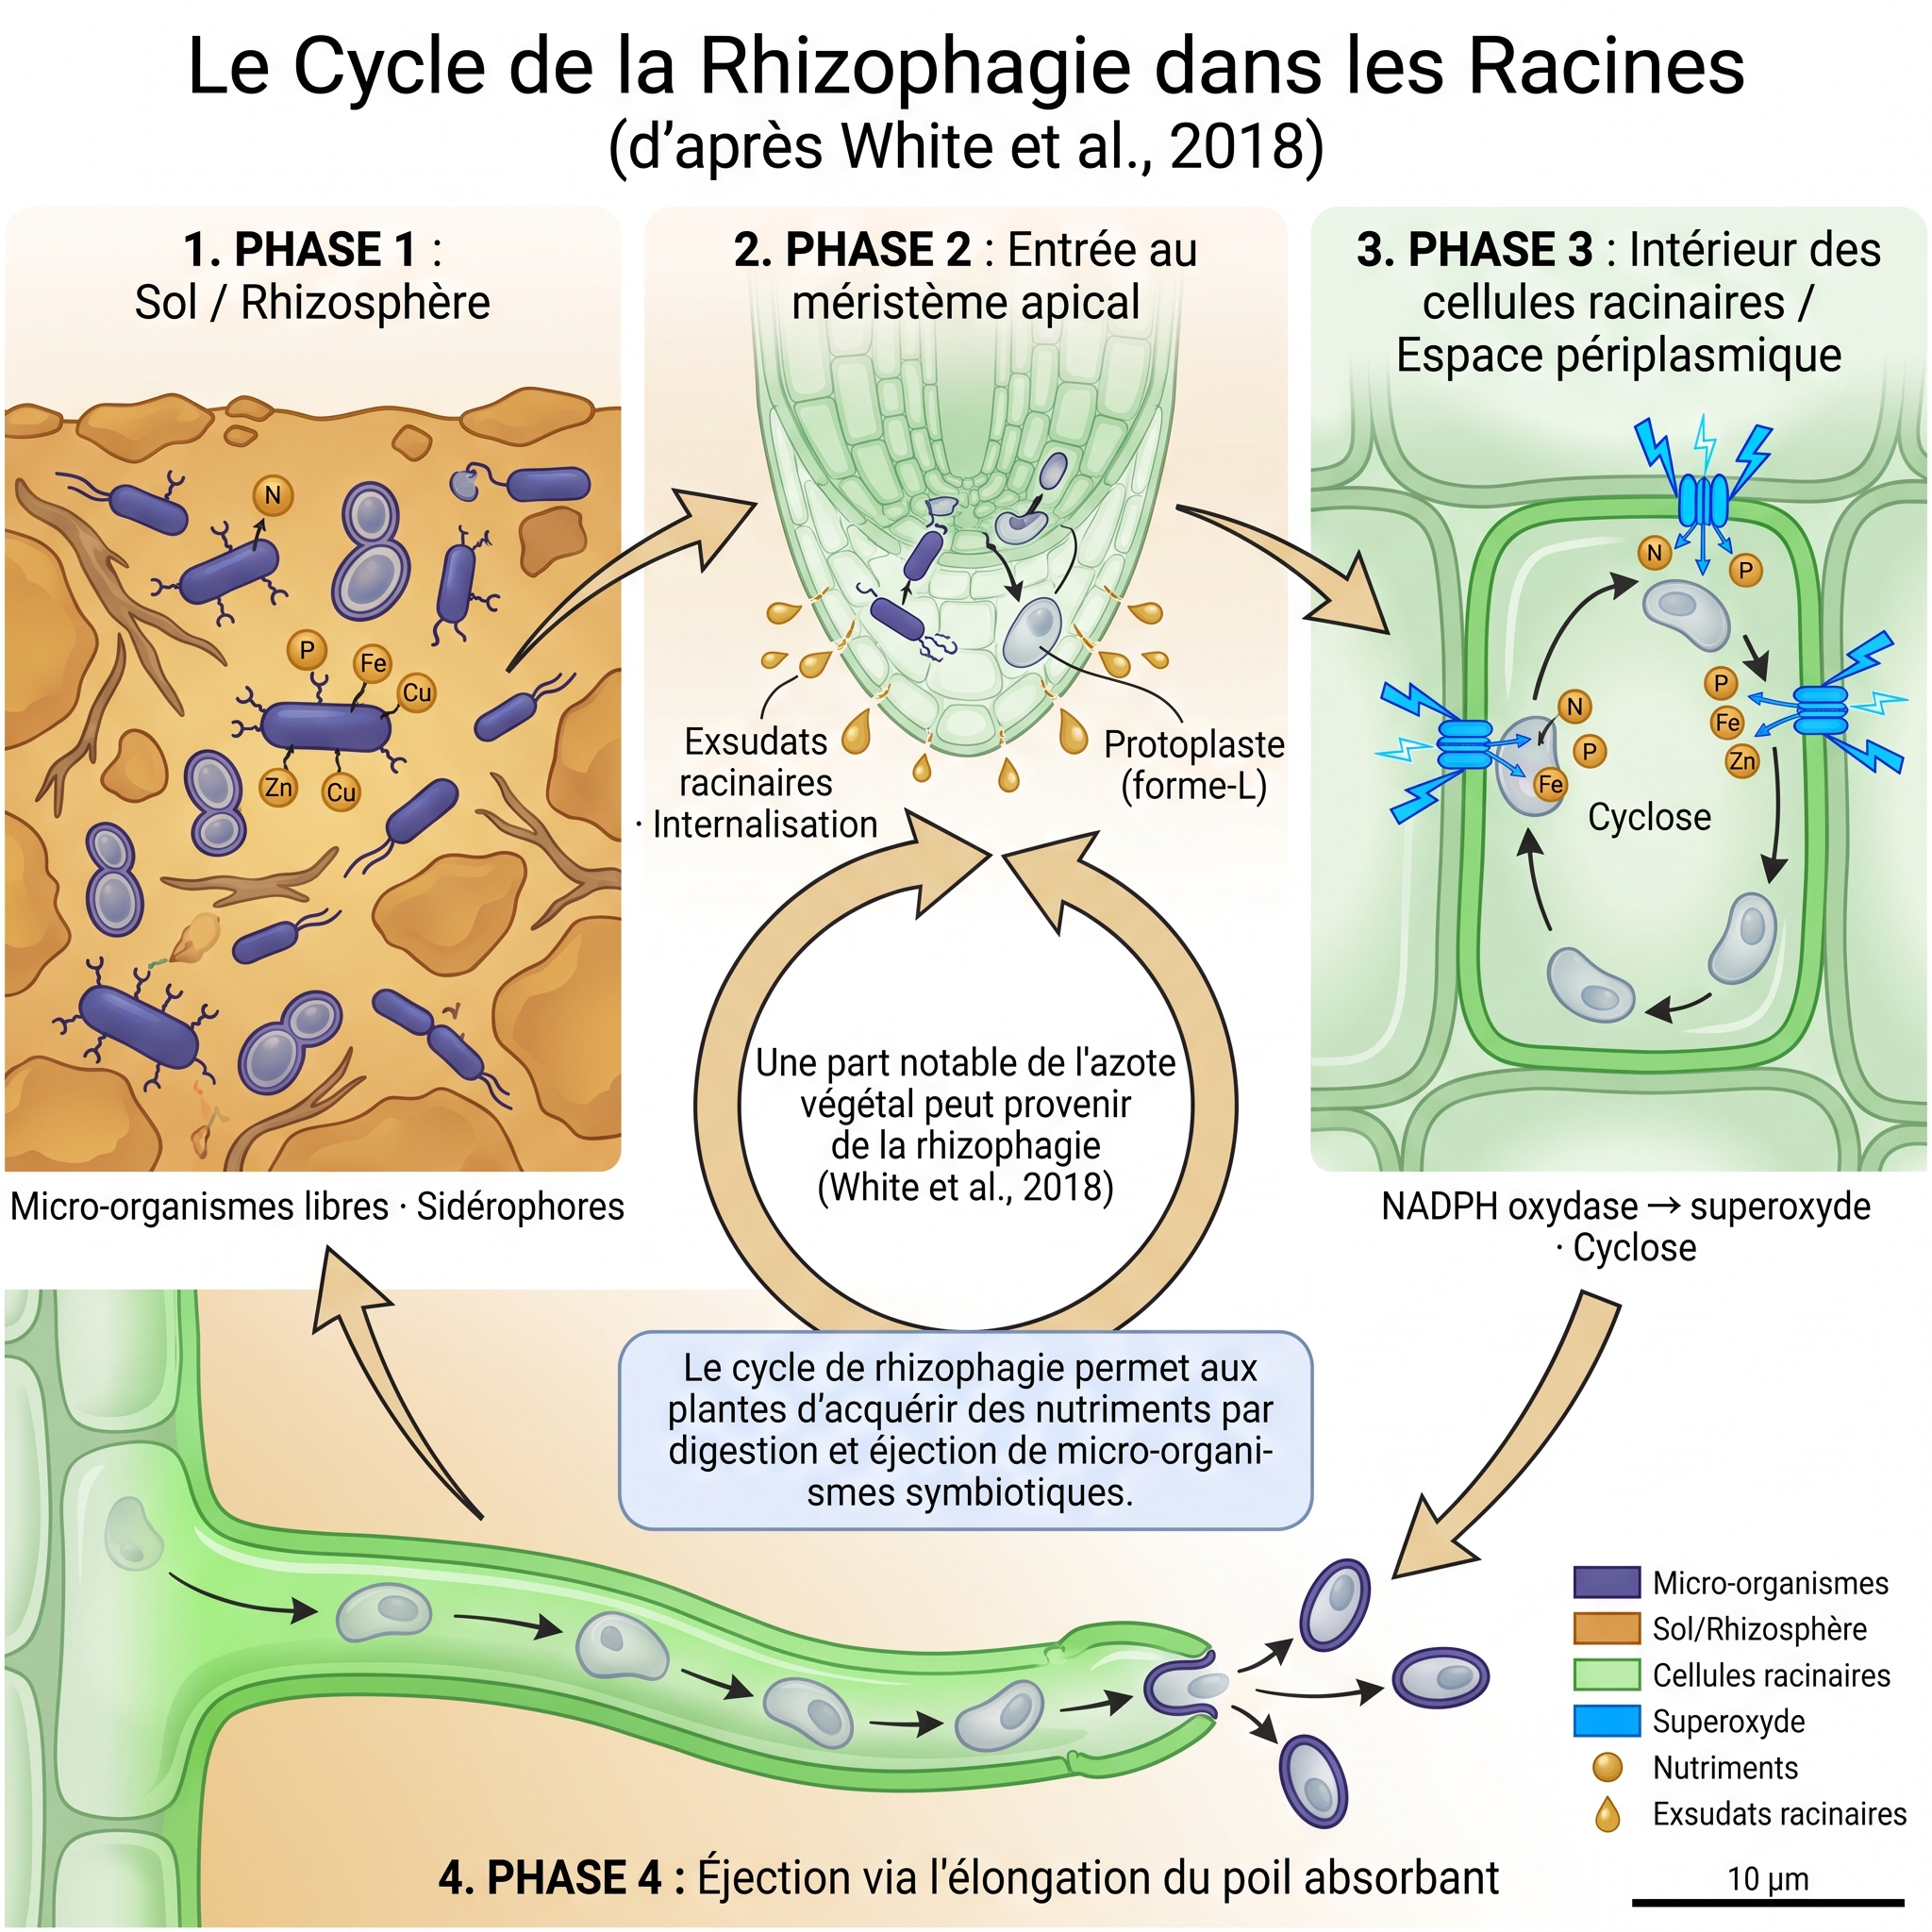
Science
- exsudats racinaires (V2) : Point de départ : les exsudats racinaires (root exudates) recrutent sélectivement des bactéries endophytes dans la rhizosphère.
→ fiche #74 · fiche #196 - rhizophagie (V2) : Les racines internalisent ces endophytes puis les digèrent partiellement dans leurs cellules — le cycle rhizophagique (rhizophagy cycle, White 2018) —, récupérant directement leur azote et leurs micronutriments : une voie distincte de la fixation symbiotique et de la solubilisation.
→ fiche #74 (cadre) - Phytohormone (V2) : La lyse des endophytes relâchés libère des phytohormones (auxines, cytokinines, gibbérellines) et de l'ACC désaminase, qui stimulent en retour la croissance et l'exploration racinaires — bouclant un cercle d'acquisition.
→ fiche #74 - Micronutriment (H1) : Cette acquisition non conventionnelle accroît potentiellement l'absorption de micronutriments (Zn, Fe) par la plante — les nutriments exacts transférés par rhizophagie restent à établir (White et al. 2018), au-delà des seules voies mycorhizienne et de solubilisation.
→ fiche #240 · fiche #241 - densité nutritionnelle (H1) : Aboutissement : l'apport endophytique nourrit la densité nutritionnelle (nutrient density) de l'aliment, intégrant la rhizophagie au continuum sol-plante-aliment.
→ fiche #39 · fiche #89 (cadre)
C32 : Carbon Use Efficiency : ratio C/N du paillage → capital biologique séquestré
Argument
Que deviennent les feuilles mortes épandues sur le sol ? Un arbitrage microbien décide de la part du carbone stockée pour des décennies — et le paillage en est le levier. Le carbone apporté est soit respiré en gaz carbonique par les microbes, soit incorporé dans leur corps : c'est l'« efficience d'utilisation du carbone ». Un paillage équilibré, mêlant matière carbonée (bois broyé, paille) et matière azotée (légumineuses), tend à maximiser cette incorporation. Quand les microbes meurent, leurs dépouilles — la « nécromasse » — se fixent durablement aux minéraux du sol : voilà du carbone stocké pour des décennies, voire des siècles. Le choix du paillage devient ainsi un levier qui fait croître, à la manière d'un capital, le stock de matière organique de la parcelle.
Illustration : Fig. C32-A · C32 — Carbon Use Efficiency : ratio C/N du paillage → capital biologique séquestré…
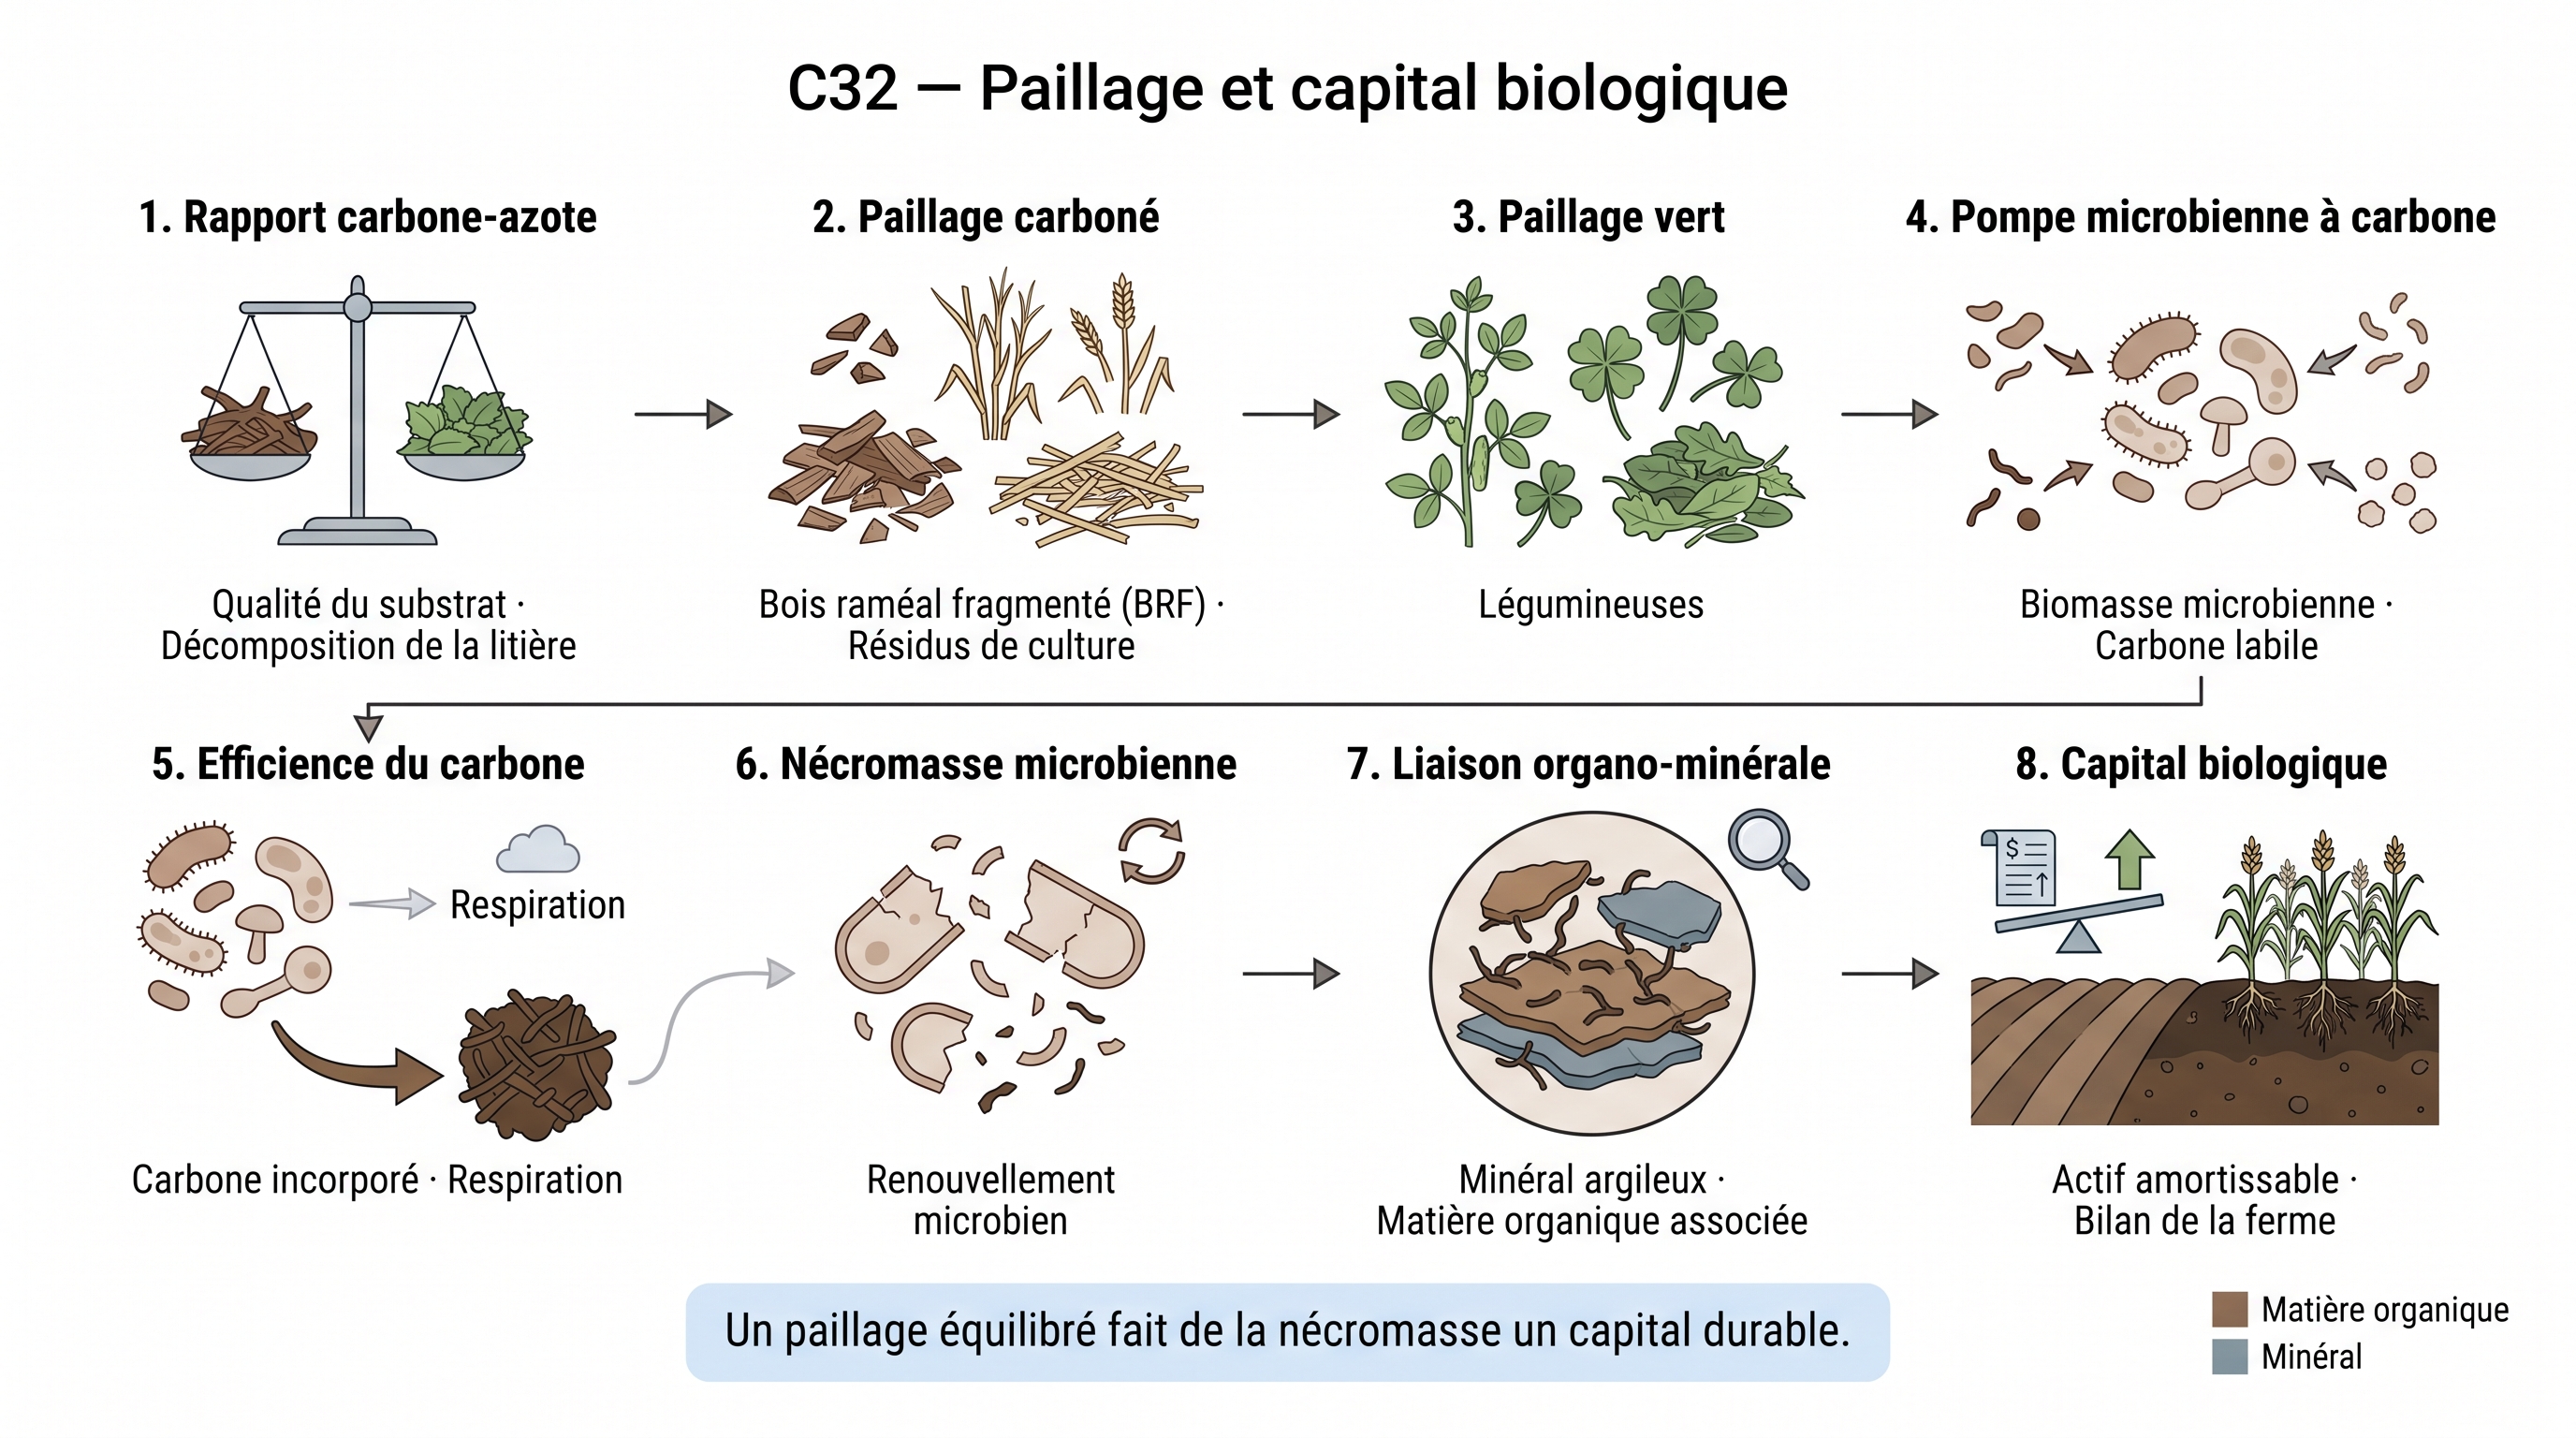
Science
- Ratio C/N optimal (P5) : Point de départ : le ratio C/N (C/N ratio) du paillage — carboné (BRF, paille) versus vert (légumineuses) — fixe la qualité du substrat entrant.
→ fiche #69 · fiche #218 - pompe microbienne à carbone (S4) : Le carbone labile de ce substrat alimente la pompe microbienne à carbone (microbial carbon pump) : son premier maillon est l'incorporation dans la biomasse microbienne vivante.
→ fiche #65 - Efficience d'utilisation du carbone (S4) : L'efficience d'utilisation du carbone (Carbon Use Efficiency, CUE) arbitre la fraction du carbone incorporée en biomasse plutôt que respirée en CO2 — un substrat équilibré maximise le CUE.
→ fiche #205 - nécromasse microbienne (S2) : Un CUE élevé, par renouvellement microbien rapide, maximise la production de nécromasse microbienne (microbial necromass), matière première du carbone stable.
→ fiche #65 · fiche #181 - matière organique associée aux minéraux (S1) : Cette nécromasse s'adsorbe sur les minéraux argileux et forme la matière organique associée aux minéraux (mineral-associated organic matter, MAOM), stable sur des décennies à des siècles.
→ fiche #190 · fiche #204 · fiche #208 - Capital biologique (F2) : Aboutissement : le stock de MAOM constitue un capital biologique amortissable, inscriptible au bilan de la ferme comme un actif qui s'apprécie.
→ fiche #94
C33 : Verrou stœchiométrique CNPS : ratio des résidus → dépendance aux intrants
Argument
Raisonner uniquement l'azote ne suffit pas : l'équilibre entre carbone, azote, phosphore et soufre d'un résidu décide si le sol stocke — ou si la ferme s'enferme dans la dépendance aux engrais. Pour décomposer un résidu, les microbes du sol doivent y trouver les bonnes proportions de ces quatre éléments — une « stœchiométrie » à quatre entrées. Si l'un manque, ils vont le chercher en décomposant la matière organique déjà stockée, appauvrissant le sol. Pour compenser, l'agriculteur achète alors des engrais de synthèse, fabriqués avec de l'énergie fossile. Le piège se referme : chaque apport minéral court-circuite un peu plus le travail biologique du sol et entretient la dépendance. Équilibrer les couverts, c'est reconquérir son autonomie en intrants.
Illustration : Fig. C33-A · C33 — Verrou stœchiométrique CNPS : ratio des résidus → dépendance aux intrants…
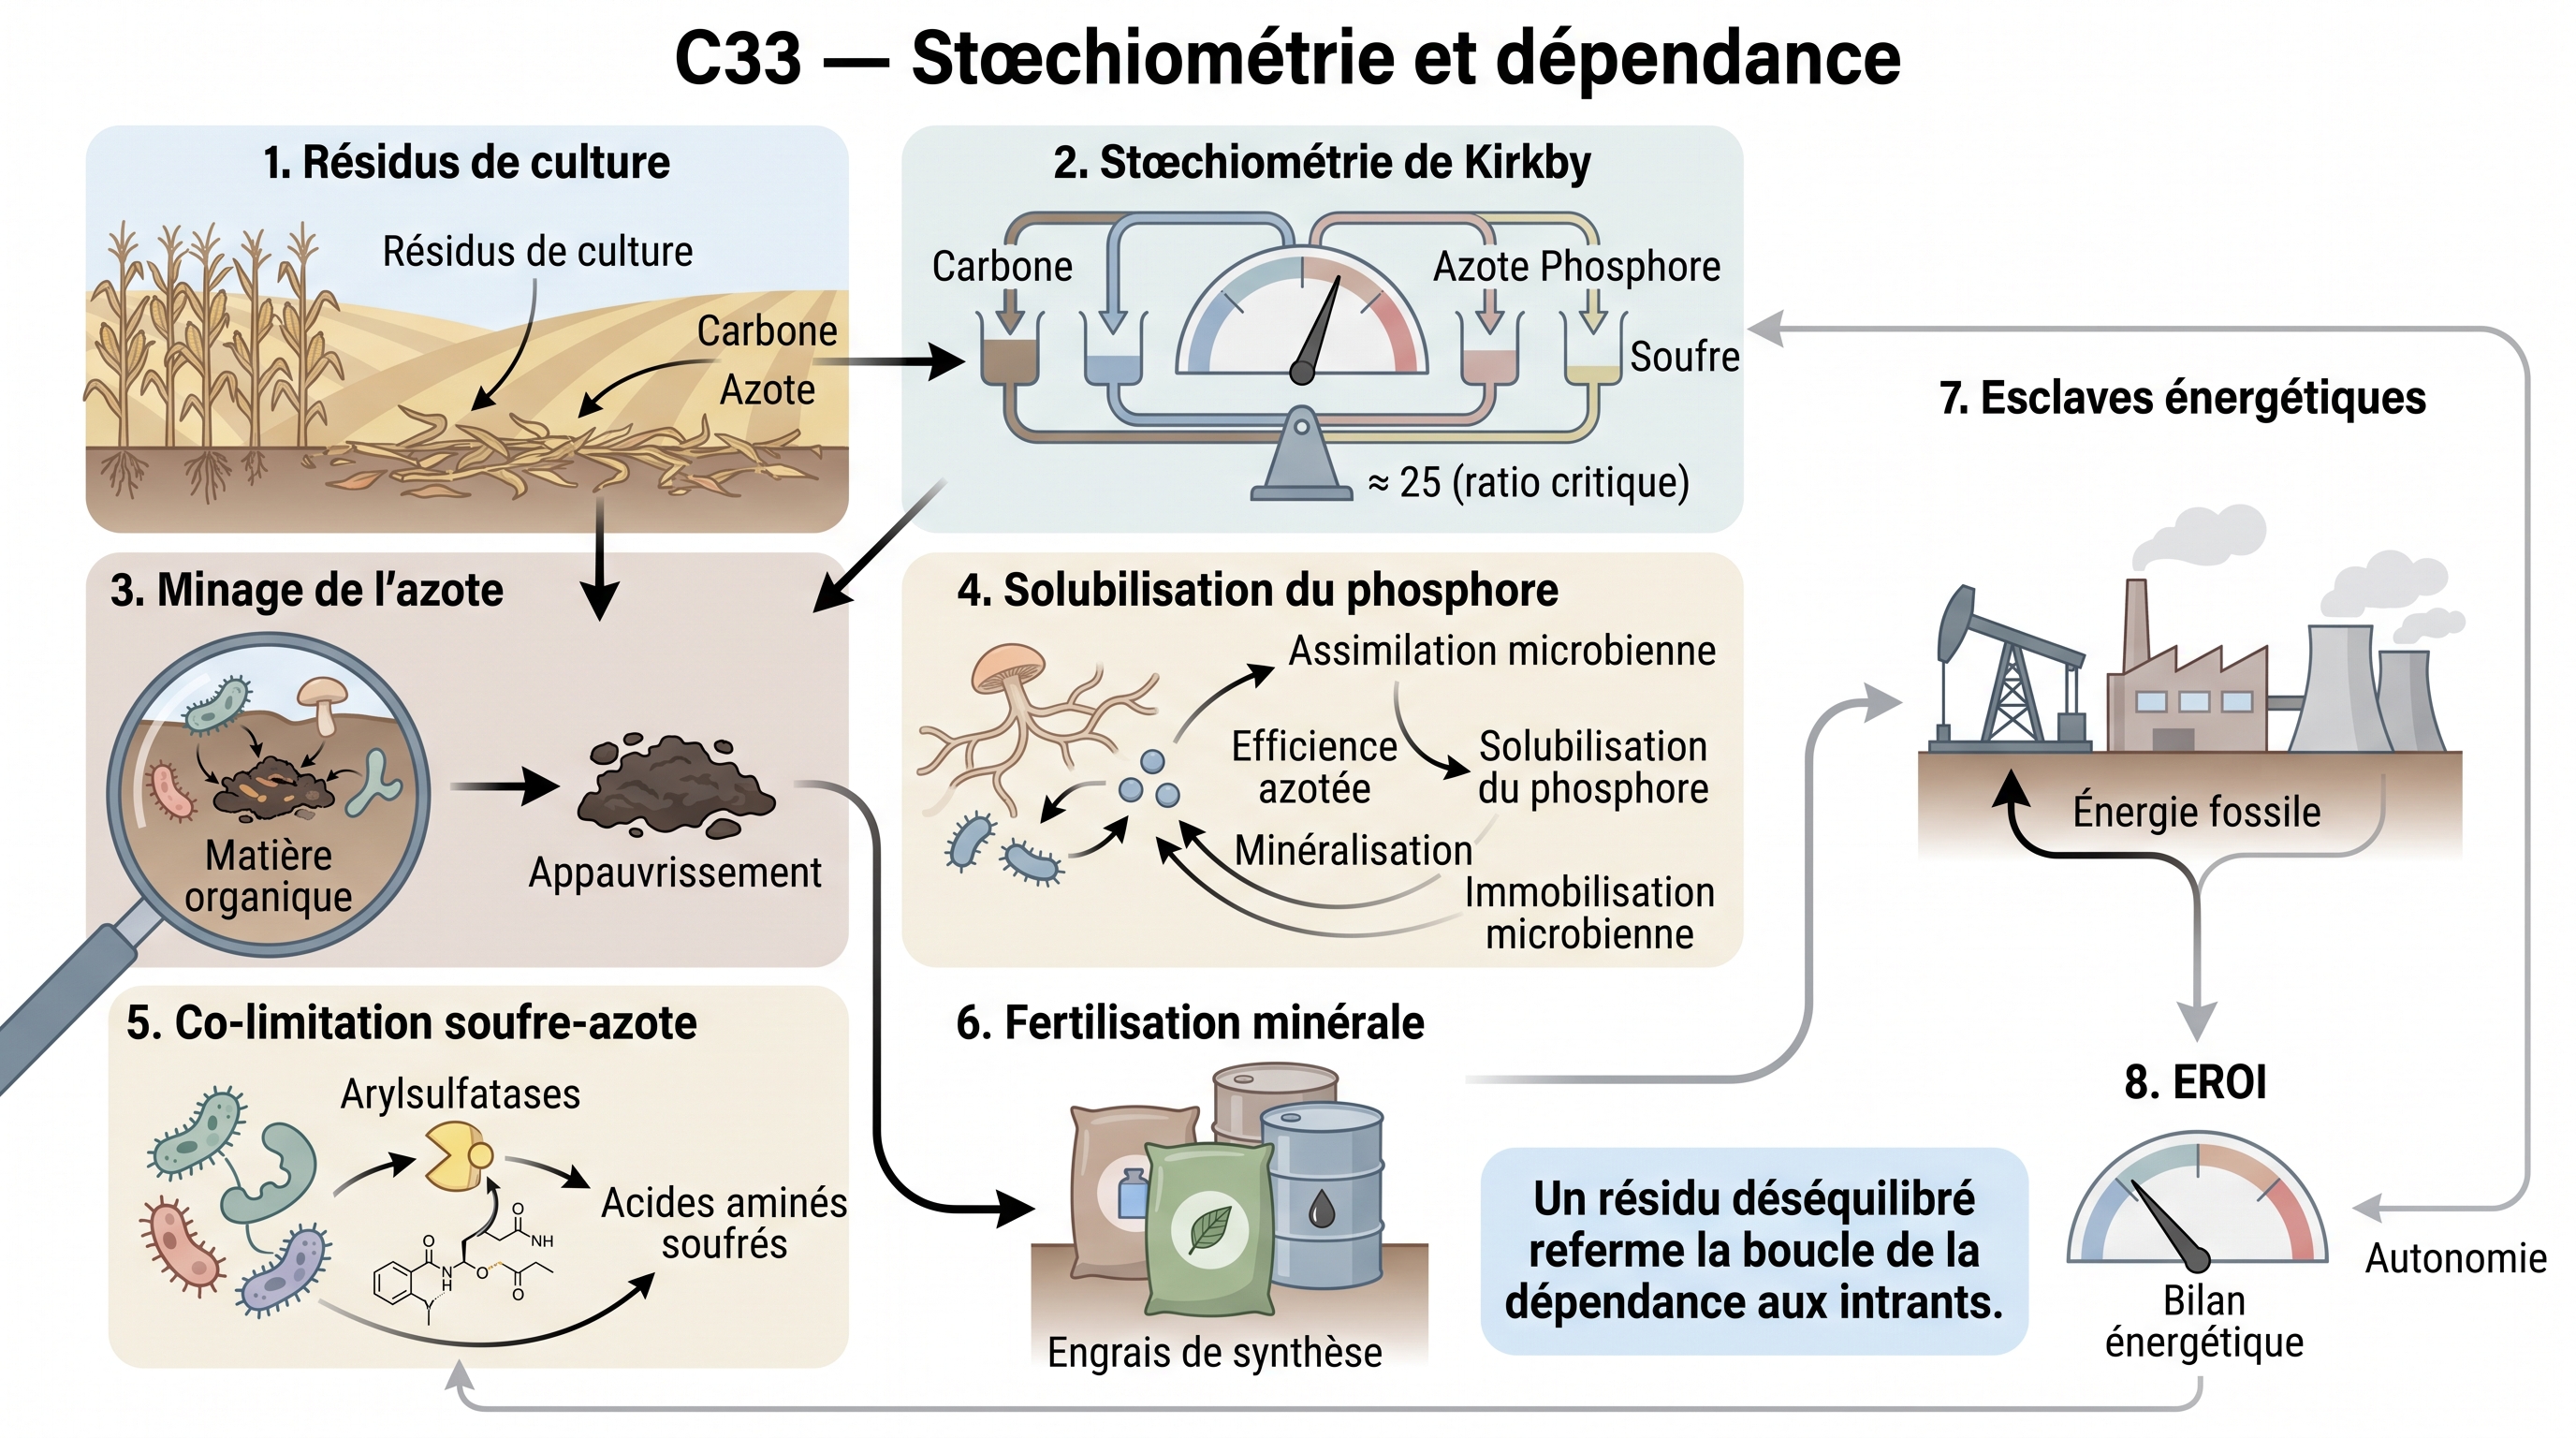
Science
- résidus de culture (P2) : Point de départ : les couverts et résidus de culture (crop residues) apportent une biomasse dont le ratio C:N:P:S est variable selon les espèces.
→ fiche #69 · fiche #218 - stœchiométrie de Kirkby (S4) : La stœchiométrie de Kirkby fixe le verrou : un ratio C/N critique (~25) et les proportions N:P:S de l'humus déterminent si la matière sera minéralisée ou immobilisée.
→ fiche #4 · fiche #256 - minéralisation de la matière organique (S2) : Un ratio déséquilibré déclenche le N-mining : les micro-organismes minéralisent la matière organique stable pour combler le déficit, appauvrissant le stock.
→ fiche #4 · fiche #256 - Solubilisation du phosphore (S4) : La disponibilité du phosphore co-limite l'assimilation microbienne et l'efficience azotée : sans P solubilisé, l'azote apporté est mal valorisé.
→ fiche #101 · fiche #251 - co-limitation soufre-azote (S4) : Le soufre co-limite à l'identique : sans minéralisation suffisante du soufre organique (arylsulfatases microbiennes), la synthèse des acides aminés soufrés et l'efficience azotée chutent — co-limitation soufre-azote.
→ fiche #238 - Engrais de synthèse (P2) : Face à ce verrou stœchiométrique, l'agriculteur compense par la fertilisation minérale : apports d'engrais de synthèse N-P-S qui court-circuitent la minéralisation biologique défaillante.
→ fiche #150 · fiche #251 - Esclaves énergétiques (F2) : Mais ce recours s'auto-entretient : chaque apport minéral inhibe davantage le travail biologique du sol, installant la dépendance aux esclaves énergétiques — ces engrais de synthèse sont de l'énergie fossile fixée qui se substitue au sol vivant.
→ fiche #41 · fiche #94 · fiche #259 - EROI (F2) : Bilan énergétique du verrou : la dépendance aux intrants s'auto-entretient — chaque boucle d'engrais de synthèse dégrade l'EROI du système (esclaves énergétiques → EROI faible).
→ fiche #41 · fiche #94 (pivot)
C34 : Sol vivant → SCFA → axe intestin-cerveau : du microbiome édaphique à la santé mentale
Argument
Et si la santé mentale passait aussi par le sol ? Une piste exploratoire relie le vivant du sol à notre flore intestinale, et de là à l'humeur. Selon l'hypothèse du « continuum sol-intestin », être en contact avec les microbes du sol enrichirait la diversité de notre flore intestinale. Les fibres des aliments issus d'un sol vivant nourrissent ces bactéries, qui les fermentent en acides gras à chaîne courte — des composés qui renforcent la barrière de l'intestin et apaisent l'inflammation. Certains de ces messagers, via le nerf qui relie l'intestin au cerveau, influenceraient l'humeur. Le lien est plausible, mais l'association observée n'est pas une preuve de causalité : la chaîne complète, du sol à la santé mentale, reste une piste à consolider.
Illustration : Fig. C34-A · C34 — Sol vivant → SCFA → axe intestin-cerveau…
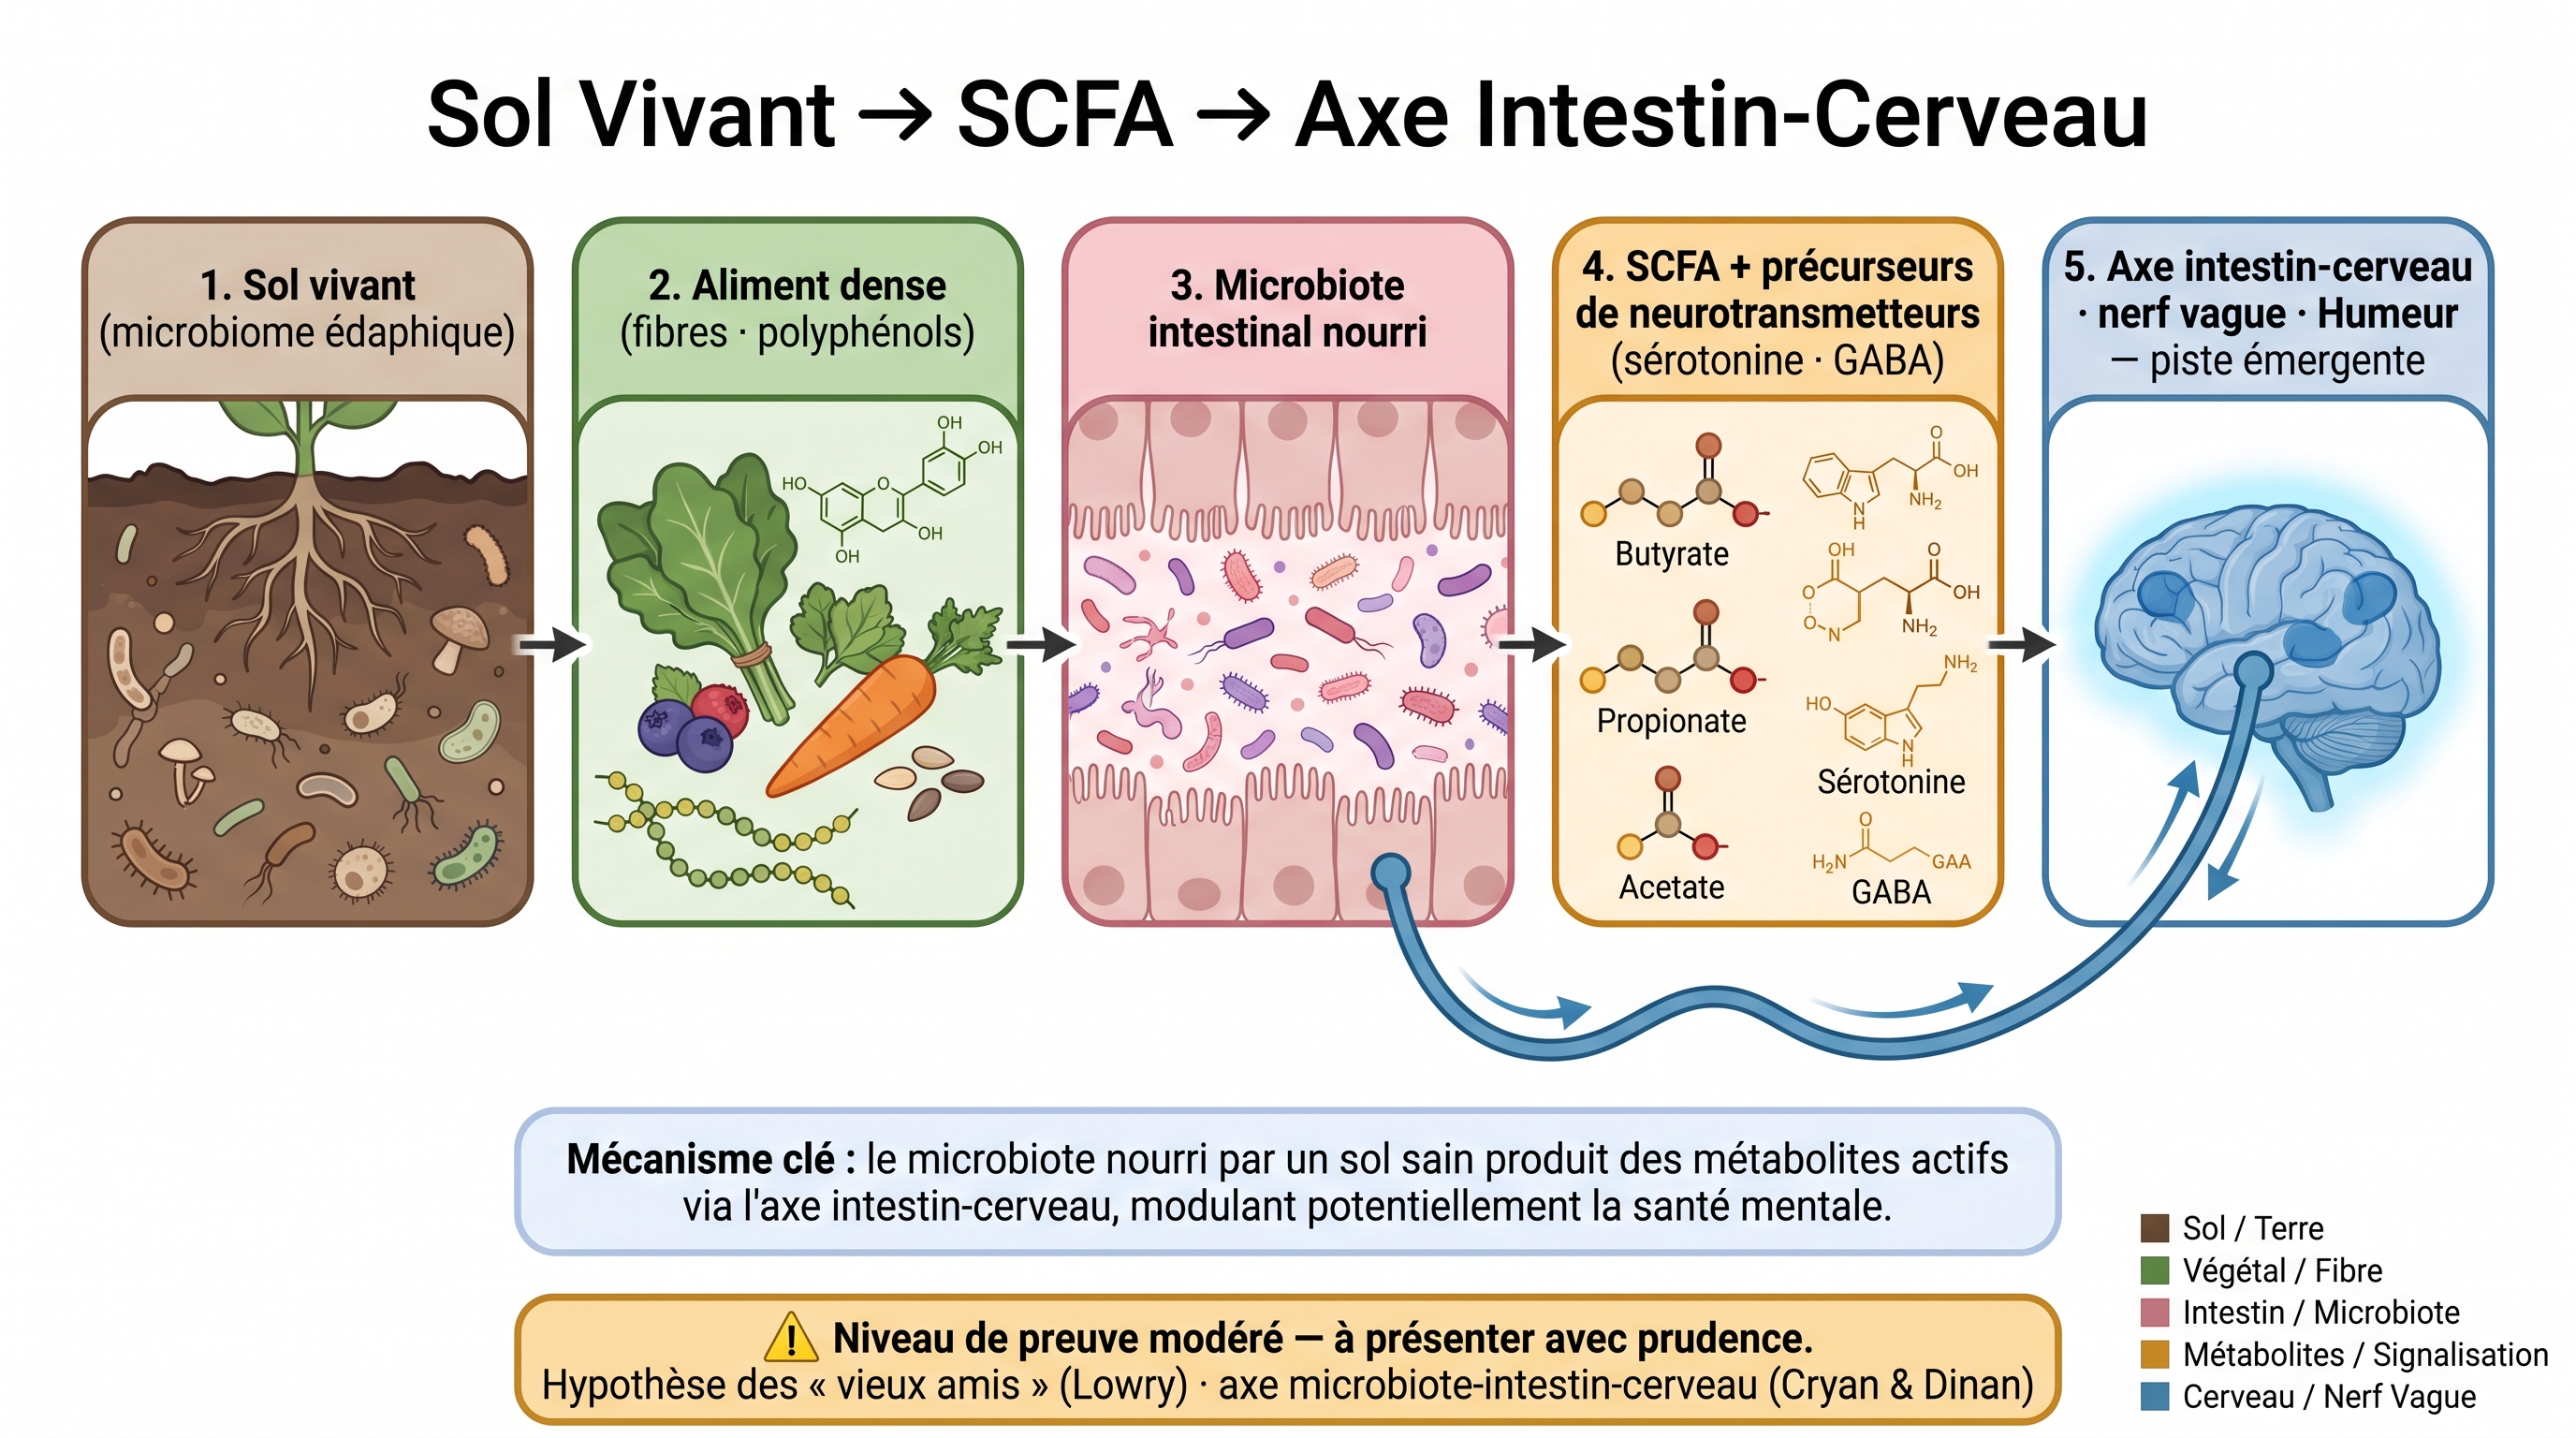
Science
- Continuum sol-intestin (V2) : Point de départ : l'exposition au microbiome du sol enrichit la diversité du microbiote intestinal (hypothèse « old friends ») — le continuum sol-intestin (soil-gut axis).
→ fiche #40 · fiche #220 - Prébiotiques (H2) : Les fibres et polyphénols des aliments denses, issus d'un sol vivant, agissent comme prébiotiques (prebiotics) nourrissant les bactéries intestinales bénéfiques.
→ fiche #40 · fiche #219 - Acides gras à chaîne courte (H2) : Ces bactéries fermentent les fibres en acides gras à chaîne courte (short-chain fatty acids, SCFA) — butyrate, propionate, acétate — qui renforcent la barrière intestinale et modulent l'inflammation.
→ fiche #219 - axe intestin-cerveau (H2) : Aboutissement : via l'axe intestin-cerveau (gut-brain axis) et le nerf vague, des neurotransmetteurs d'origine microbienne (sérotonine, GABA, dopamine) influencent l'humeur et la santé mentale.
→ fiche #13
C35 : Effet Birch : du cycle dessiccation-réhumectation au pulse de minéralisation
Argument
Chaque fois qu'un sol sec reçoit enfin la pluie, un sursaut invisible libère d'un coup azote et carbone — l'« effet Birch », clé pour limiter les pertes d'azote. En séchant, les micro-organismes du sol s'étaient mis en veille ; brutalement réhydratée, une partie éclate sous le choc et libère son contenu, que les survivants décomposent aussitôt. Cet afflux d'azote arrive souvent en excès par rapport aux besoins immédiats des plantes : une partie s'échappe avec l'eau qui s'infiltre, une autre rejoint l'air. Comprendre ce sursaut aide à mieux caler l'irrigation et à réduire les pertes d'azote des sols soumis à l'alternance sécheresse-humidité.
Illustration : Fig. C35-A · C35 — Effet Birch : du cycle dessiccation-réhumectation au pulse de minéralisation…
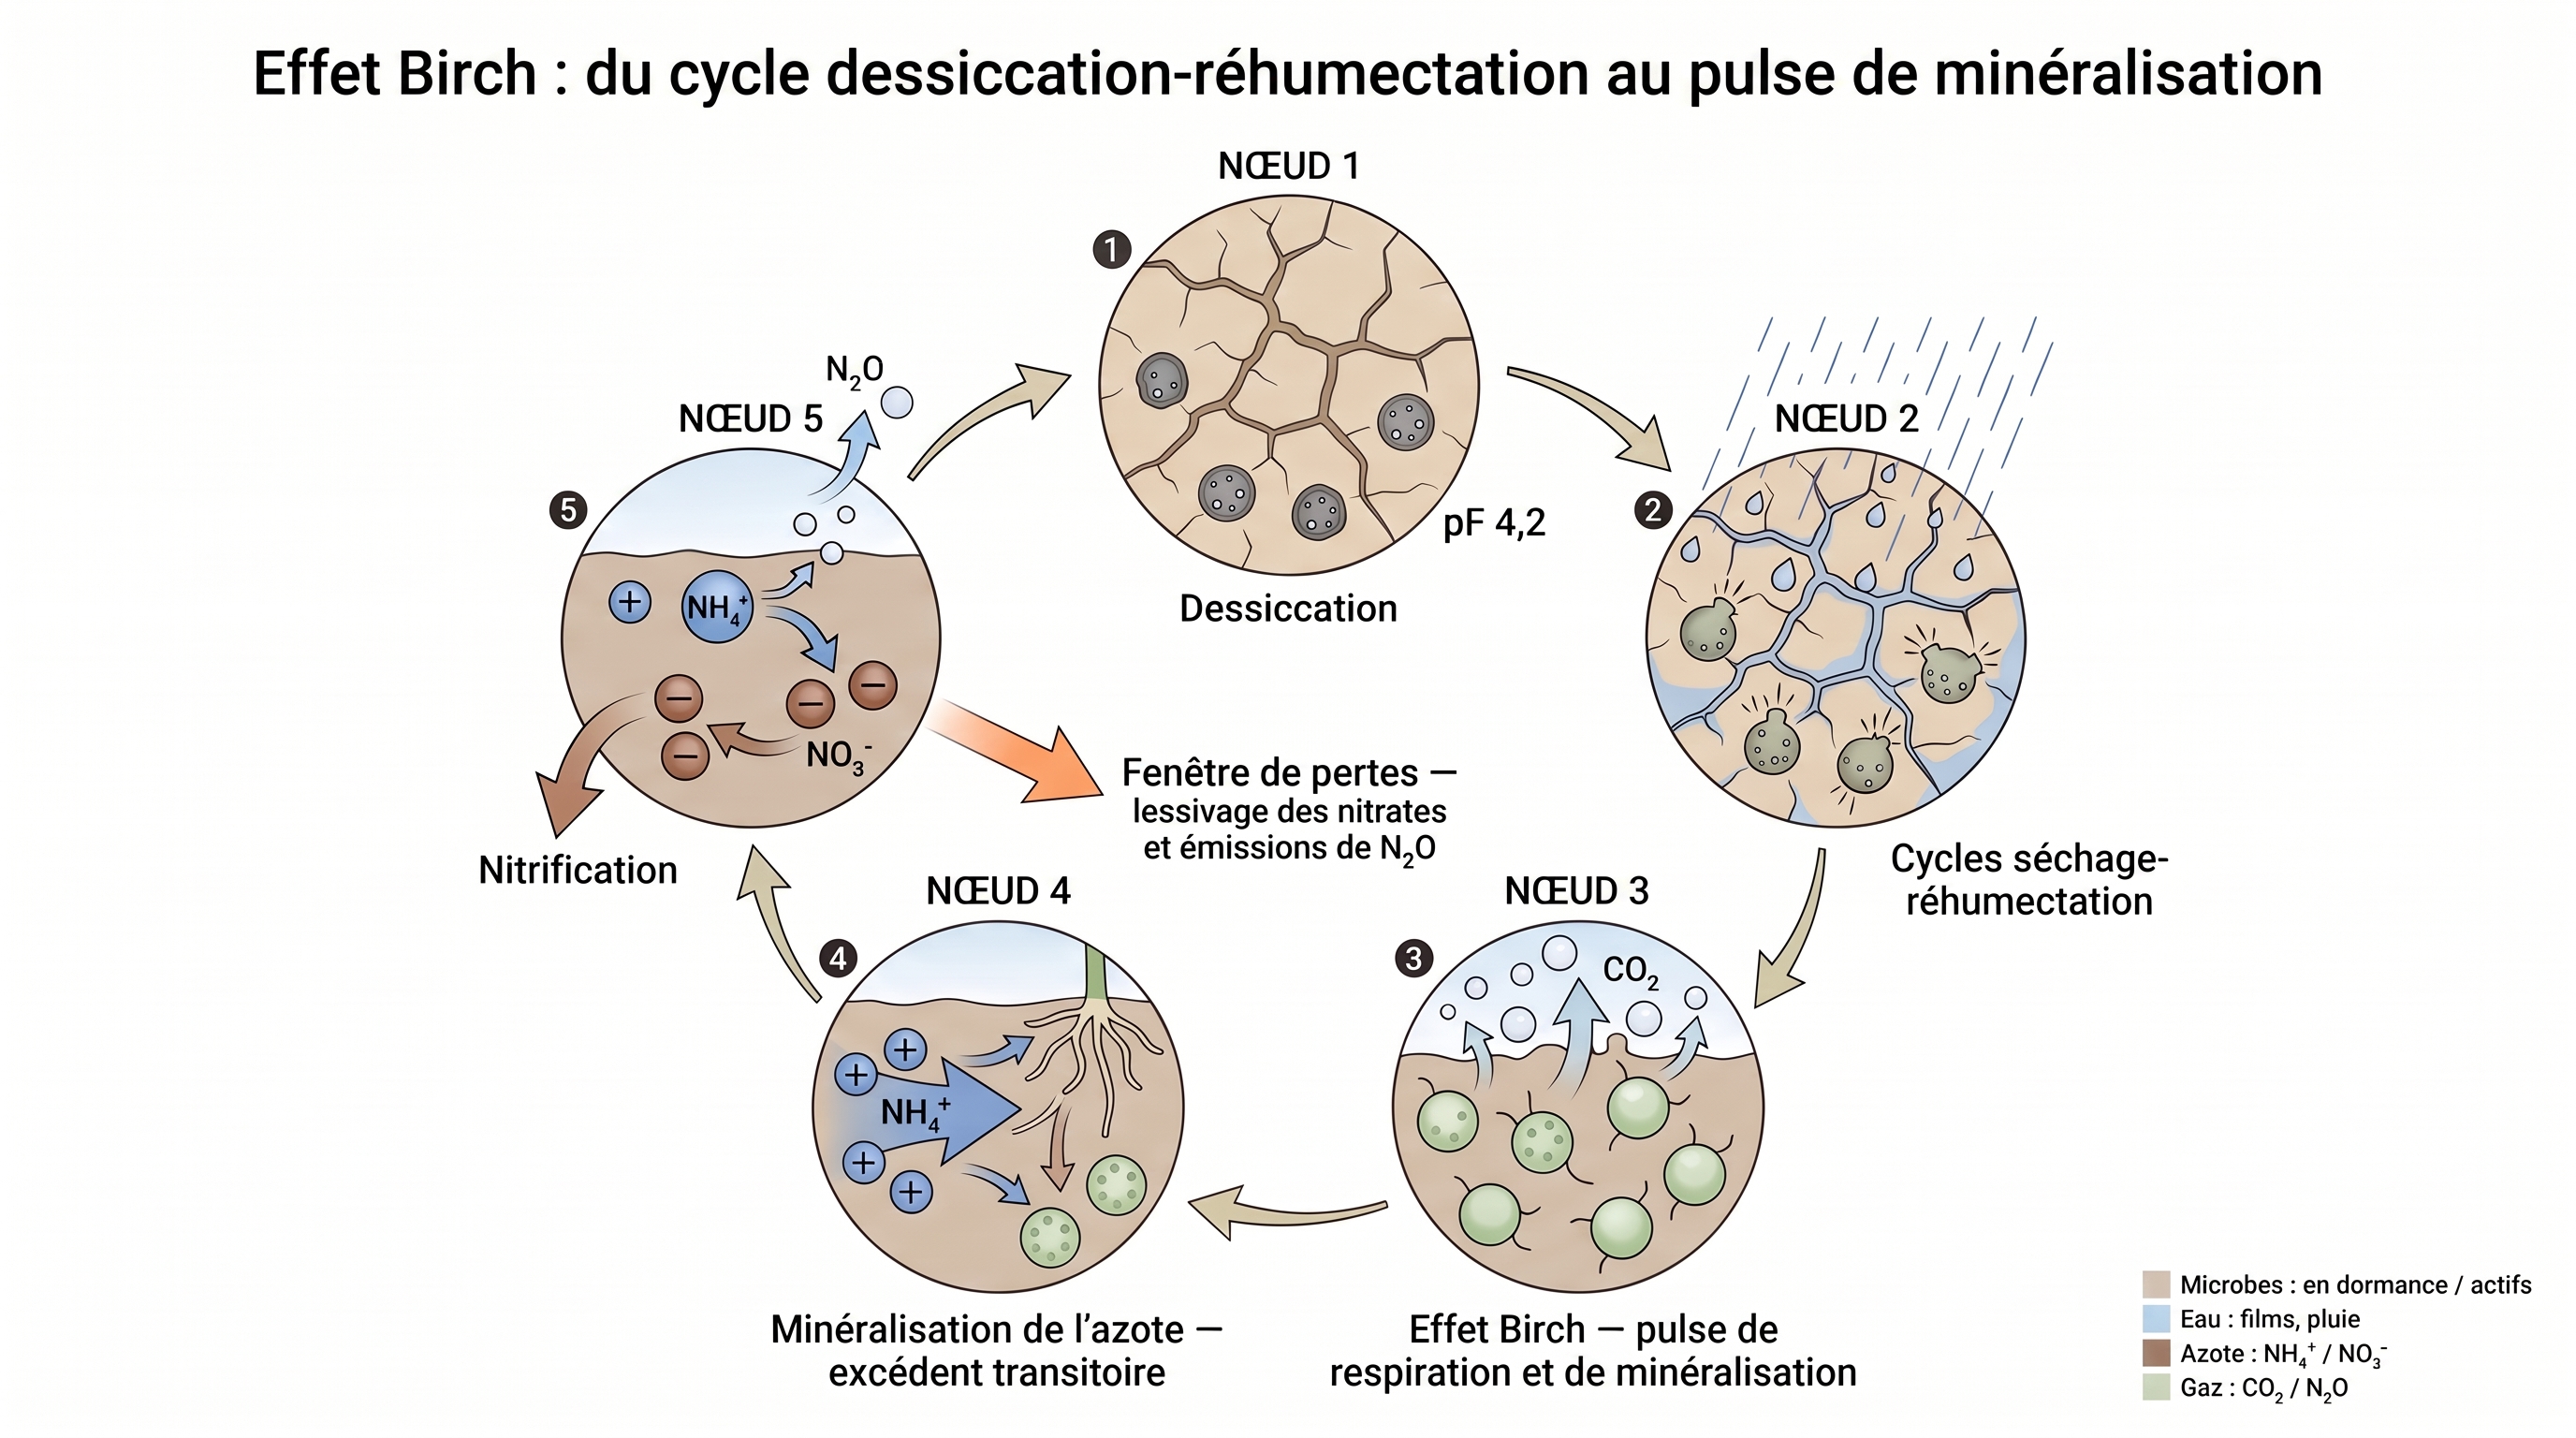
Science
- dessiccation (S0) : Quand le sol sèche au-delà du point de flétrissement permanent (pF 4,2), l'eau des films microbiens disparaît : les microorganismes entrent en dormance et accumulent solutés osmotiques et nécromasse non minéralisée.
→ fiche #234 - cycles séchage-réhumectation (S0) : La réhumectation brutale (pluie, irrigation) crée un choc osmotique : une fraction de la biomasse est lysée et la connectivité des films d'eau restaurée, rendant brusquement disponibles le carbone et l'azote accumulés.
→ fiche #23 · fiche #234 - effet Birch (S0) : Ce choc déclenche l'effet Birch : une bouffée de respiration et de minéralisation où la matière organique labile libérée est rapidement reminéralisée par les survivants microbiens réactivés.
→ fiche #234 - minéralisation de l'azote (S4) : Le pulse libère un flux concentré d'azote minéral (NH4+) qui excède la demande instantanée des plantes et des microbes — excédent transitoire et vulnérable.
→ fiche #234 - nitrification (S4) : Cet NH4+ excédentaire est nitrifié en NO3-, l'exposant au lessivage et, au prochain épisode anoxique, à la dénitrification en N2O : le pulse Birch devient une fenêtre de pertes d'azote et de GES.
→ fiche #151 · fiche #200
C36 : Micronutriments du sol : de la mobilisation microbienne à la faim cachée
Argument
La teneur en fer et zinc de nos aliments ne dépend pas que de la variété cultivée : elle se joue aussi dans le sol vivant. Des bactéries de la rhizosphère (le sol au contact des racines) sécrètent des sidérophores qui décrochent le fer verrouillé dans la roche, et d'autres chélateurs libèrent zinc, cuivre et manganèse. Des champignons associés aux racines, les mycorhizes, prolongent l'exploration et acheminent ces éléments jusqu'aux tissus comestibles de la plante : une biofortification biologique, sans génie génétique ni fortification industrielle. La mobilisation est bien établie, mais son ampleur à l'échelle des populations reste à confirmer. S'il tient, le sol vivant devient un levier contre la faim cachée, ces carences de personnes pourtant nourries à leur faim.
Illustration : Fig. C36-A · C36 — Micronutriments du sol : de la mobilisation microbienne à la faim cachée…
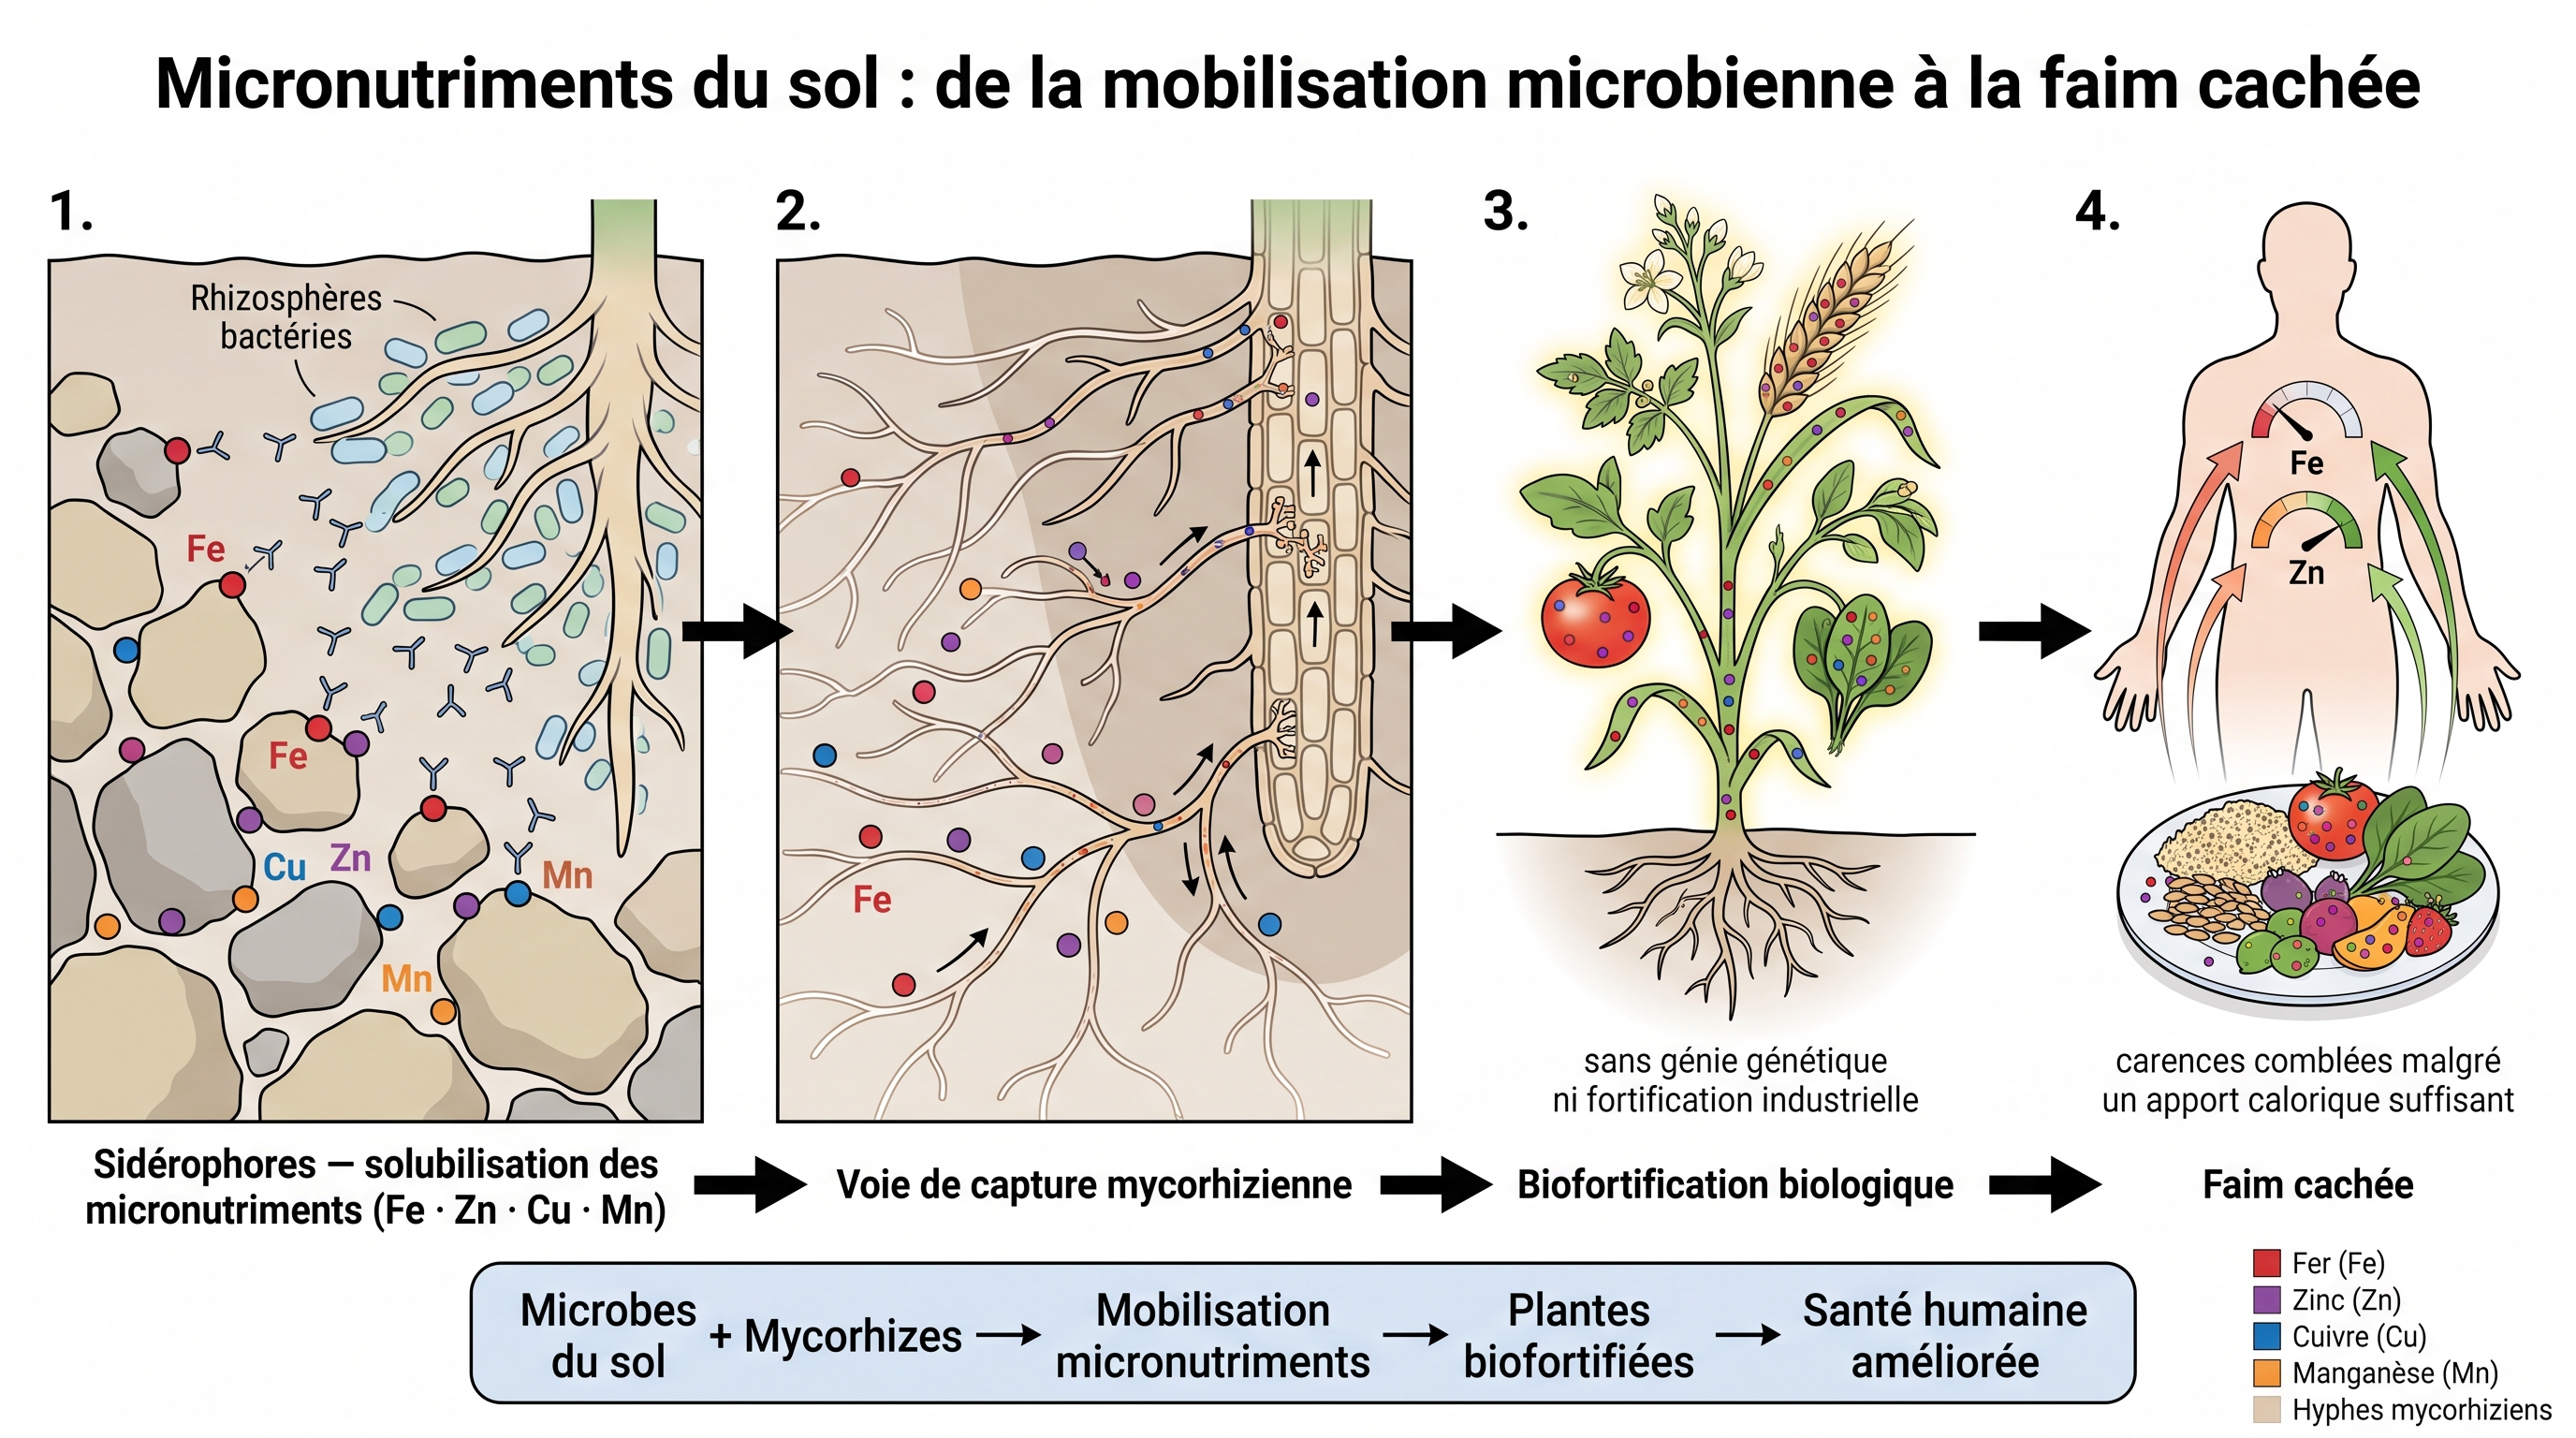
Science
- Sidérophores (S2) : Départ : les bactéries de la rhizosphère sécrètent des sidérophores qui chélatent et solubilisent les micronutriments métalliques (Fe, Zn, Cu, Mn) verrouillés dans la matrice minérale — leur mise à disposition biologique.
→ fiche #134 · fiche #211 - voie de capture mycorhizienne (S3) : Le réseau mycorhizien à arbuscules étend l'exploration au-delà de la rhizosphère et achemine ces micronutriments jusqu'à la plante par la voie de capture mycorhizienne, hors de portée des racines nues.
→ fiche #35 · fiche #240 - Biofortification biologique (H1) : La plante accumule ces micronutriments biodisponibles dans ses tissus comestibles : biofortification biologique — densité nutritionnelle obtenue par la biologie du sol, sans génie génétique ni fortification industrielle.
→ fiche #89 · fiche #240 - faim cachée (H1) : Aboutissement : ces aliments comblent les carences en Fe/Zn qui définissent la faim cachée (malnutrition par déficience en micronutriments malgré un apport calorique suffisant). Le sol vivant, levier de santé publique.
→ fiche #64 · fiche #240
C37 : Bore : du borate à la fécondation : réticulation pariétale RG-II et marge étroite
Argument
Le bore n'est pas un oligo-élément parmi d'autres : c'est l'architecte discret de la paroi des cellules et de la fécondation. Il est puisé dans la solution du sol sous forme d'acide borique, une molécule que la terre retient mal, vite lessivée en sol léger. Dans la paroi, il sert de pont entre les chaînes de sucres, lui assurant rigidité et souplesse. C'est la reproduction qui y est la plus sensible : la germination du pollen et la croissance de son tube réclament un apport continu de bore, si bien qu'un manque local compromet la fécondation avant tout symptôme visible. La tenue du fruit — la nouaison — dépend donc du bore à la floraison. Or il présente l'une des marges carence/excès les plus étroites du règne végétal, imposant un pilotage précis.
Illustration : Fig. C37-A · C37 — Bore : du borate à la fécondation — réticulation pariétale RG-II et marge étroite…
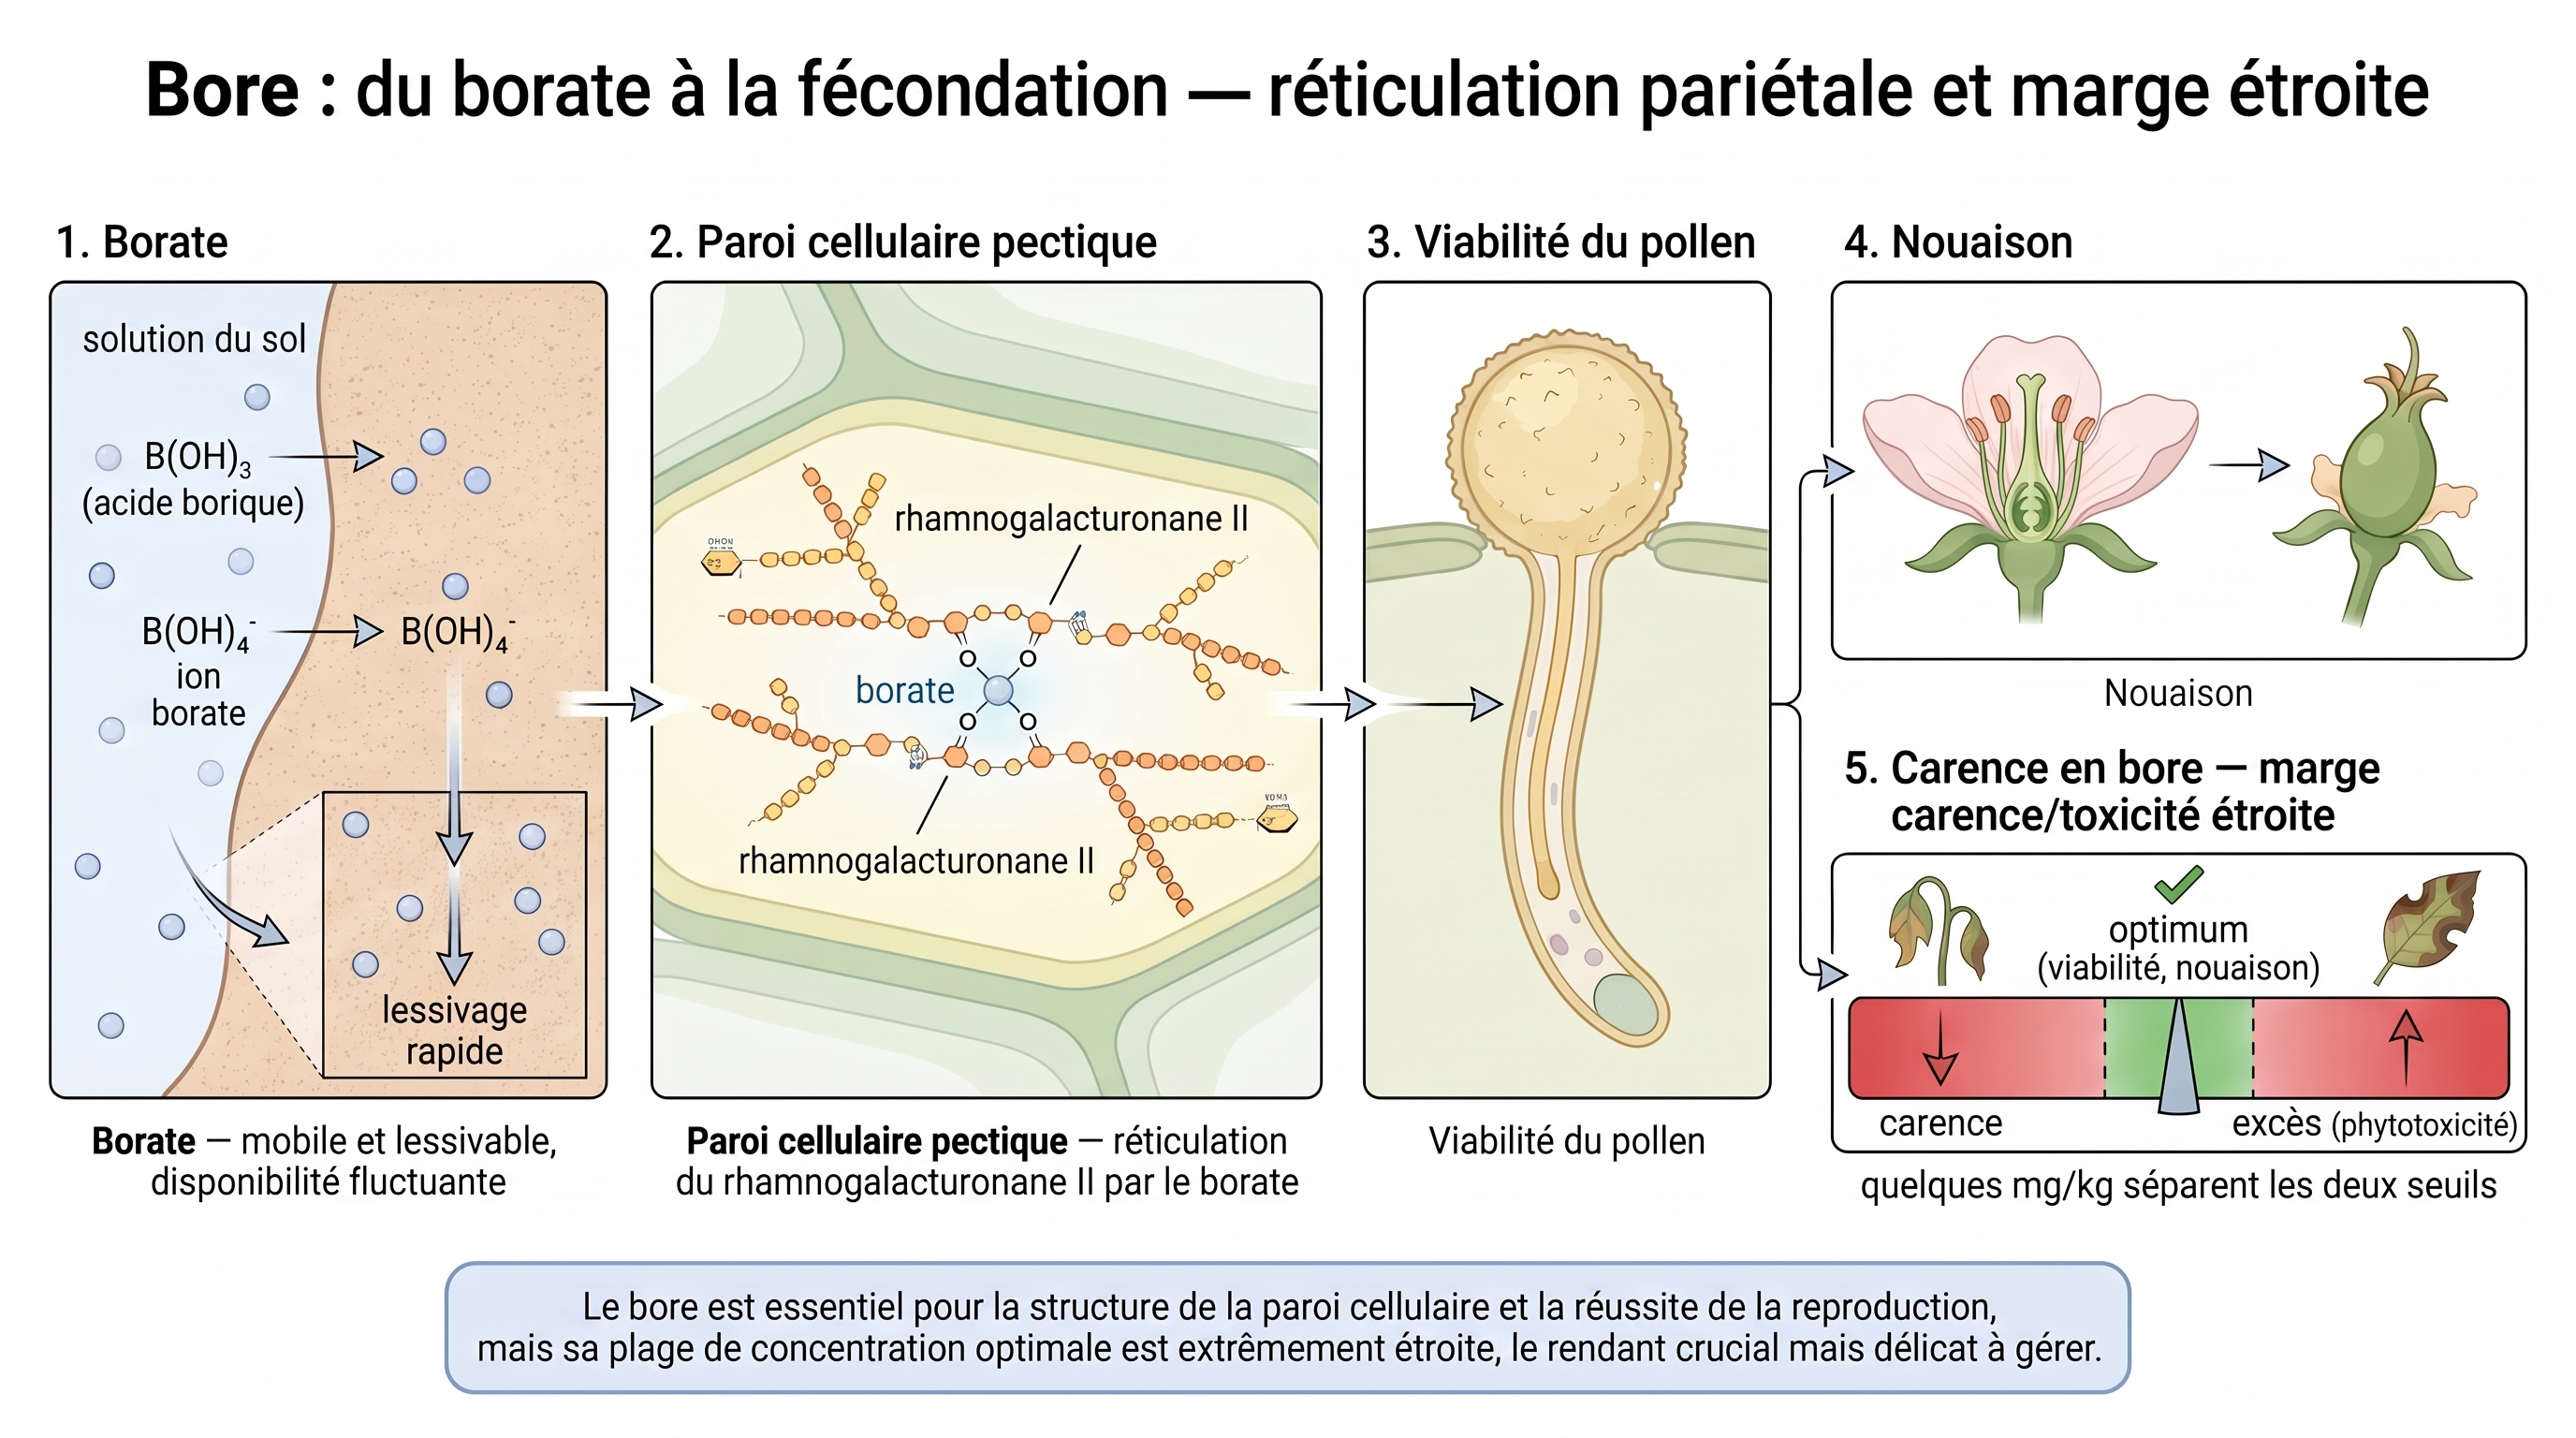
Science
- borate (S4) : Le bore est prélevé majoritairement sous forme d'acide borique (non dissocié) dans la solution du sol ; faiblement retenu par le complexe argilo-humique, il est très mobile et lessivable en sol léger ou sableux — d'où une disponibilité fluctuante qui conditionne tout l'aval reproductif.
→ fiche #208 · fiche #246 - paroi cellulaire pectique (V2) : Dans la paroi primaire, le borate réticule deux chaînes de rhamnogalacturonane II (RG-II) en un complexe diester : armature qui assure l'intégrité, la plasticité et l'expansion contrôlée de la paroi pectique.
→ fiche #246 - viabilité du pollen (V2) : La fonction la plus sensible au bore est reproductive : germination du grain de pollen et croissance du tube pollinique exigent un apport borique continu — un déficit local compromet la fécondation avant tout symptôme végétatif visible.
→ fiche #246 - nouaison (V2) : Fécondation réussie → nouaison : la formation et la rétention du fruit dépendent directement du statut borique à la floraison, fenêtre critique où se joue une part majeure du rendement.
→ fiche #246 - carence en bore (P1) : Le bore présente l'une des marges carence/toxicité les plus étroites (quelques mg/kg séparent déficit et phytotoxicité) : carence borique — la plus répandue des carences en oligo-éléments — et excès se côtoient, imposant un diagnostic et un pilotage de précision.
→ fiche #246
C38 : Cycle du soufre : du sulfate du sol à la santé humaine
Argument
Le soufre est le quatrième grand élément de la vie, trop souvent oublié. Il relie un minéral du sol — le sulfate, seule forme que les plantes absorbent — à des molécules essentielles de notre corps. Dans les zones du sol privées d'oxygène, des bactéries transforment ce sulfate en sulfure ; cette chimie, couplée à la dégradation du méthane, relie les cycles du soufre, du fer et du carbone. Le sulfure produit peut être recyclé, et sert même de messager dans le vivant. Une autre voie, dite assimilatrice, incorpore le soufre dans les tissus : c'est elle qui fournit la charpente des acides aminés soufrés, cystéine en tête. Transmis par la nourriture, ces acides aminés, dont la méthionine, servent chez l'humain à fabriquer protéines et glutathion, notre antioxydant majeur.
Illustration : Fig. C38-A · C38 — Cycle du soufre : du sulfate du sol à la santé humaine…
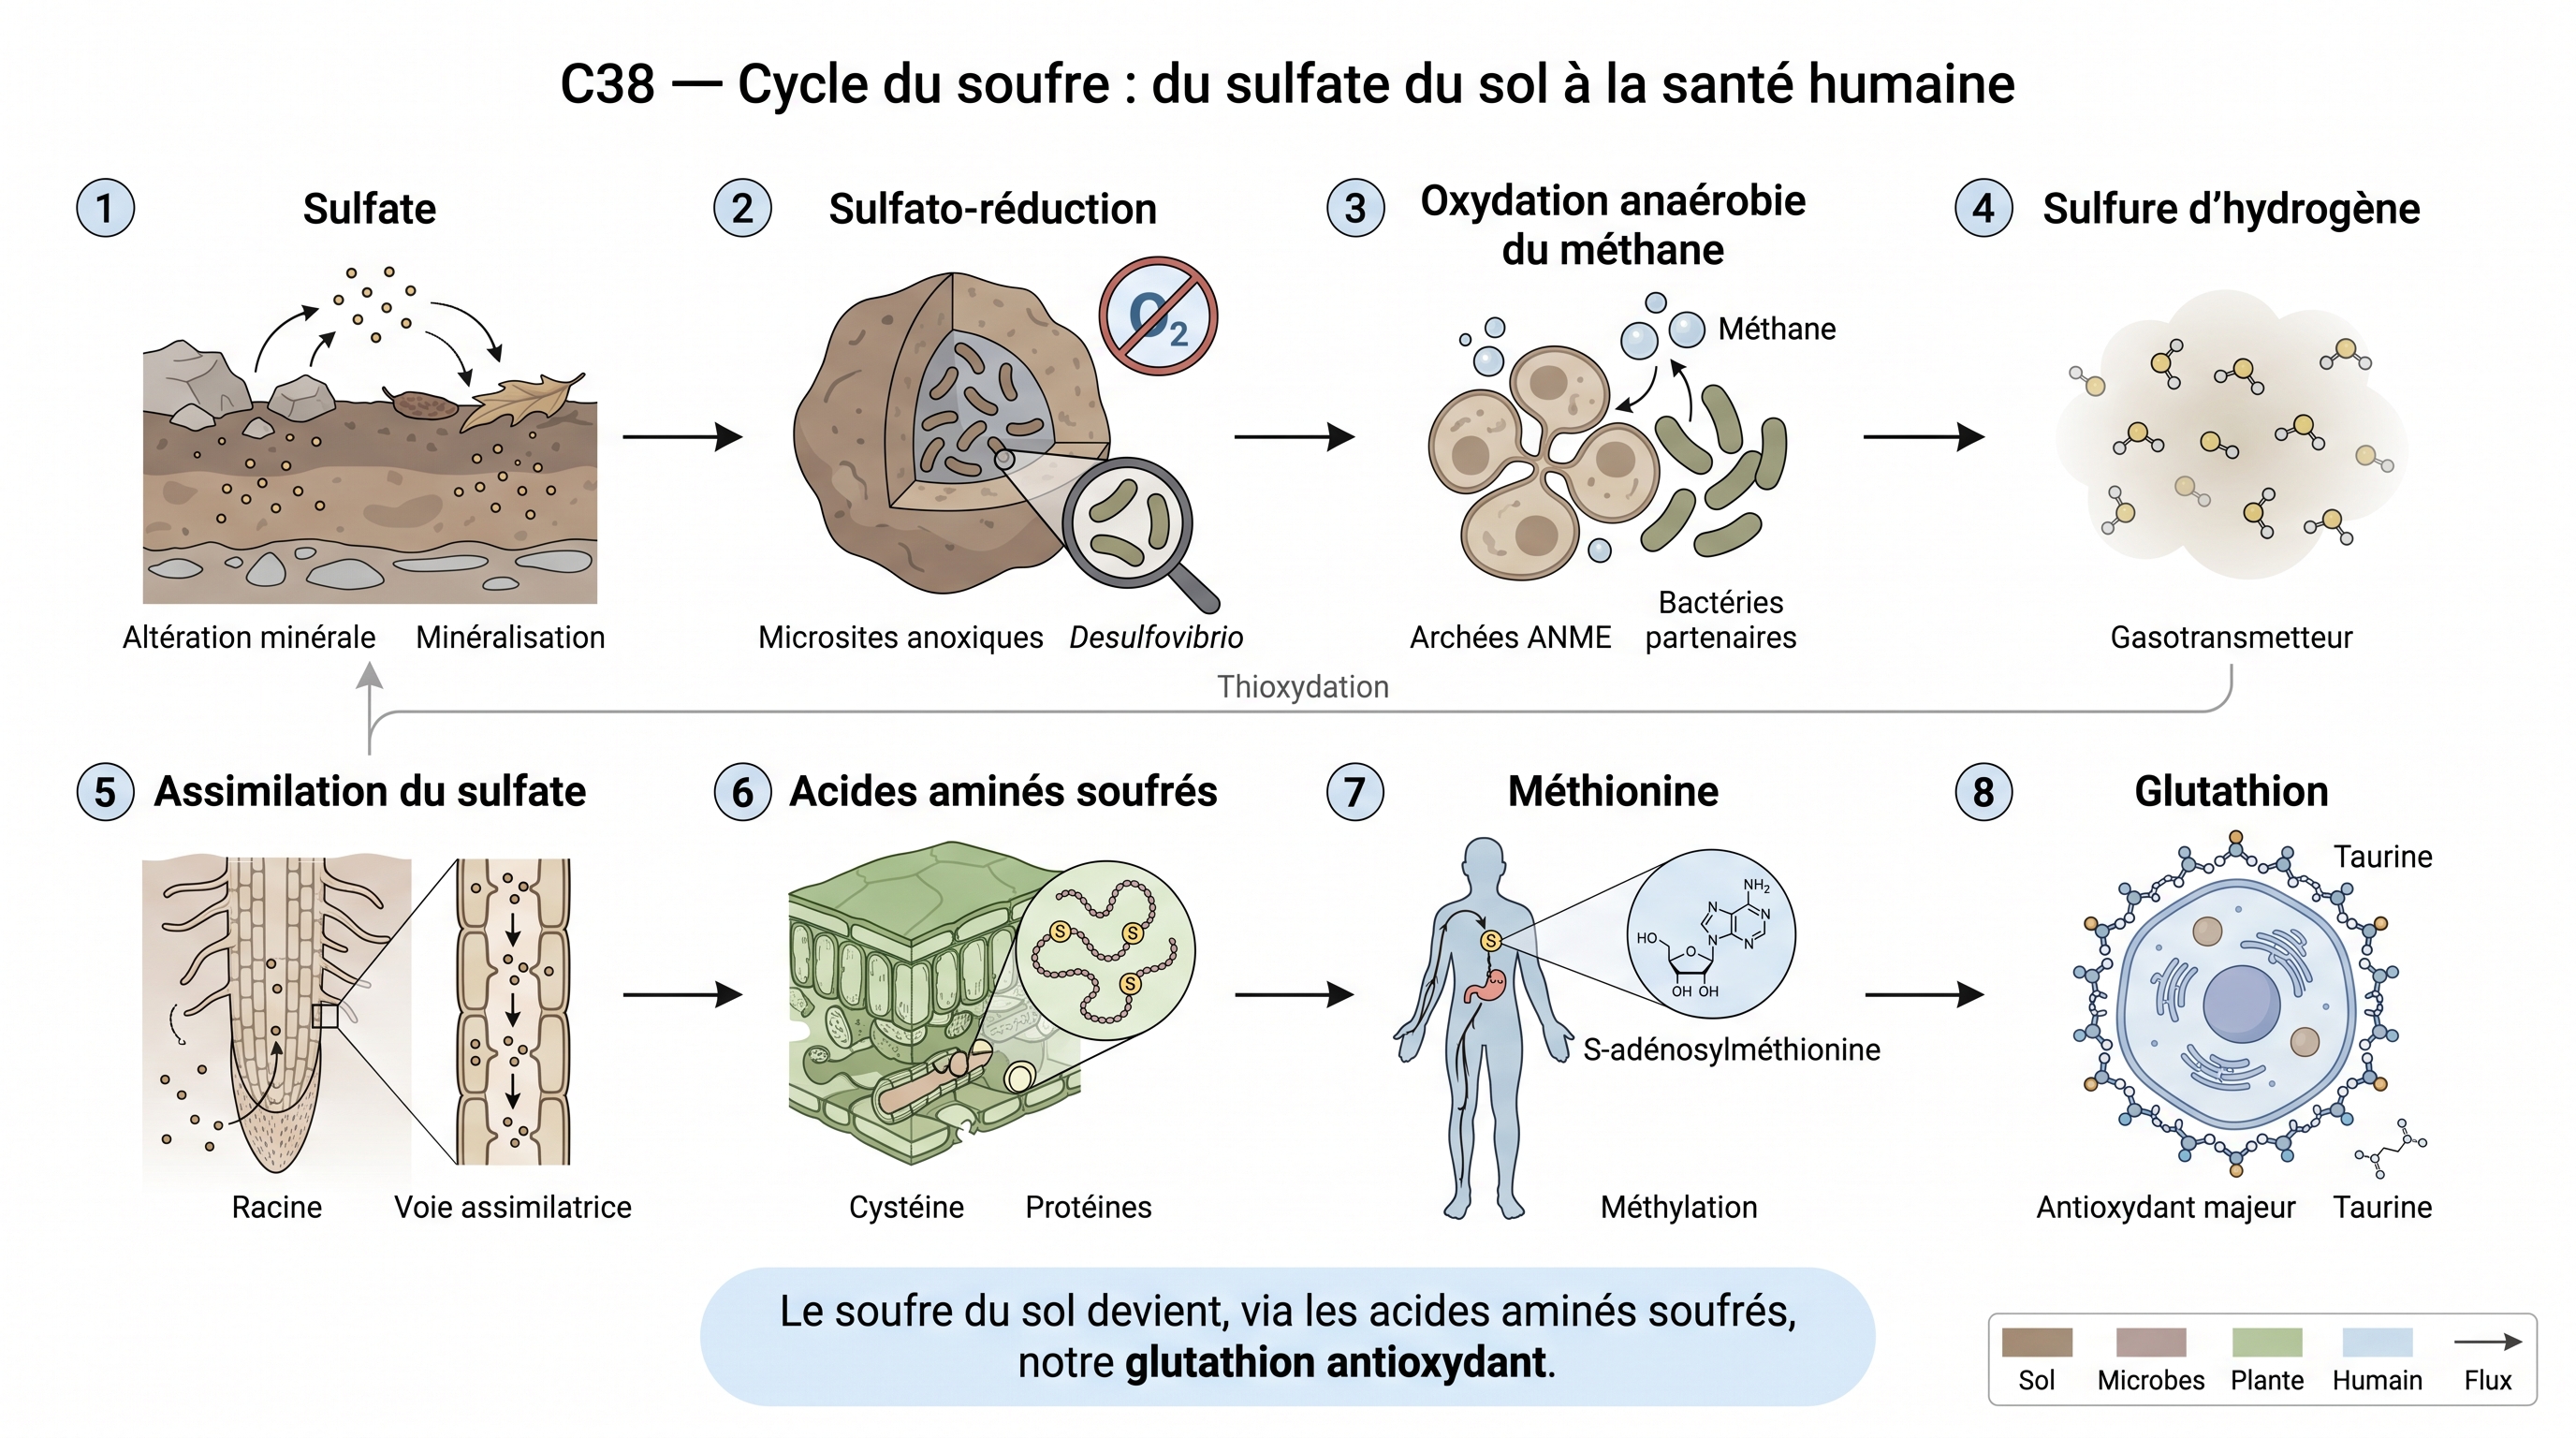
Science
- Sulfate (S4) : Le pool de sulfate (SO₄²⁻) du sol — issu de l'altération minérale, des dépôts atmosphériques et de la minéralisation de la matière organique — est la forme assimilable de départ du cycle du soufre.
→ fiche #238 - Sulfato-réduction (S2) : En microsites anoxiques, les bactéries sulfato-réductrices (Desulfovibrio) réduisent ce sulfate en sulfure ; l'étape est couplée à l'oxydation anaérobie du méthane (consortiums ANME-SRB, AOM), reliant cycles du soufre, du fer et du méthane.
→ fiche #23 · fiche #152 - sulfure d'hydrogène (S4) : Le sulfure d'hydrogène (H₂S) produit est soit réoxydé le long de la cascade redox, soit reminéralisé ; il agit aussi comme gasotransmetteur, préfigurant son rôle physiologique aval.
→ fiche #268 - assimilation du sulfate (V2) : Distincte de la voie dissimilatrice (respiration anaérobie produisant du H2S), la réduction assimilatrice du sulfate — via APS puis PAPS et sulfite — est la voie qui incorpore réellement le soufre dans la matière vivante, fournissant le squelette des acides aminés soufrés.
→ fiche #238 - acides aminés soufrés (V2) : Le soufre réduit par voie assimilatrice est incorporé dans les acides aminés soufrés (cystéine en premier), briques de structure protéique et de régulation redox du vivant.
→ fiche #238 - méthionine (H1) : Transférés par voie trophique, méthionine et cystéine alimentent la nutrition humaine (synthèse protéique, méthylation via la S-adénosylméthionine).
→ fiche #238 - glutathion (H1) : Aboutissement physiologique : ces acides aminés soufrés alimentent le glutathion (antioxydant majeur), la taurine et le H₂S endogène — maillon « du sol à la santé ».
→ fiche #238 · fiche #241
C39 : Axe thyroïdien sol-aliment : du sélénium et de l'iode du sol à la fonction thyroïdienne
Argument
Notre thyroïde, glande qui règle notre métabolisme, dépend de deux éléments que le sol décide : l'iode et le sélénium. L'iode est peu prélevé par les plantes, qui n'en ont pas besoin ; le sélénium est absorbé par mimétisme, en empruntant les transporteurs du soufre. La teneur de l'aliment suit celle du sol : des cultures vigoureuses peuvent en être pauvres, et la faim cachée se transmet à l'assiette. Une fois ingéré, l'iode devient le substrat irremplaçable de la thyroïde : incorporé à une protéine, la thyroglobuline, il forme les précurseurs des hormones thyroïdiennes. Le sélénium prend le relais : ses enzymes activent l'hormone, sans quoi elle resterait inactive. Quand un maillon cède, goitre et hypothyroïdie menacent : la thyroïde lit le sol.
Illustration : Fig. C39-A · C39 — Axe thyroïdien sol-aliment : du sélénium et de l'iode du sol à la fonction thyroïdienne…
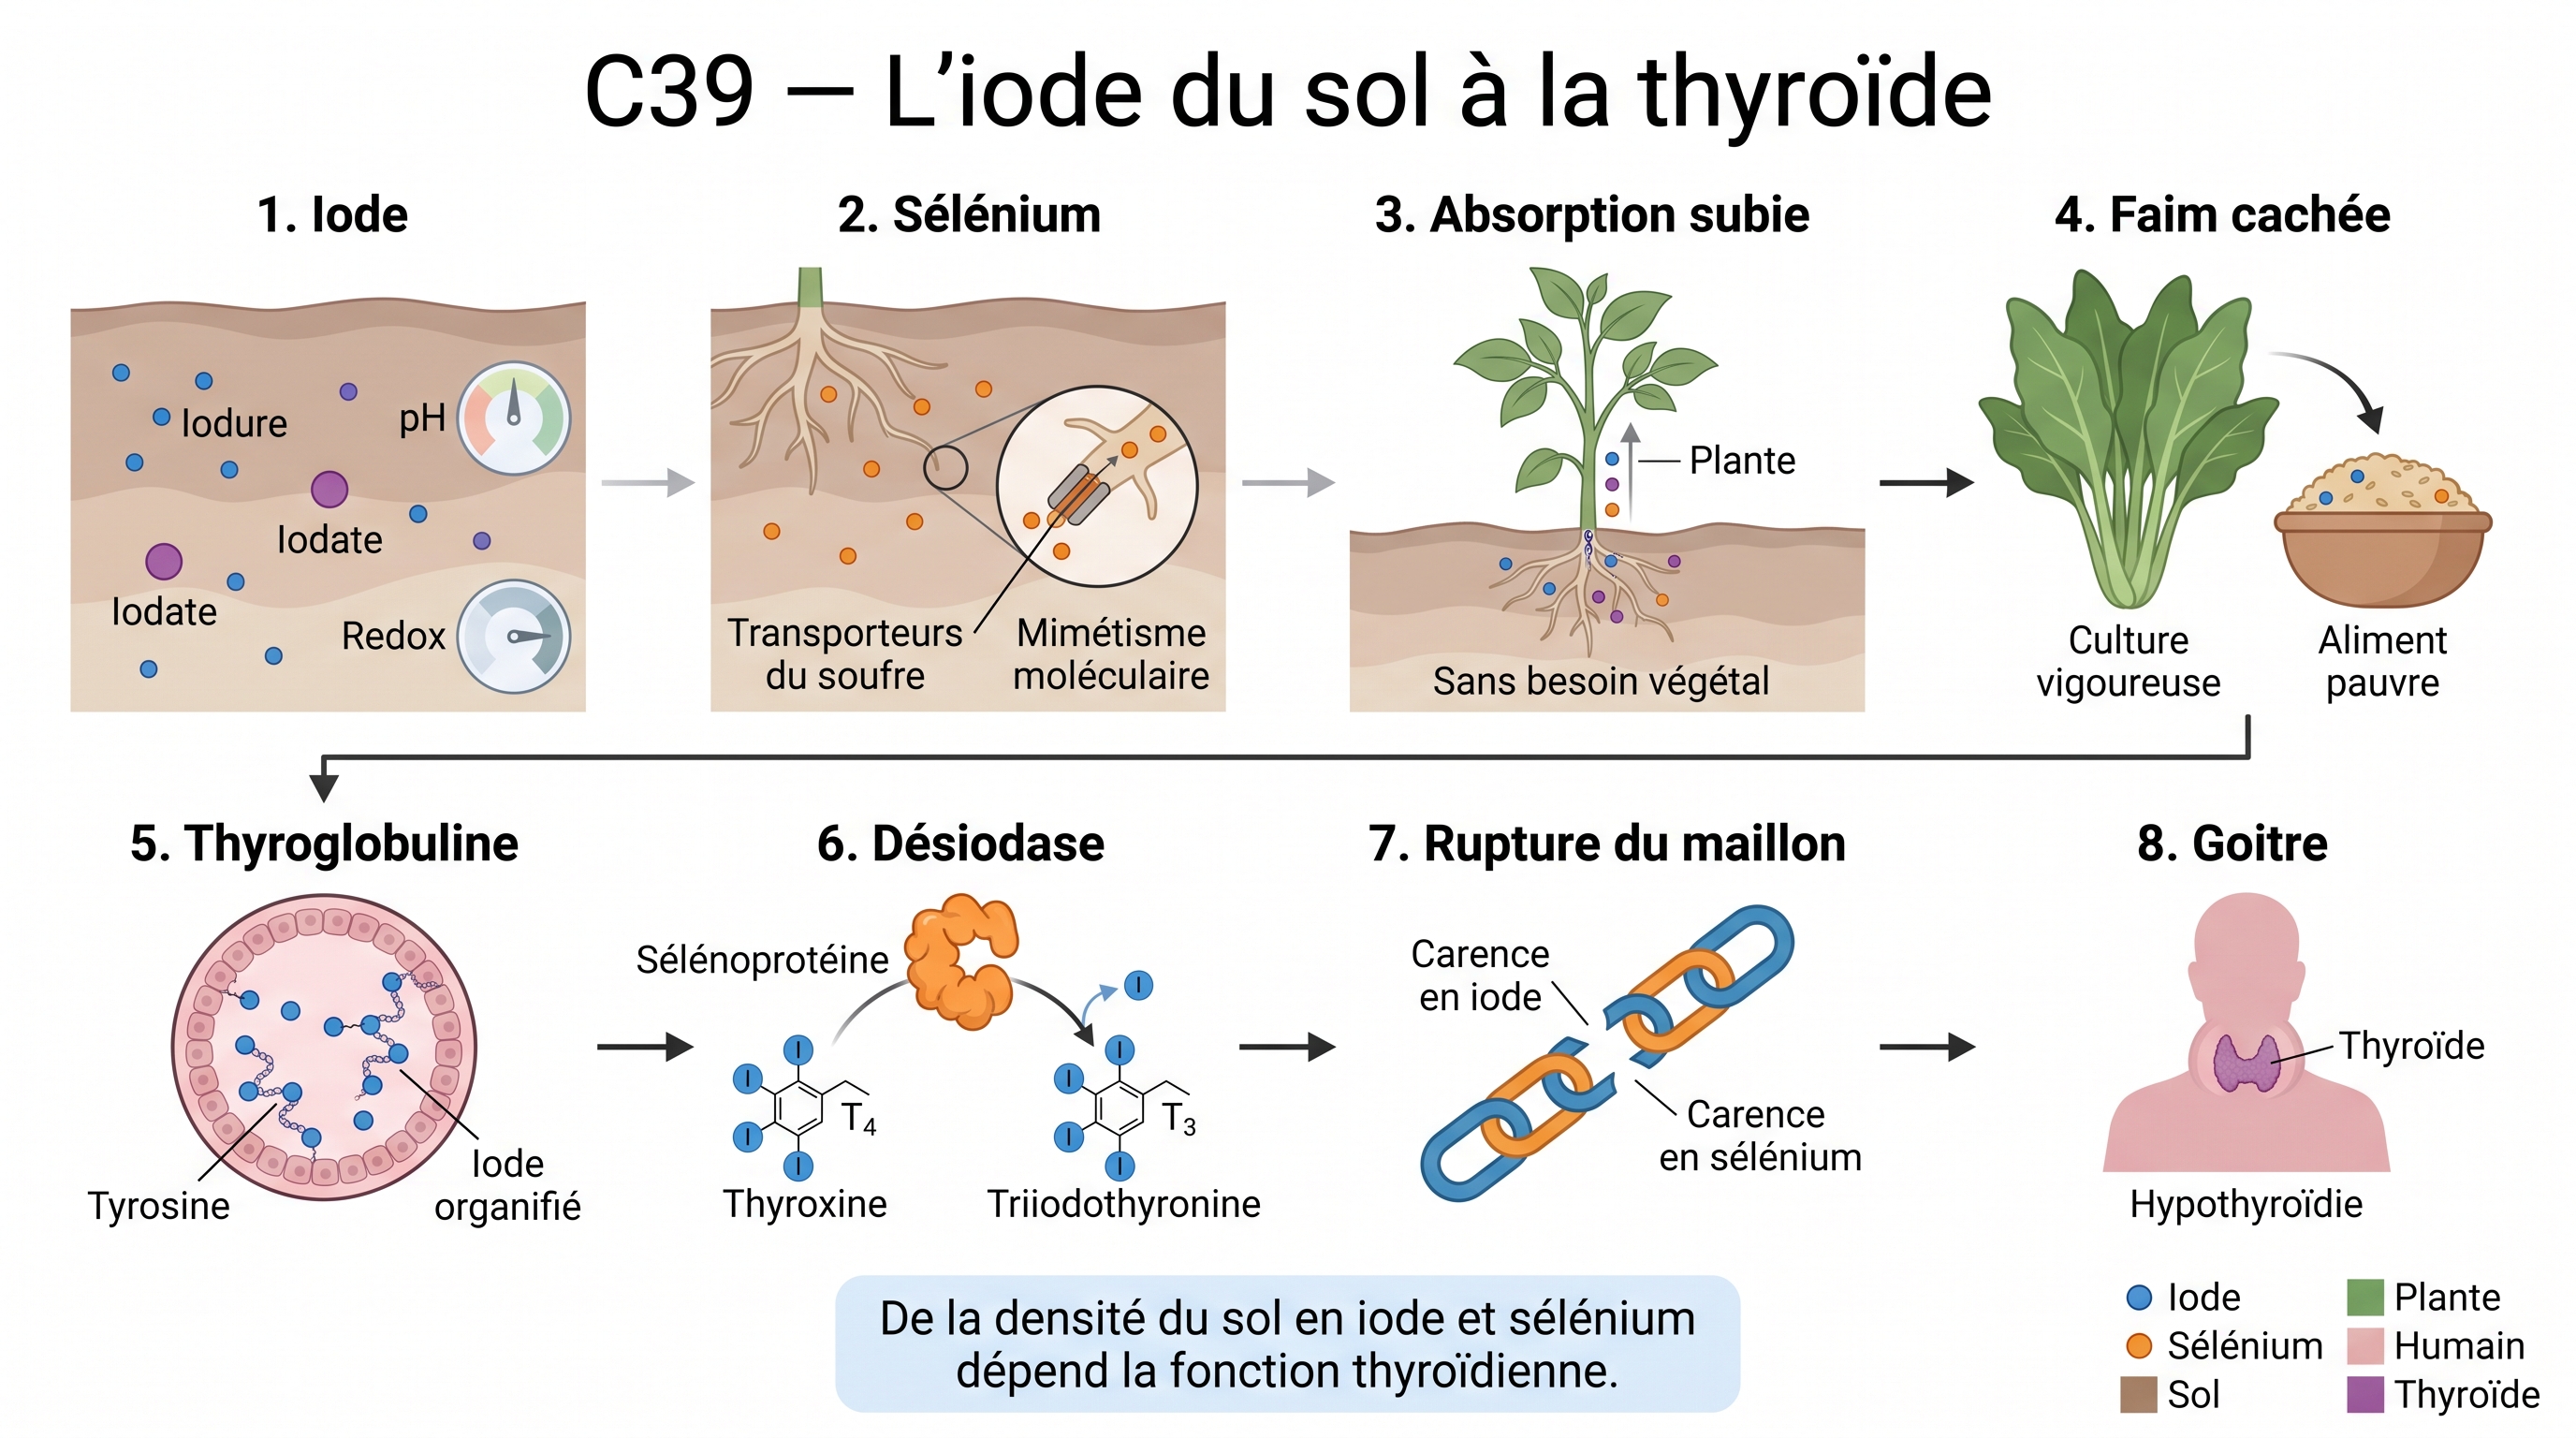
Science
- iode (S4) : Dans le sol, l'iode (iodures, iodates) a une disponibilité gouvernée par le pH, le redox et la matière organique. Le maillon sol→plante est ténu : sans rôle essentiel reconnu chez la plante, l'iode est peu prélevé.
→ fiche #242 - mimétisme moléculaire (V2) : Le sélénium, lui, est prélevé par mimétisme moléculaire du sulfate (les sélénates empruntent les transporteurs du soufre). Comme l'iode, son absorption est subie, non régulée par un besoin végétal.
→ fiche #238 · fiche #241 - faim cachée (H1) : Faute de besoin végétal, la densité en Se et I de l'aliment suit passivement celle du sol : des cultures vigoureuses peuvent être nutritionnellement insuffisantes — la faim cachée se transmet à l'humain.
→ fiche #64 · fiche #242 - thyroglobuline (H1) : À l'ingestion, l'iode devient le substrat irremplaçable de la thyroïde : il est organifié sur les résidus tyrosine de la thyroglobuline pour former les précurseurs hormonaux T3/T4.
→ fiche #242 - désiodase (H1) : Le sélénium prend le relais : les désiodases (sélénoprotéines) convertissent la T4 réservoir en T3 active dans les tissus. Sans sélénium, l'hormone reste inactive malgré un apport d'iode suffisant.
→ fiche #241 - goitre (H1) : La rupture du maillon — carence en iode (substrat) ou en sélénium (activation) — aboutit au goitre et à l'hypothyroïdie : la fonction thyroïdienne est un marqueur direct de la densité micronutritionnelle du sol.
→ fiche #64 · fiche #242
C40 : Micronutriments métalliques : de la mobilisation mycorhizienne (sidérophores) à la correction de la faim cachée
Argument
Le fer, le zinc et le manganèse de nos aliments sont dans le sol, mais prisonniers de la roche : c'est le vivant qui en détient la clé. En sol calcaire ou oxydé, des micro-organismes sécrètent des sidérophores qui décrochent le fer, quand d'autres chélateurs libèrent zinc et manganèse. Les champignons mycorhiziens, associés aux racines, élargissent le terrain exploré et portent ces métaux à la plante. Certaines plantes, comme les graminées, ajoutent leurs chélateurs racinaires pour acheminer le fer vers le grain. Quand cette mobilisation fait défaut, l'aliment reste pauvre malgré des rendements normaux : c'est la faim cachée. Chez l'humain, ce manque altère l'immunité et la croissance ; le corriger passe moins par des comprimés que par la biodisponibilité au champ.
Illustration : Fig. C40-A · C40 — Micronutriments métalliques : de la mobilisation mycorhizienne (sidérophores) à la correction de la faim cachée…
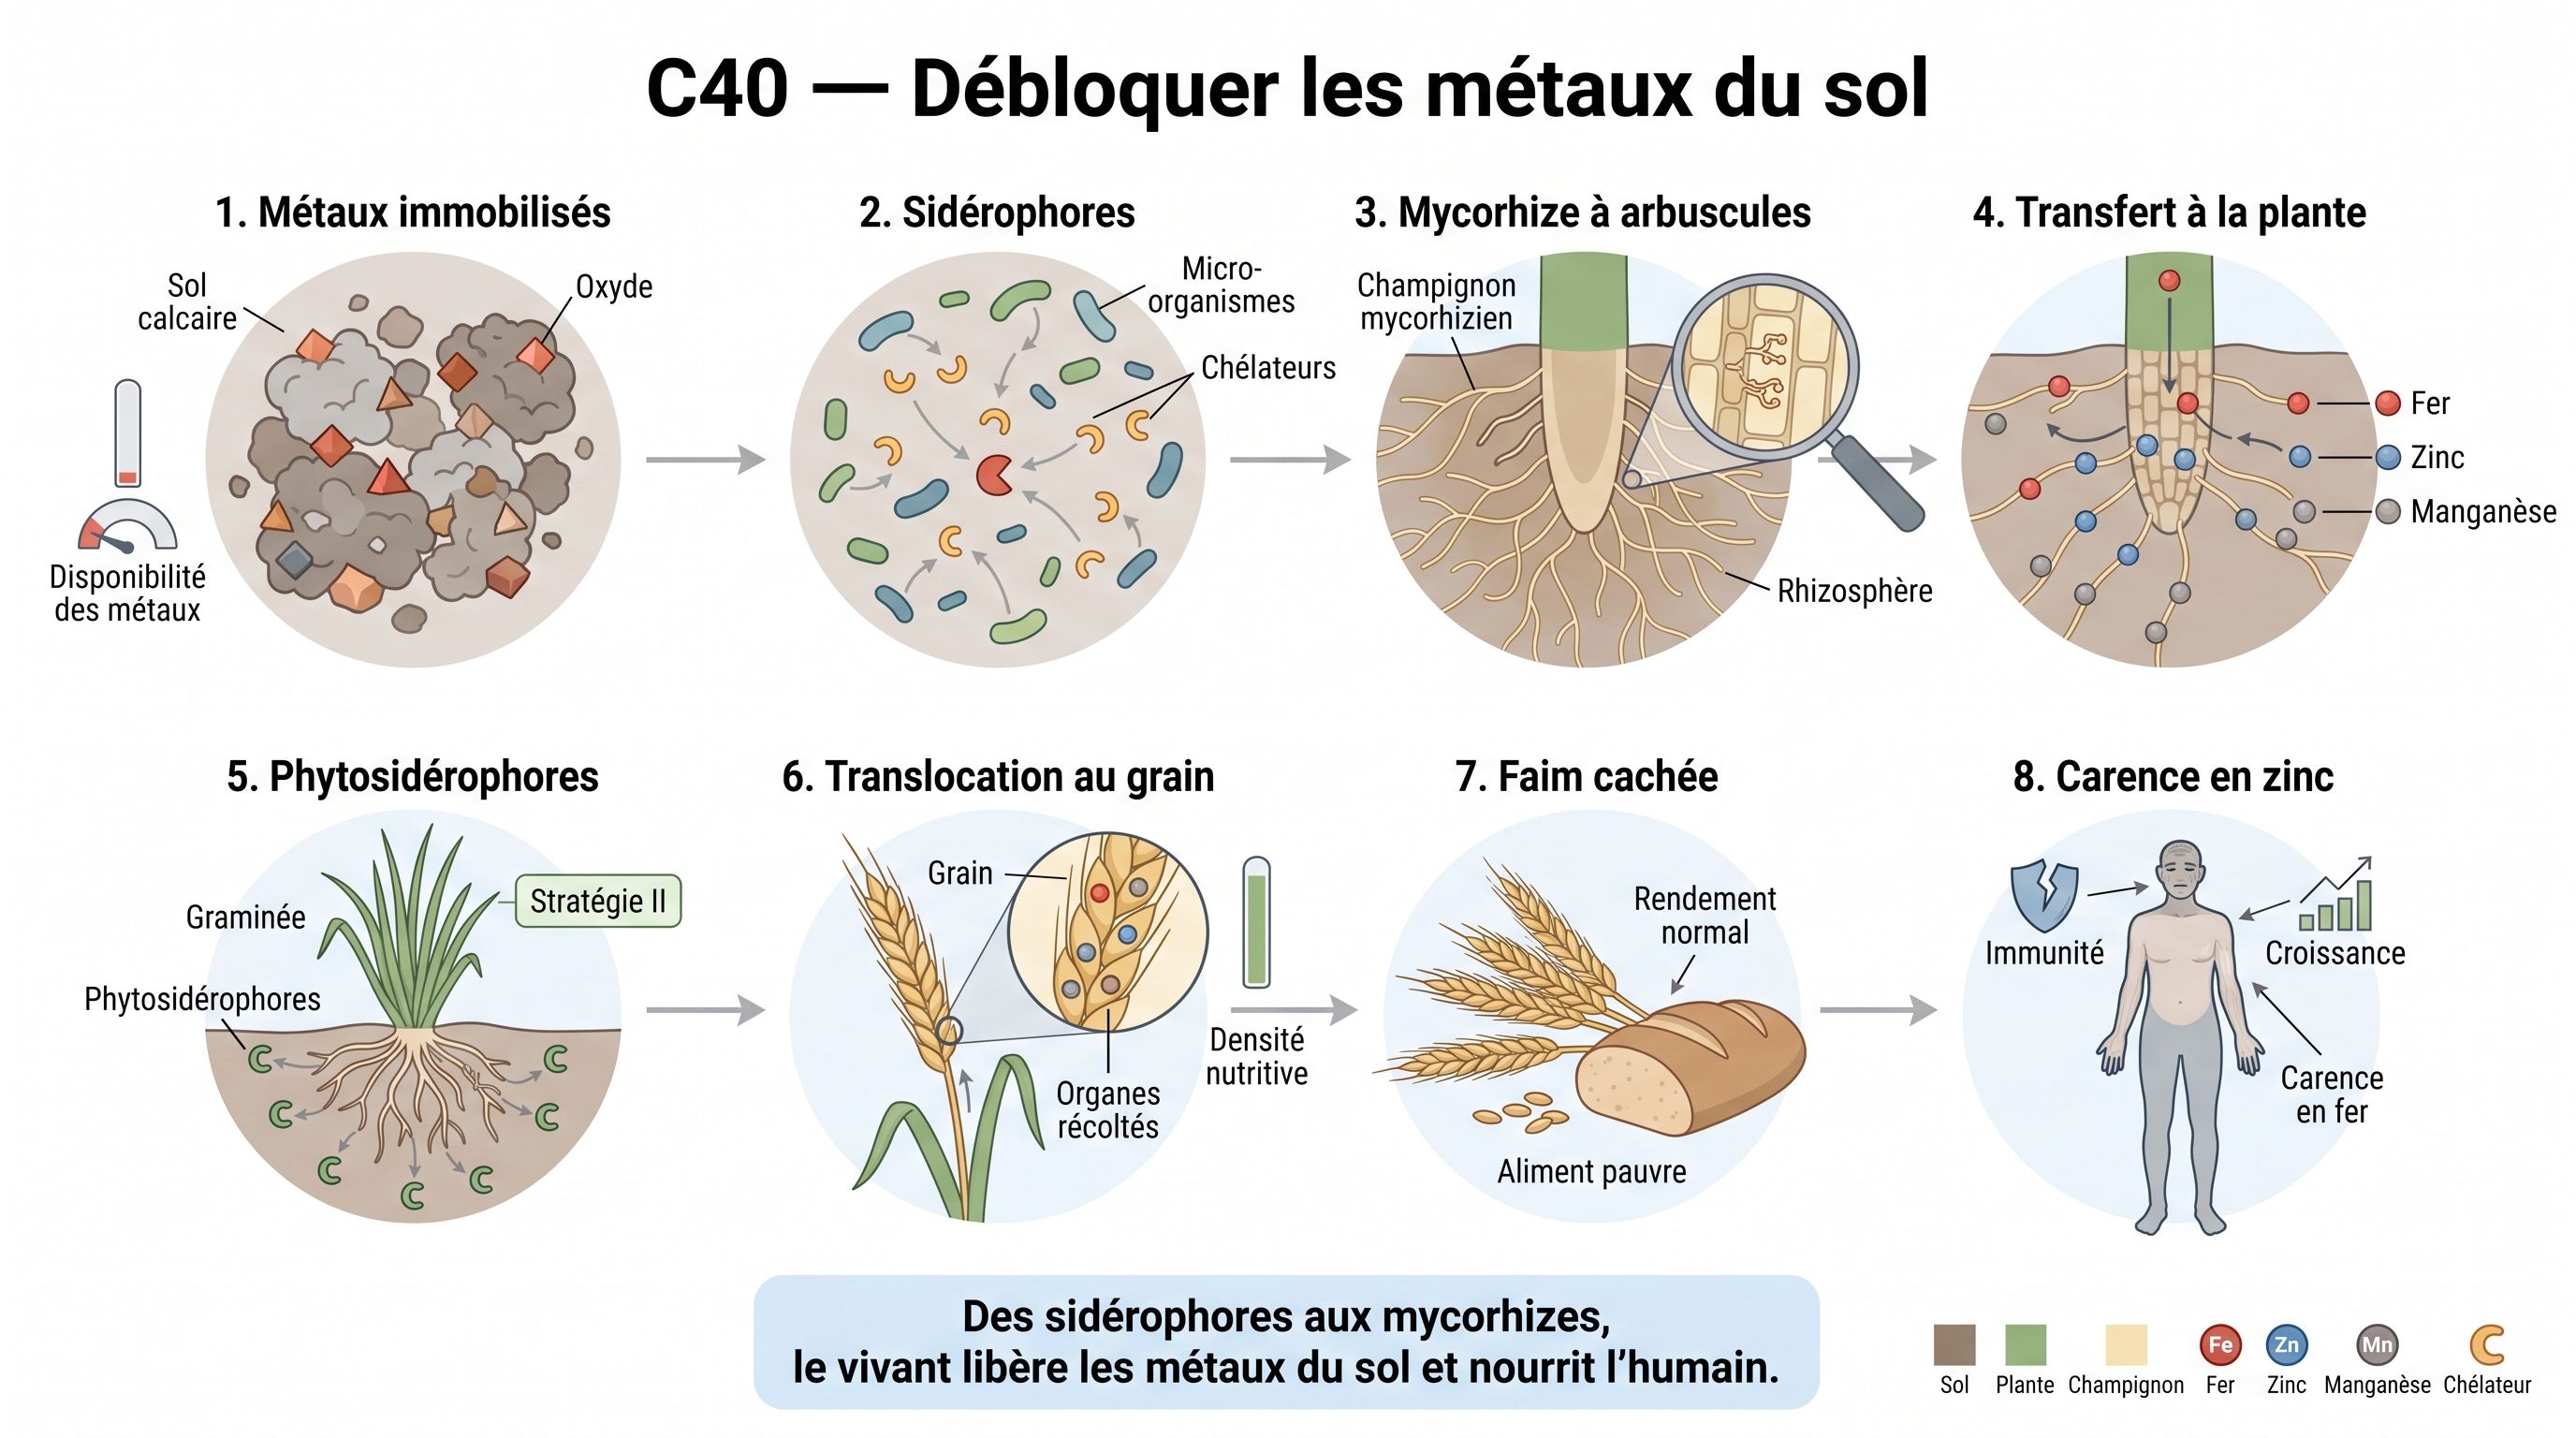
Science
- Sidérophores (S2) : En sol calcaire ou oxydé, le fer et d'autres métaux (Zn, Mn) sont immobilisés et peu biodisponibles. Les micro-organismes sécrètent des sidérophores, chélateurs qui solubilisent ces métaux et amorcent leur mobilisation.
→ fiche #211 - champignon mycorhizien à arbuscules (S3) : Les champignons mycorhiziens à arbuscules étendent le volume de sol exploré bien au-delà de la rhizosphère et transfèrent à la plante le fer, le zinc et le manganèse mobilisés — interface clé de l'absorption métallique.
→ fiche #110 · fiche #240 - phytosidérophores (V2) : La plante contribue : les graminées (stratégie II) sécrètent des phytosidérophores qui prélèvent le fer, puis le transloquent vers les organes récoltés. La densité métallique du grain en dépend directement.
→ fiche #211 · fiche #250 - faim cachée (H1) : Quand cette mobilisation fait défaut — sol pourvu mais bloqué — l'aliment est pauvre en métaux malgré des rendements normaux : c'est la faim cachée métallique, symétrique de l'exclusion des métaux toxiques (C22).
→ fiche #64 · fiche #110 - carence en zinc (H1) : Chez l'humain, la carence en zinc et en fer altère l'immunité, la croissance et le développement. Sa correction durable passe moins par la supplémentation que par la biodisponibilité métallique au champ.
→ fiche #240 · fiche #250
C41 : Rhizobactéries → priming immunitaire → antifragilité végétale
Argument
Et si le système immunitaire d'une plante s'entraînait, au contact du sol vivant, comme un muscle ? Les bactéries et champignons des racines exposent des signaux perçus comme une alerte, non comme une menace. À faible dose, ils n'enclenchent pas la défense : ils la préparent, laissant la plante prête à réagir plus vite et plus fort qu'une plante naïve. Cet apprêtement, le priming immunitaire, se stabilise par des marques sur ses chromosomes, mémoire transmissible à la descendance. Au contact d'un agresseur, la plante préparée réagit plus vite et plus fort, dans tout l'organisme. Pour imager ce gain, certains parlent d'antifragilité, métaphore plutôt que résultat expérimental. Le socle est réel : un sol vivant entretient une immunité entraînable et réduit les pesticides.
Illustration : Fig. C41-A · C41 — Rhizobactéries → priming immunitaire → antifragilité végétale…
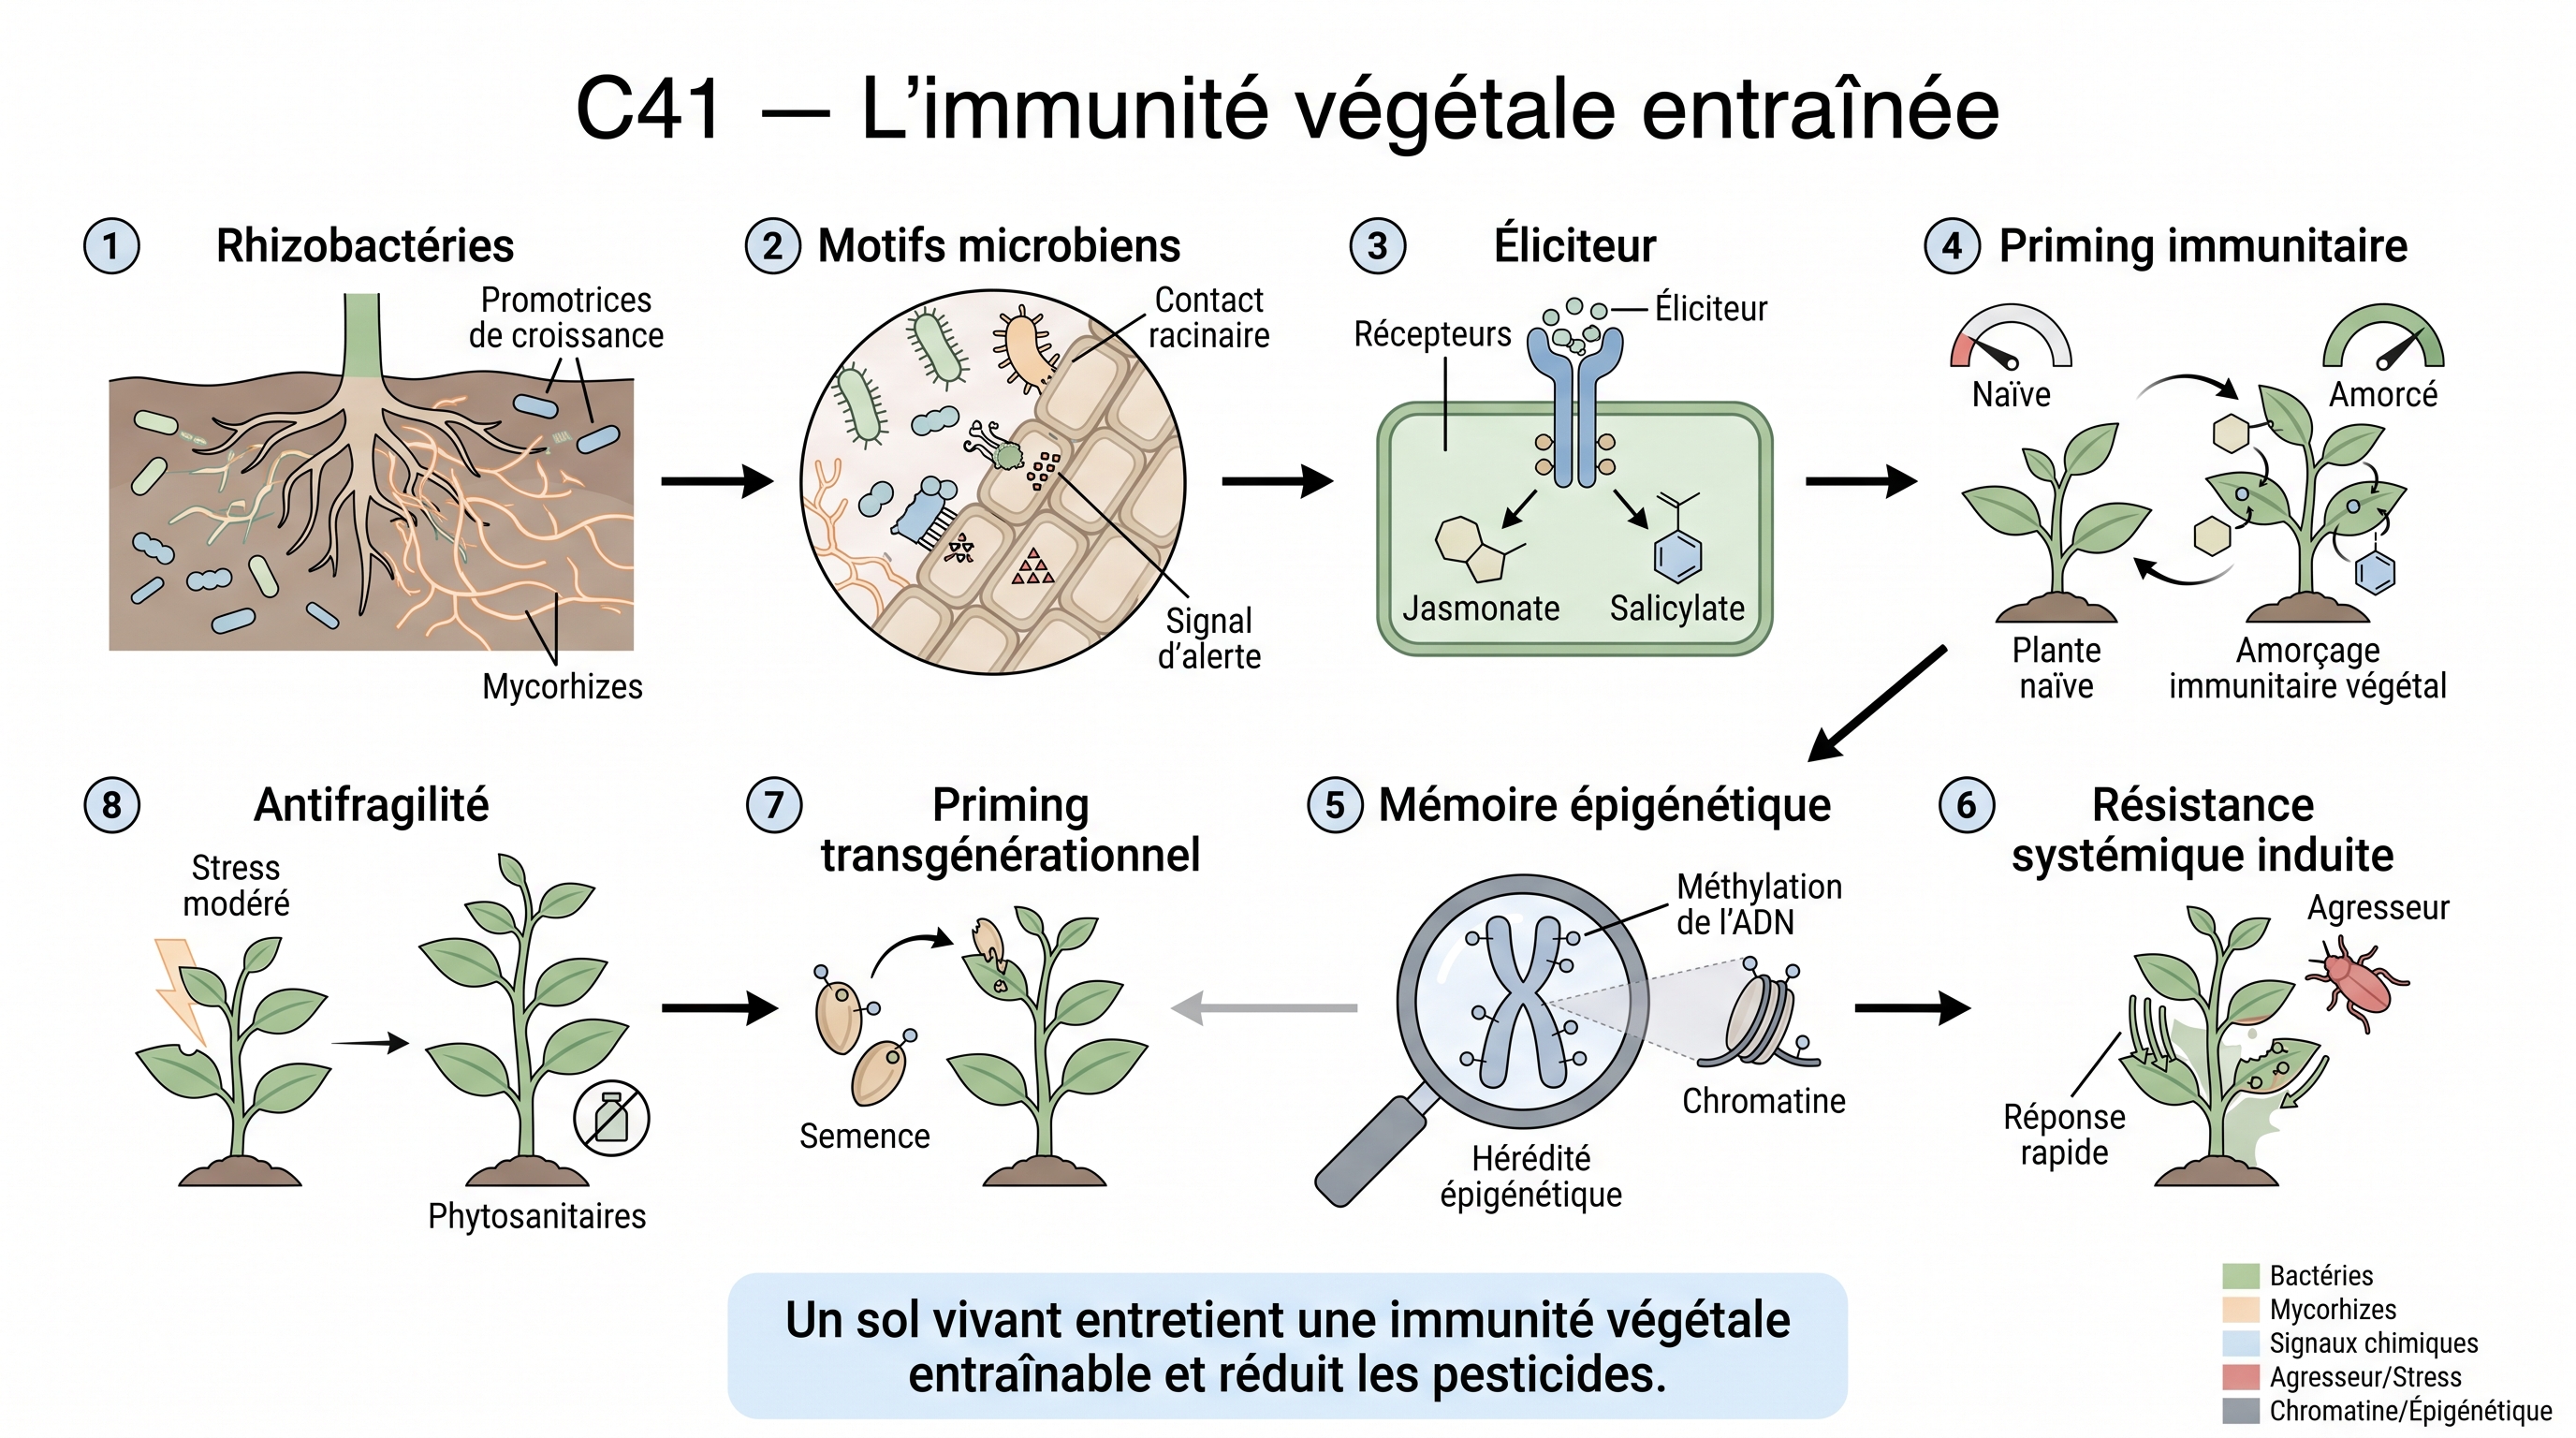
Science
- rhizobactéries promotrices de croissance (S2) : Dans la rhizosphère, les rhizobactéries promotrices de croissance (PGPR) et les mycorhizes colonisent la racine et exposent des motifs microbiens — un contact perçu non comme une menace mais comme un signal d'alerte fondateur.
→ fiche #113 · fiche #209 - éliciteur (V2) : Ces motifs agissent comme des éliciteurs : perçus par les récepteurs racinaires, ils activent à bas bruit les voies jasmonate et salicylate sans déclencher de défense coûteuse immédiate.
→ fiche #78 · fiche #212 - Priming immunitaire végétal (V2) : À faible dose, ces signaux n'enclenchent pas la défense mais l'apprêtent : la plante entre en état primed, prête à réagir plus vite et plus fort qu'une plante naïve.
→ fiche #32 · fiche #199 - mémoire épigénétique (V2) : Cet état d'apprêtement est stabilisé par des marques épigénétiques (méthylation de l'ADN, remodelage de la chromatine) — une mémoire moléculaire durable de l'alerte initiale.
→ fiche #32 - Résistance systémique induite (V2) : Au contact réel d'un agresseur, la plante primée déclenche une résistance systémique induite plus rapide et plus intense, propagée à l'ensemble de ses organes.
→ fiche #199 · fiche #209 - Priming transgénérationnel (V2) : Ces marques épigénétiques peuvent se transmettre à la descendance : le priming devient transgénérationnel, léguant l'expérience immunitaire des parents aux générations suivantes.
→ fiche #32 · fiche #199 - Antifragilité (F2) : Bilan : un stress modéré et répété ne fragilise pas mais renforce durablement le système immunitaire végétal — une antifragilité qui réduit la dépendance aux produits phytosanitaires.
→ fiche #113 · fiche #222
C42 : Microsites anoxiques → compétition des accepteurs d'électrons → suppression du méthane
Argument
Pourquoi le méthane, gaz à effet de serre puissant, ne s'échappe-t-il massivement que de certains sols ? Dans un sol gorgé d'eau ou tassé, se forment des microsites sans air où les micro-organismes consomment des accepteurs d'électrons de rechange — nitrate, manganèse, fer, sulfate, puis gaz carbonique — chacun moins rentable. Tant que fer oxydé et sulfate subsistent, leurs bactéries captent l'hydrogène et l'acétate, nourriture des microbes à méthane. Les producteurs de méthane, servis en dernier, sont étouffés : le méthane ne s'accumule qu'une fois fer et sulfate épuisés. D'où un levier contre-intuitif : entretenir un stock de sulfate ou de fer dans les sols engorgés et les rizières repousse ce front et réduit le méthane émis, bien plus réchauffant que le CO₂.
Illustration : Fig. C42-A · C42 — Microsites anoxiques → compétition des accepteurs d'électrons → suppression du méthane…
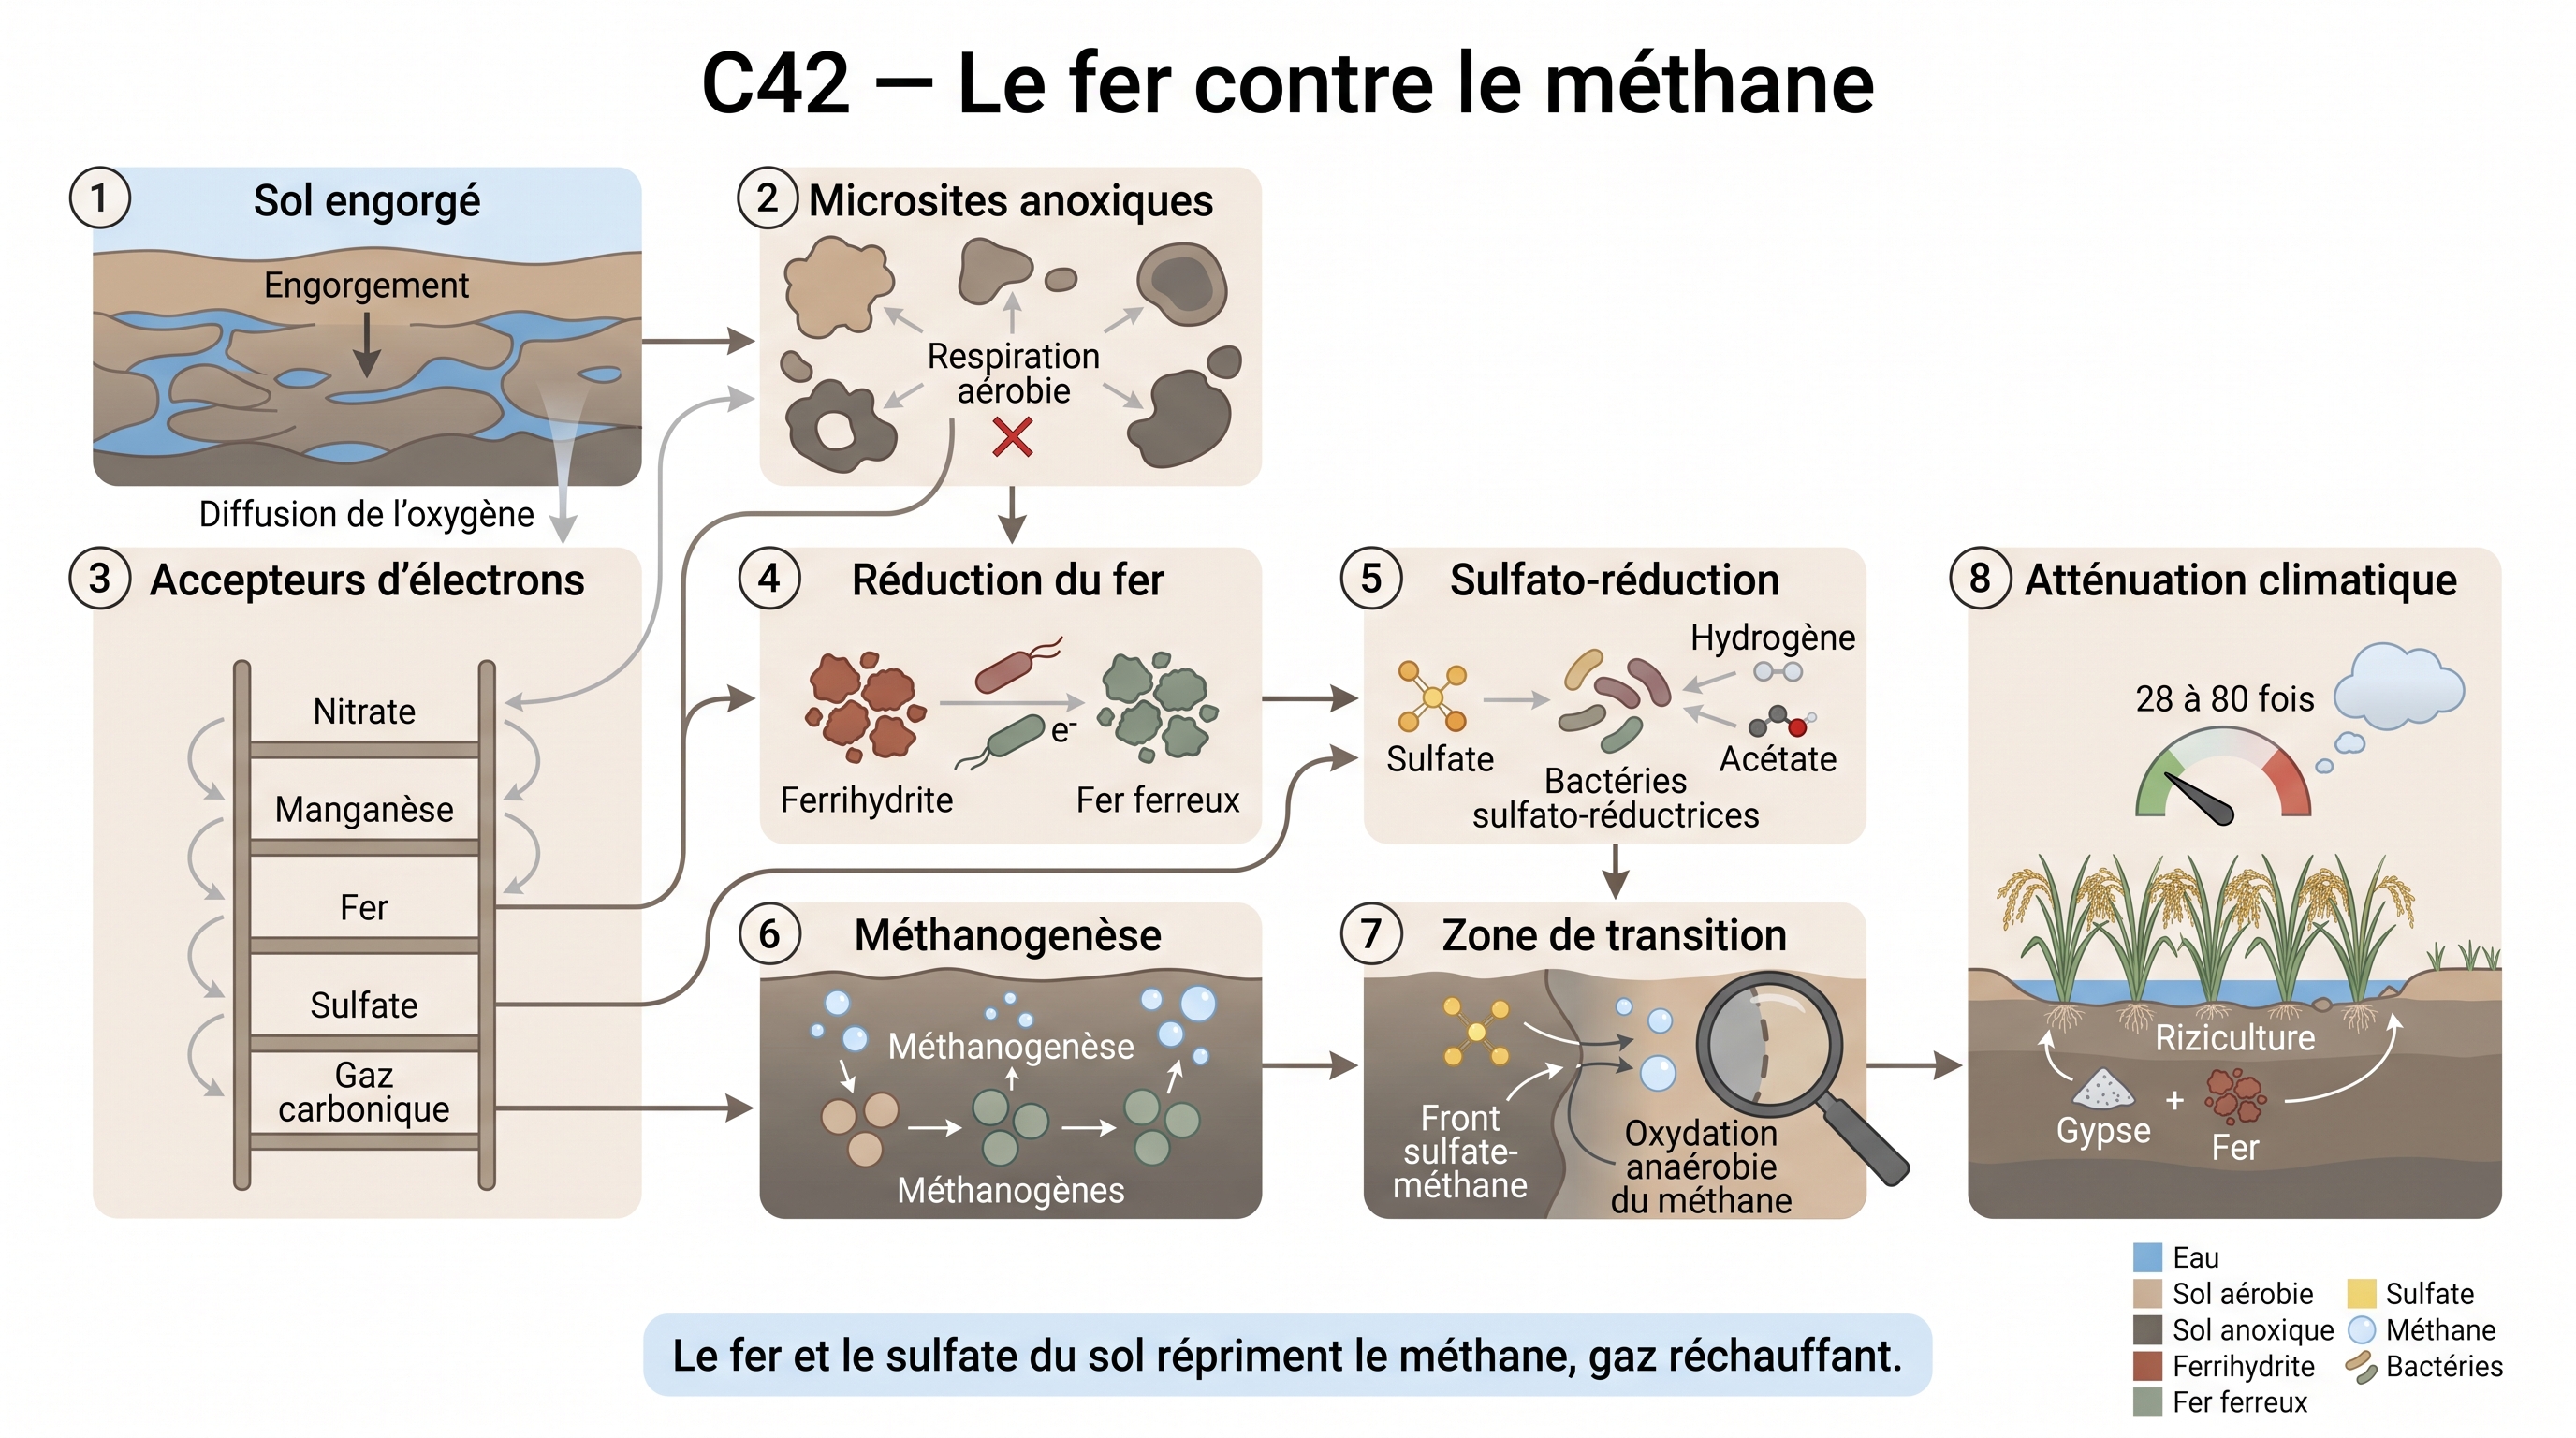
Science
- microsites anoxiques (S4) : Dans un sol engorgé ou compacté, la diffusion de l'oxygène s'effondre : des microsites anoxiques se forment, où la respiration aérobie devient impossible.
→ fiche #23 · fiche #121 - Accepteur d’électrons (S4) : Privés d'oxygène, les micro-organismes mobilisent les accepteurs d'électrons alternatifs dans un ordre thermodynamique strict — nitrate, manganèse, fer(III), sulfate, puis CO2 — chacun livrant moins d'énergie que le précédent.
→ fiche #23 · fiche #268 - Réduction du fer (S4) : Tant que persiste du fer(III) (ferrihydrite, oxydes), les bactéries ferri-réductrices le réduisent en fer(II) : ce palier, plus rentable que la sulfato-réduction, capte en priorité l'hydrogène et l'acétate du milieu.
→ fiche #23 · fiche #28 - Sulfato-réduction (S2) : Le fer(III) épuisé, les bactéries sulfato-réductrices prennent le relais : en réduisant le sulfate, elles consomment l'hydrogène et l'acétate — les substrats mêmes dont dépendent les méthanogènes.
→ fiche #23 · fiche #120 - Méthanogenèse (S2) : Derniers servis car les moins rentables énergétiquement, les méthanogènes sont supplantés : tant que le fer(III) et le sulfate ne sont pas épuisés, la méthanogenèse est thermodynamiquement réprimée.
→ fiche #23 - zone de transition sulfate-méthane (S4) : Le méthane ne s'accumule que sous le front où le sulfate s'épuise — la zone de transition sulfate-méthane — où l'oxydation anaérobie du méthane en consume encore une part avant qu'il ne s'échappe.
→ fiche #152 - Atténuation du changement climatique (F1) : D'où un levier d'atténuation contre-intuitif : maintenir un pool de sulfate (gypse) ou de fer(III) dans les sols engorgés et les rizières recule le front méthanogène et réduit les émissions de CH4, gaz à effet de serre 28 à 80 fois plus puissant que le CO2.
→ fiche #120 · fiche #152
C43 : Animal → fertilité : du rumen au sol, la boucle microbienne de l'autonomie trophique
Argument
Et si l'animal d'élevage, loin d'épuiser le sol, contribuait aussi à le régénérer ? Tout part du rumen, fermenteur sans air digérant des fourrages que nous ne mangeons pas. Les déjections ne sont pas qu'un déchet : elles rendent au sol nutriments et inoculum microbien, sans copier le microbiote du rumen — ses microbes survivent mal à l'air libre. La terre ensemencée accueille ce relais prolongeant la dégradation de la matière aux racines, libérant les nutriments au rythme des plantes, une part du carbone se stabilisant. Le sol enrichi retient mieux l'eau et adoucit le climat. La boucle se refermerait sur la santé de l'animal, nourri d'un fourrage plus dense, issu d'un sol plus vivant : l'élevage cultiverait sa ressource — une proposition, boucle interprétative à étayer.
Illustration : Fig. C43-A · C43 — Animal → fertilité : du rumen au sol, la boucle microbienne de l'autonomie trophique…
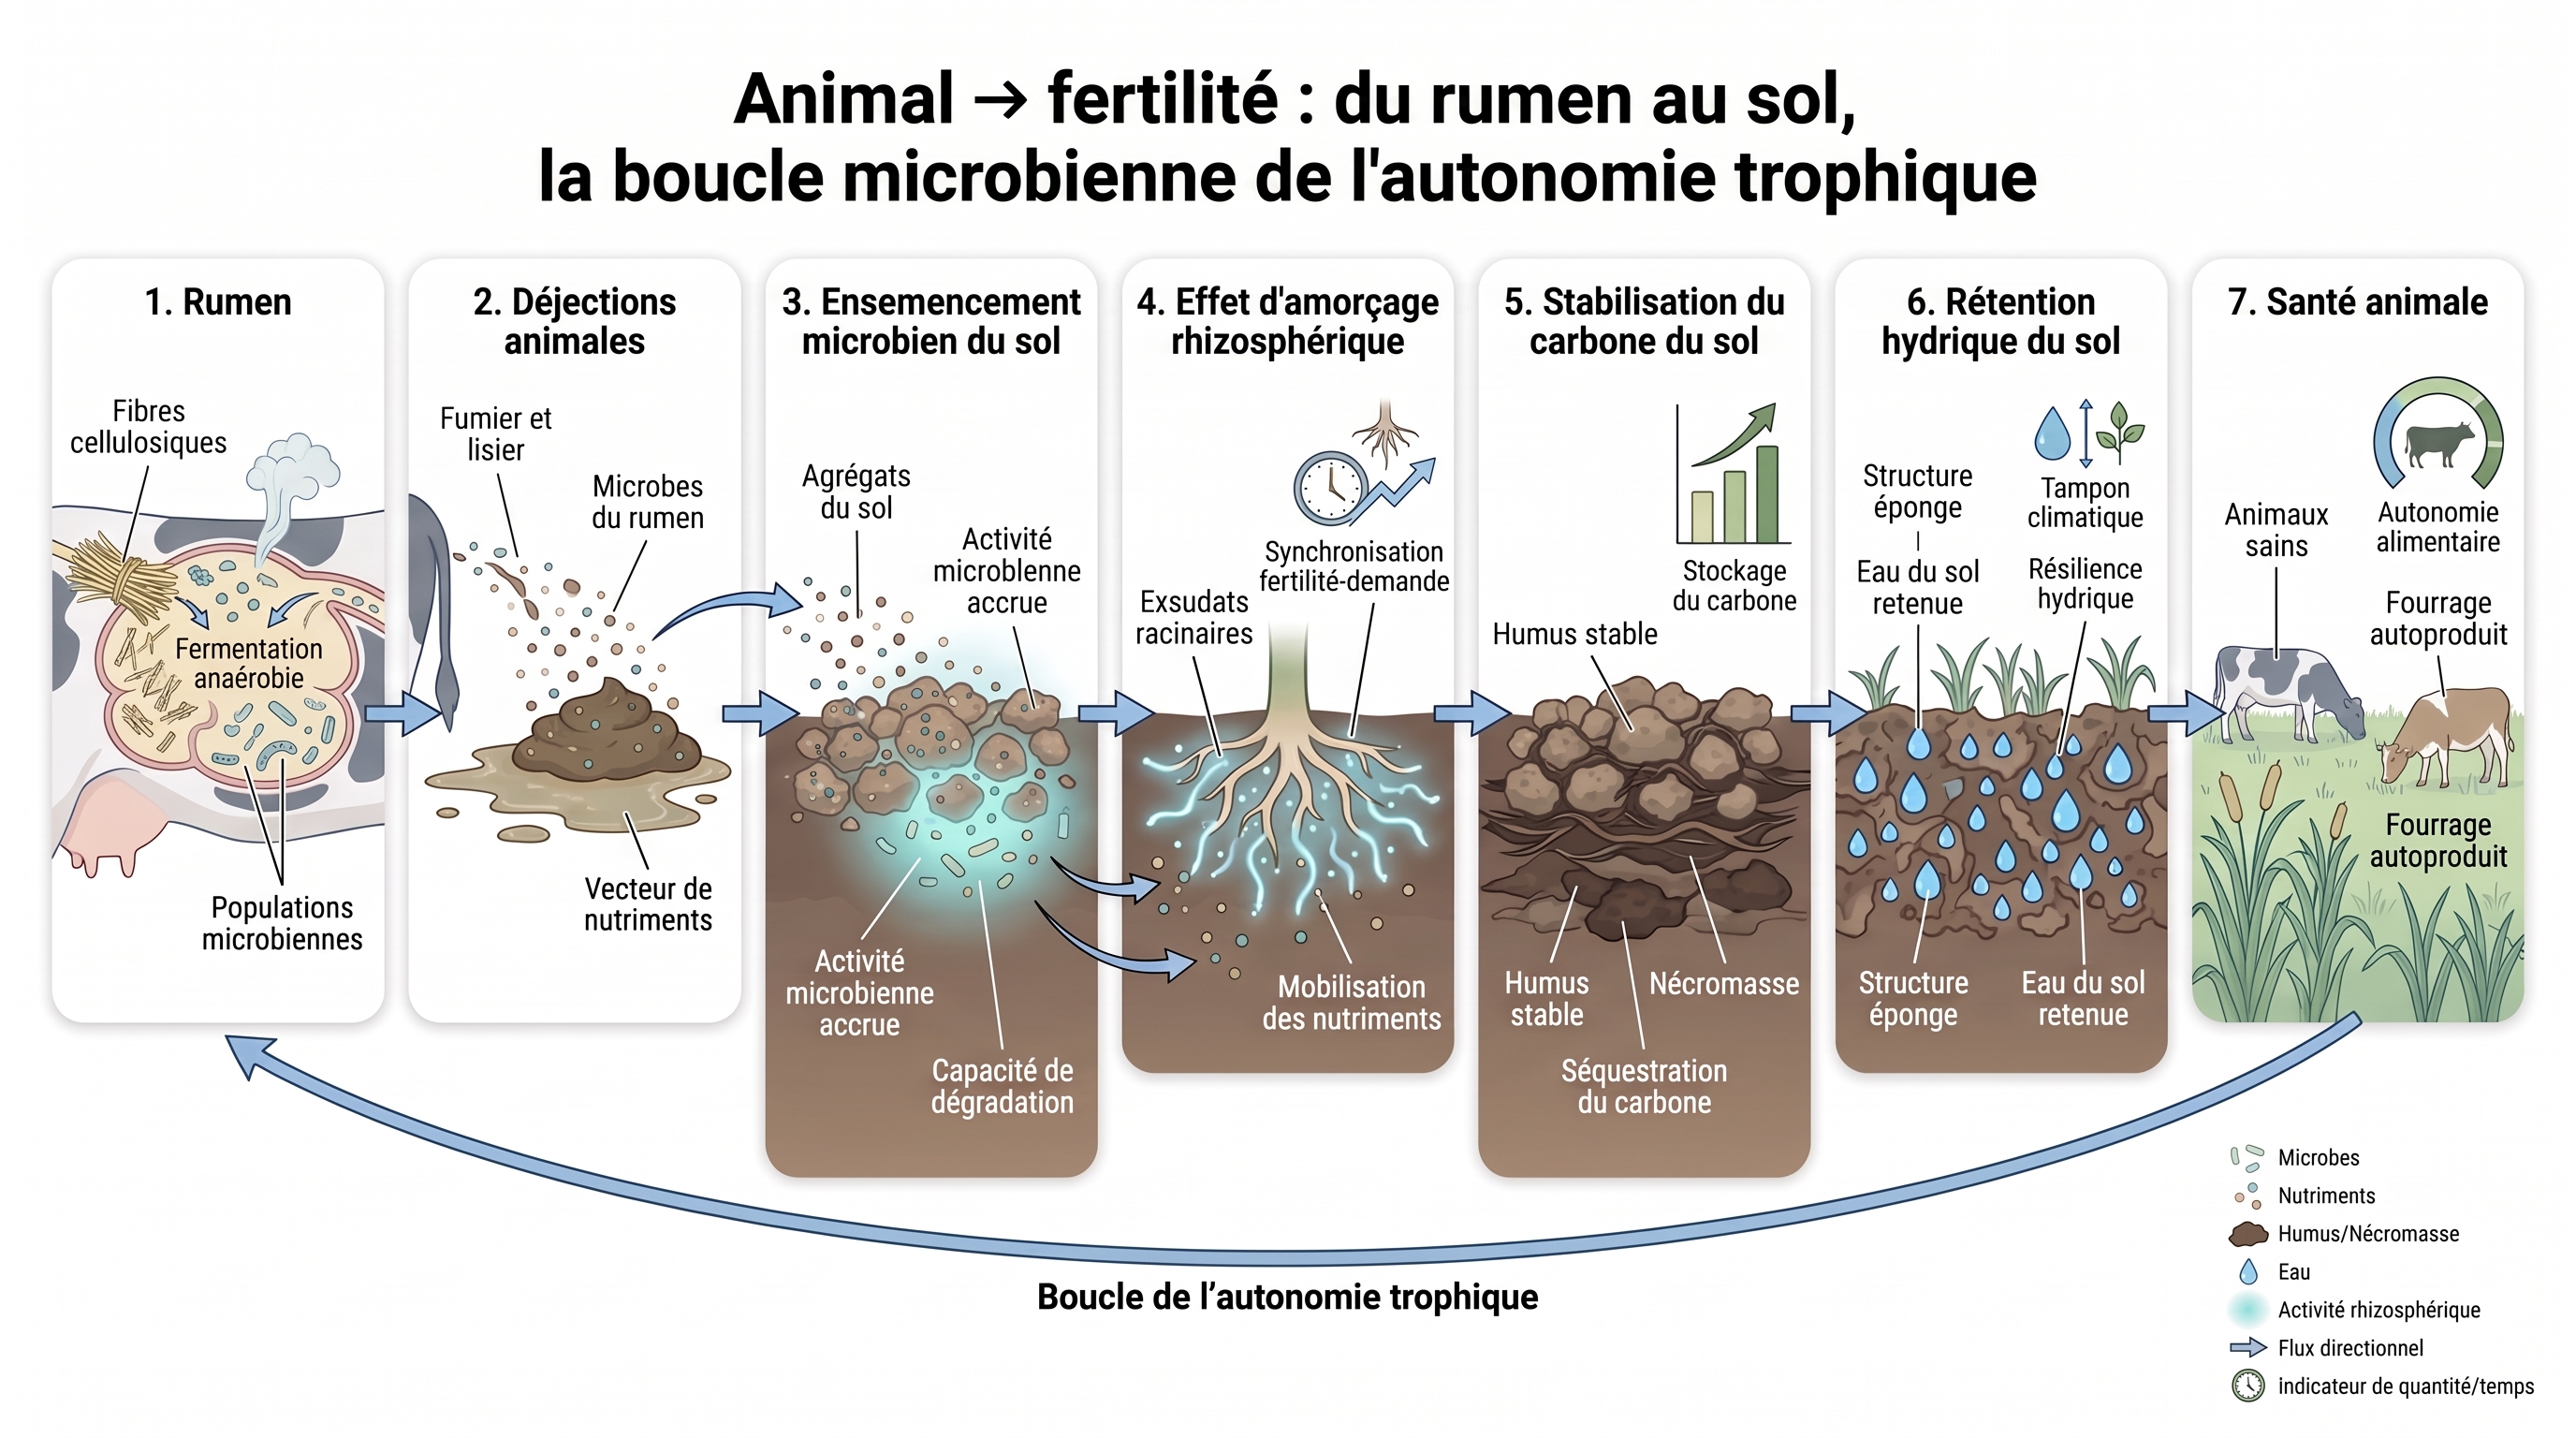
Science
- Rumen (H) : Départ : le rumen, bioréacteur anaérobie qui digère les fourrages cellulosiques impropres à l'homme (conversion d'une biomasse non valorisable)
→ fiche #274 - déjections animales (S) : Transformation : les déjections (fumier, lisier) exportent le microbiote ruminal et les nutriments vers le sol — l'animal comme vectoreur d'inoculum
→ fiche #274 - ensemencement microbien du sol (S) : Amplification : l'ensemencement microbien du sol par les déjections relaie la capacité de dégradation dans la rhizosphère (continuité rumen-sol)
→ fiche #274 - priming rhizosphérique (S) : Accélération : le priming rhizosphérique mobilise les nutriments des déjections au rythme de la demande racinaire (synchronie fertilité-culture)
→ fiche #82 (pivot) · fiche #274 - stabilisation du carbone du sol (S) : Stockage : la part résiduelle stabilisée rejoint le stock de carbone (humus/nécromasse) — la fertilité se capitalise
→ fiche #266 - rétention hydrique du sol (F) : Service : la rétention hydrique du sol accrue par la matière organique tamponne le climat local (boucle physique)
→ fiche #275 - santé animale (H) : Bouclage : la santé animale (diététique, autonomie fourragère) boucle la boucle trophique — l'élevage régénère sa ressource
→ fiche #274
C44 : Syntropie : de la succession dirigée à la construction du sol : une cascade de régénération
Argument
L'agriculture syntropique — imiter la succession des forêts — n'est pas qu'un agencement de plantations : c'est un pari selon lequel chaque geste d'entretien reconstruit le sol. Elle part de la succession écologique, l'enchaînement naturel qui repeuple un milieu nu, des pionnières aux matures. La taille régulière sert de signal : en perturbant la plante, elle relance la croissance et l'exsudation, ces sucres libérés par les racines. Ce carbone frais nourrit les microbes et déclenche le priming, l'effet d'amorçage qui libère les nutriments des résidus. Racines, filaments de champignons et colles microbiennes assemblent les agrégats ; la matière morte liée aux minéraux devient un puits de carbone. La cascade vers la résilience climatique, elle, reste à démontrer.
Illustration : Fig. C44-A · C44 — Syntropie : de la succession dirigée à la construction du sol — une cascade de régénération…
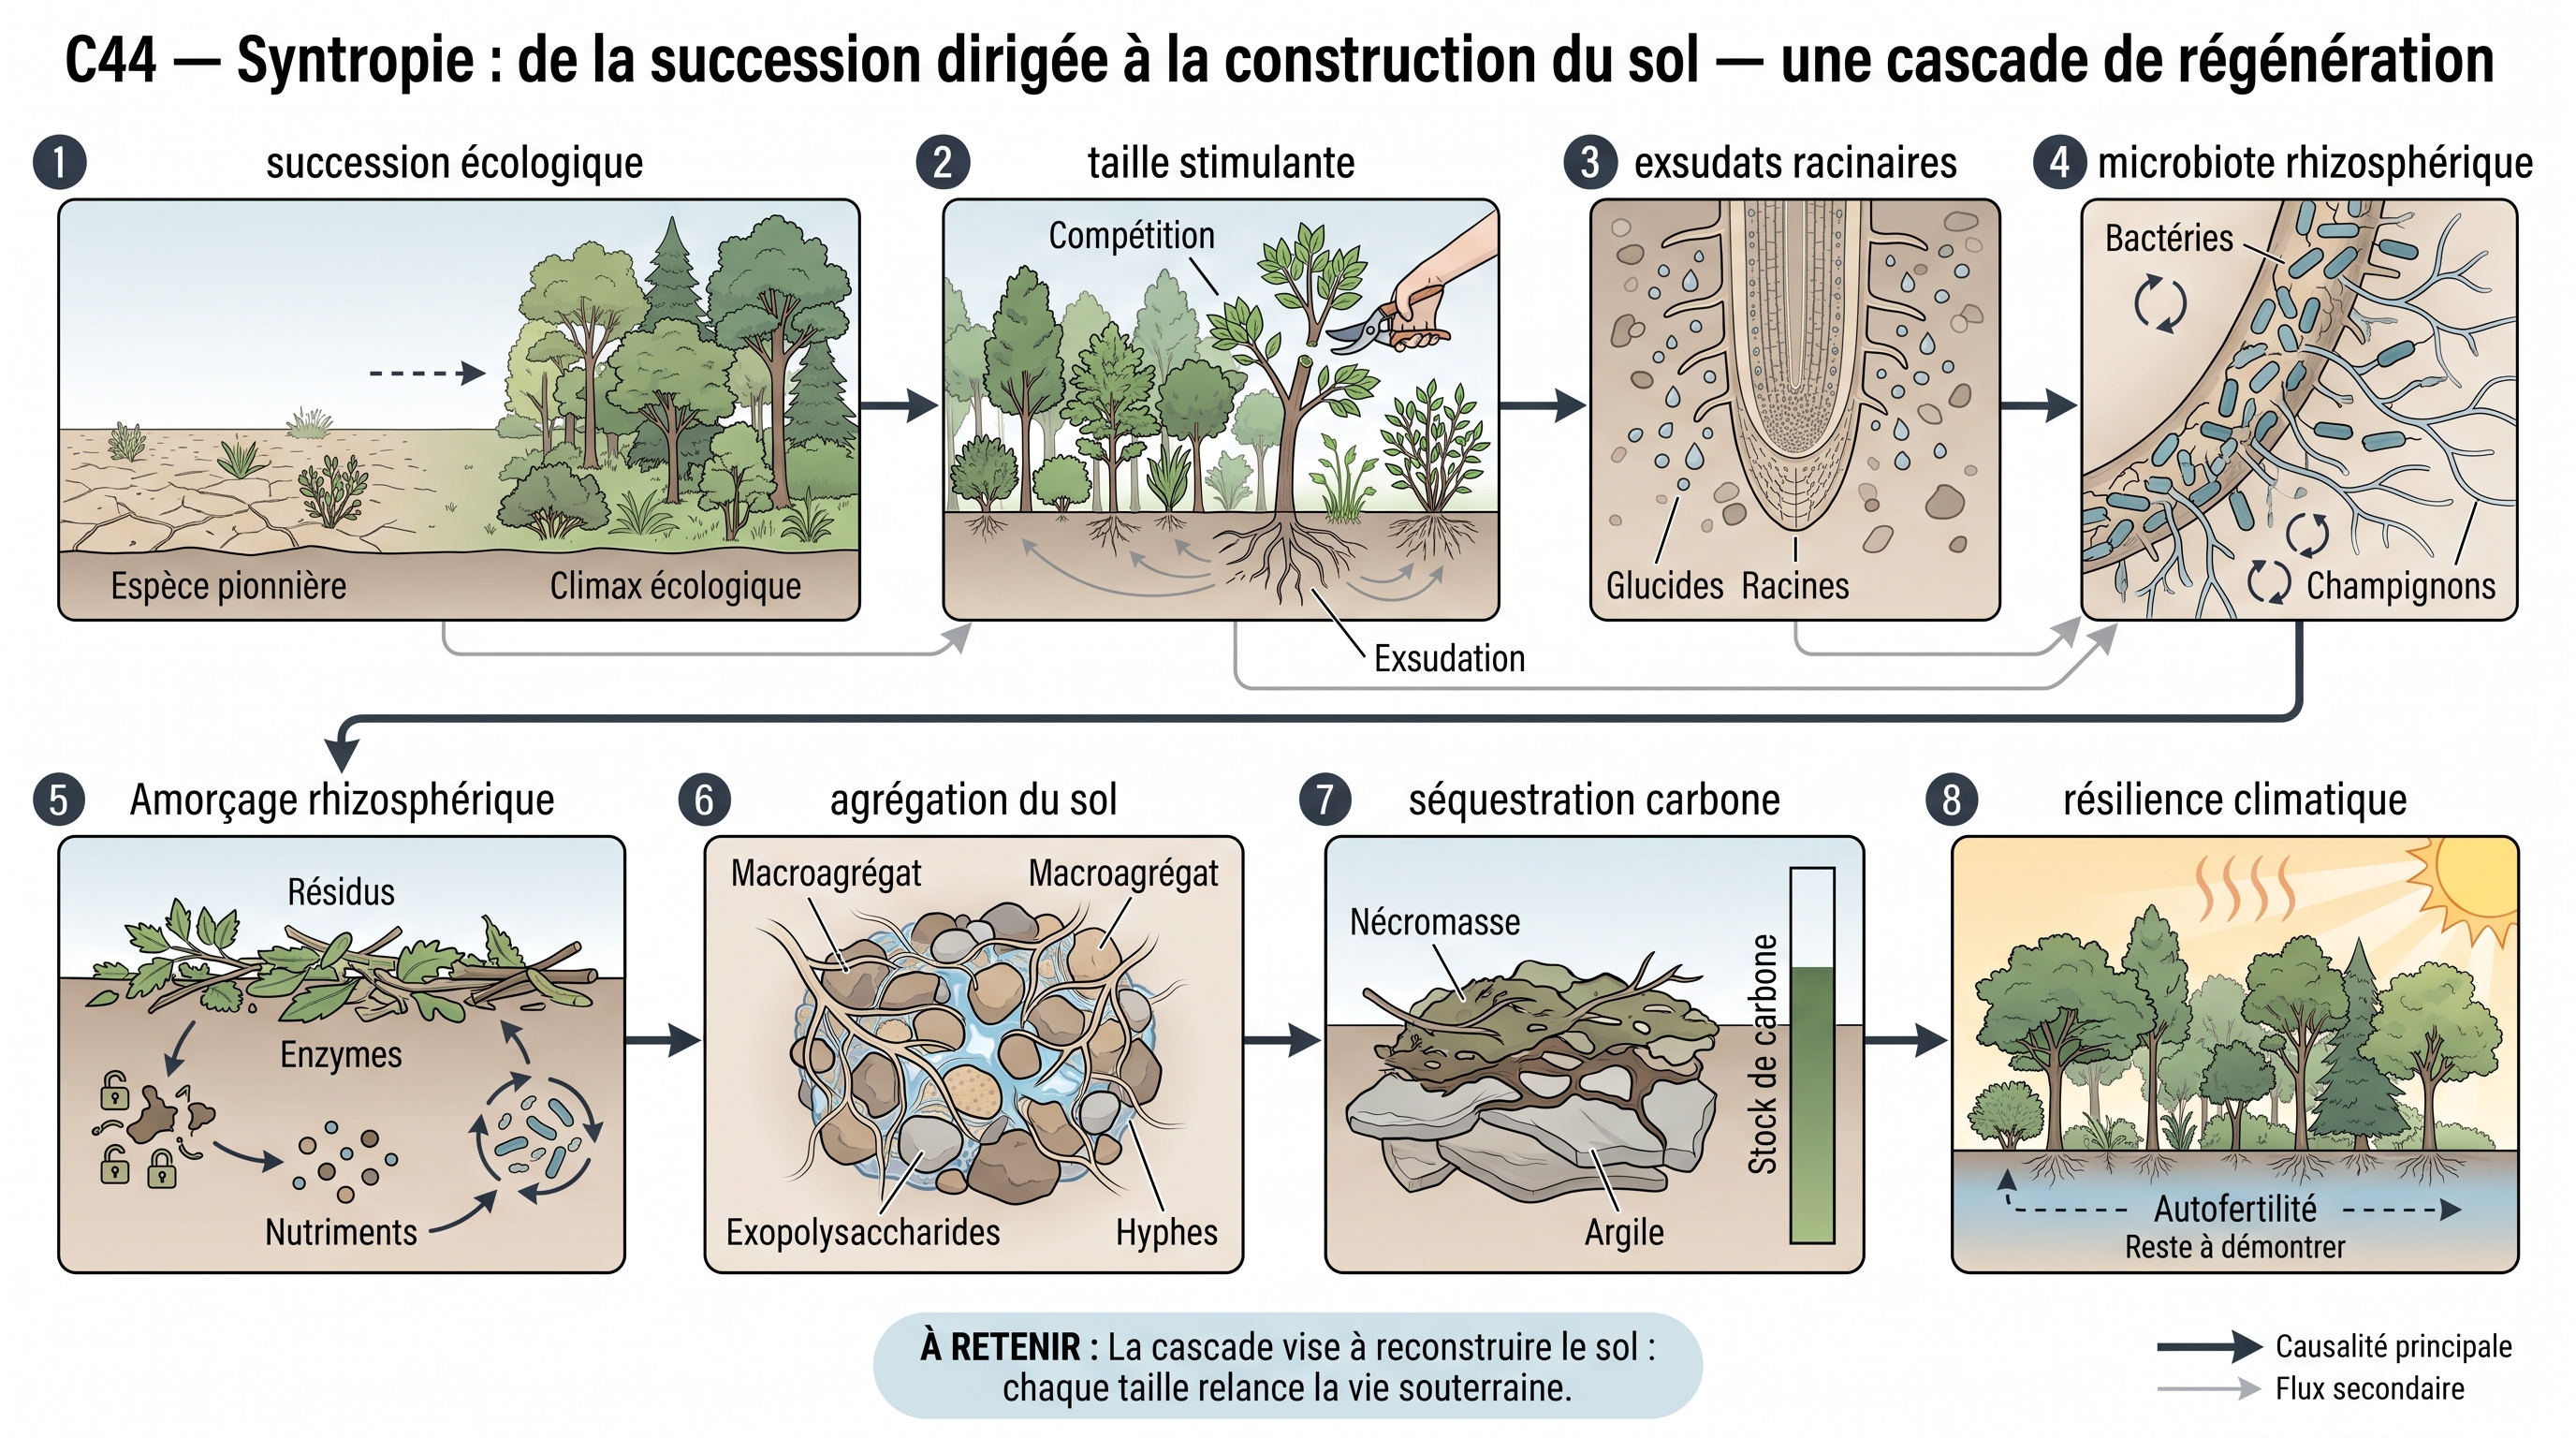
Science
- succession écologique dirigée (P) : Départ : la succession écologique dirigée impose une trajectoire de recrutement (espèces pionnières → climax) comme outil de gestion
→ fiche #265 - taille stimulante (P) : Signal : la taille stimulante (plantation dense, Götsch) déclenche la compétition et l'exsudation — stress directing la croissance
→ fiche #265 - exsudats racinaires (V) : Amplification : les exsudats racinaires nourrissent le microbiome rhizosphérique et accélèrent les cycles (demande biologique gouverne)
→ fiche #265 - priming rhizosphérique (S) : Accélération : le priming rhizosphérique déverrouille les nutriments des résidus de taille — la décomposition s'auto-entretient
→ fiche #82 (pivot) · fiche #265 - agrégation du sol (S) : Structure : l'agrégation du sol progresse (racines, hyphes, EPS) — l'architecture se reconstruit de l'intérieur
→ fiche #207 (pivot) · fiche #265 - séquestration du carbone dans le sol (F) : Stockage : la séquestration du carbone s'installe (nécromasse → MAOM) — le sol devient puits
→ fiche #265 - résilience climatique (F) : Aboutissement : la résilience climatique (autofertilité) couronne la cascade de régénération
→ fiche #265
C45 : Nématodes libres : des guildes trophiques à la suppressivité : un bio-indicateur causal
Argument
Des vers invisibles à l'œil nu racontent mieux que bien des analyses si un sol se porte bien — et pourquoi il résiste aux maladies. Les nématodes libres, ces petits vers non parasites, se répartissent en guildes selon ce qu'ils mangent : bactéries, champignons ou autres vers. Leur prédation, relayée par le réseau trophique, transforme les microbes dévorés en nutriments que la plante absorbe. L'indice de maturité de Bongers traduit cette composition : les colonisateurs opportunistes pullulent dans les sols perturbés, les exigeantes dans les sols mûrs. Un sol riche en prédateurs serait mieux armé contre les pathogènes — la maturité mesurée par l'indice ne garantit pas à elle seule cette protection, mais en signale le terrain favorable.
Illustration : Fig. C45-A · C45 — Nématodes libres : des guildes trophiques à la suppressivité…
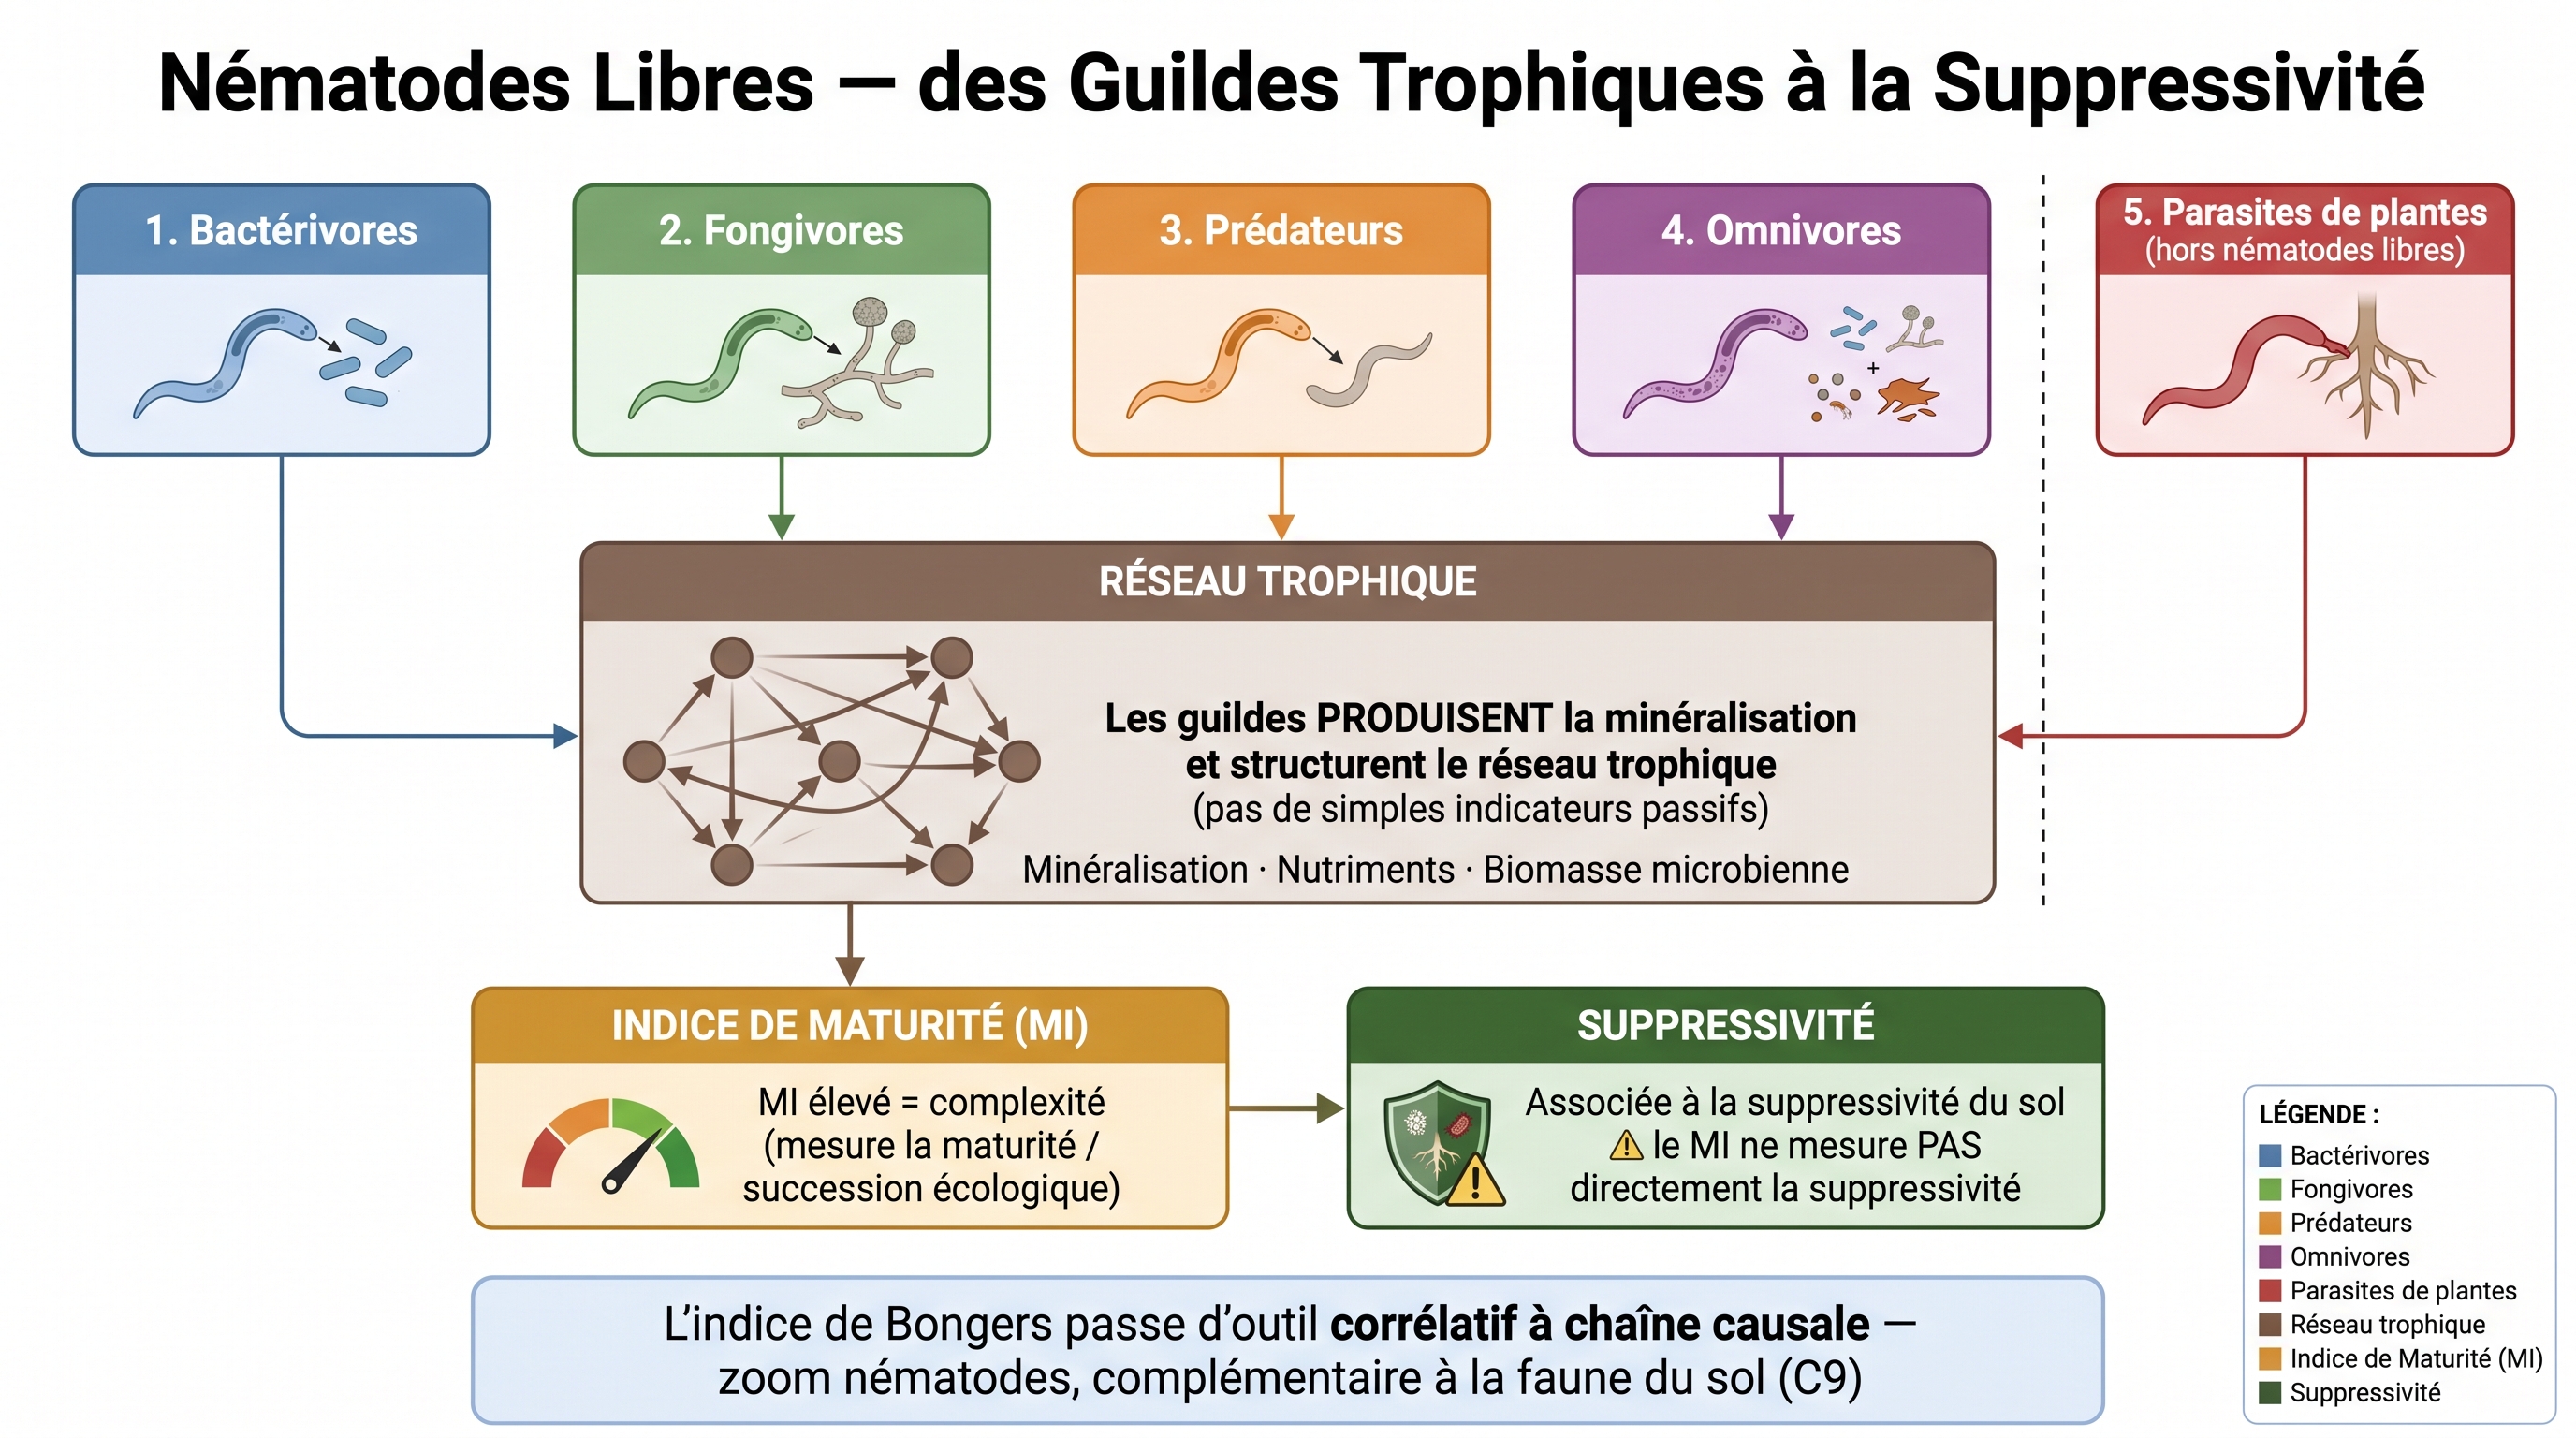
Science
- nématodes libres (S) : Départ : les nématodes libres (bactérivores, fongivores, prédateurs/omnivores) constituent l'essentiel de la méiofaune du sol
→ fiche #267 - guildes trophiques (S) : Diversification : leurs guildes trophiques structurent la voie de l'énergie bactérienne vs fongique (régime du sol lisible)
→ fiche #267 - réseau trophique du sol (S) : Amplification : le réseau trophique du sol transforme cette prédation en mineralisation contrôlée (boucle microbienne)
→ fiche #267 - indice de maturité de Bongers (V) : Diagnostic : l'indice de maturité de Bongers (cp 1-5) traduit la composition des guildes en signal de perturbation
→ fiche #267 - suppressivité (S) : Aboutissement : la suppressivité — un réseau de prédateurs mature limite les pathogènes (nématodes phytoparasites inclus)
→ fiche #267
C46 : Bioprécipitation : la boucle atmosphérique du vivant : hypothèse de synthèse
Argument
Et si les microbes des feuilles et du sol participaient à faire pleuvoir ? C'est l'hypothèse de la bioprécipitation : séduisante, mais jamais démontrée de bout en bout. Le couvert végétal renvoie vers l'atmosphère, par évapotranspiration (vapeur des plantes et du sol), une large part des pluies continentales. Des bactéries comme Pseudomonas syringae déclenchent la glace dès −2 °C, là où l'eau pure attend −38 °C, et survivent dans la haute troposphère. L'idée complète : ces bactéries, emportées en bioaérosols, ensemenceraient les nuages et retomberaient avec la pluie. Mais le chaînon reliant sol couvert ou nu à la richesse de l'air en microbes reste une extension jamais mesurée au champ. L'hypothèse est belle ; la preuve attend encore.
Illustration : Fig. C46-A · C46 — Bioprécipitation : la boucle atmosphérique du vivant — hypothèse de synthèse…
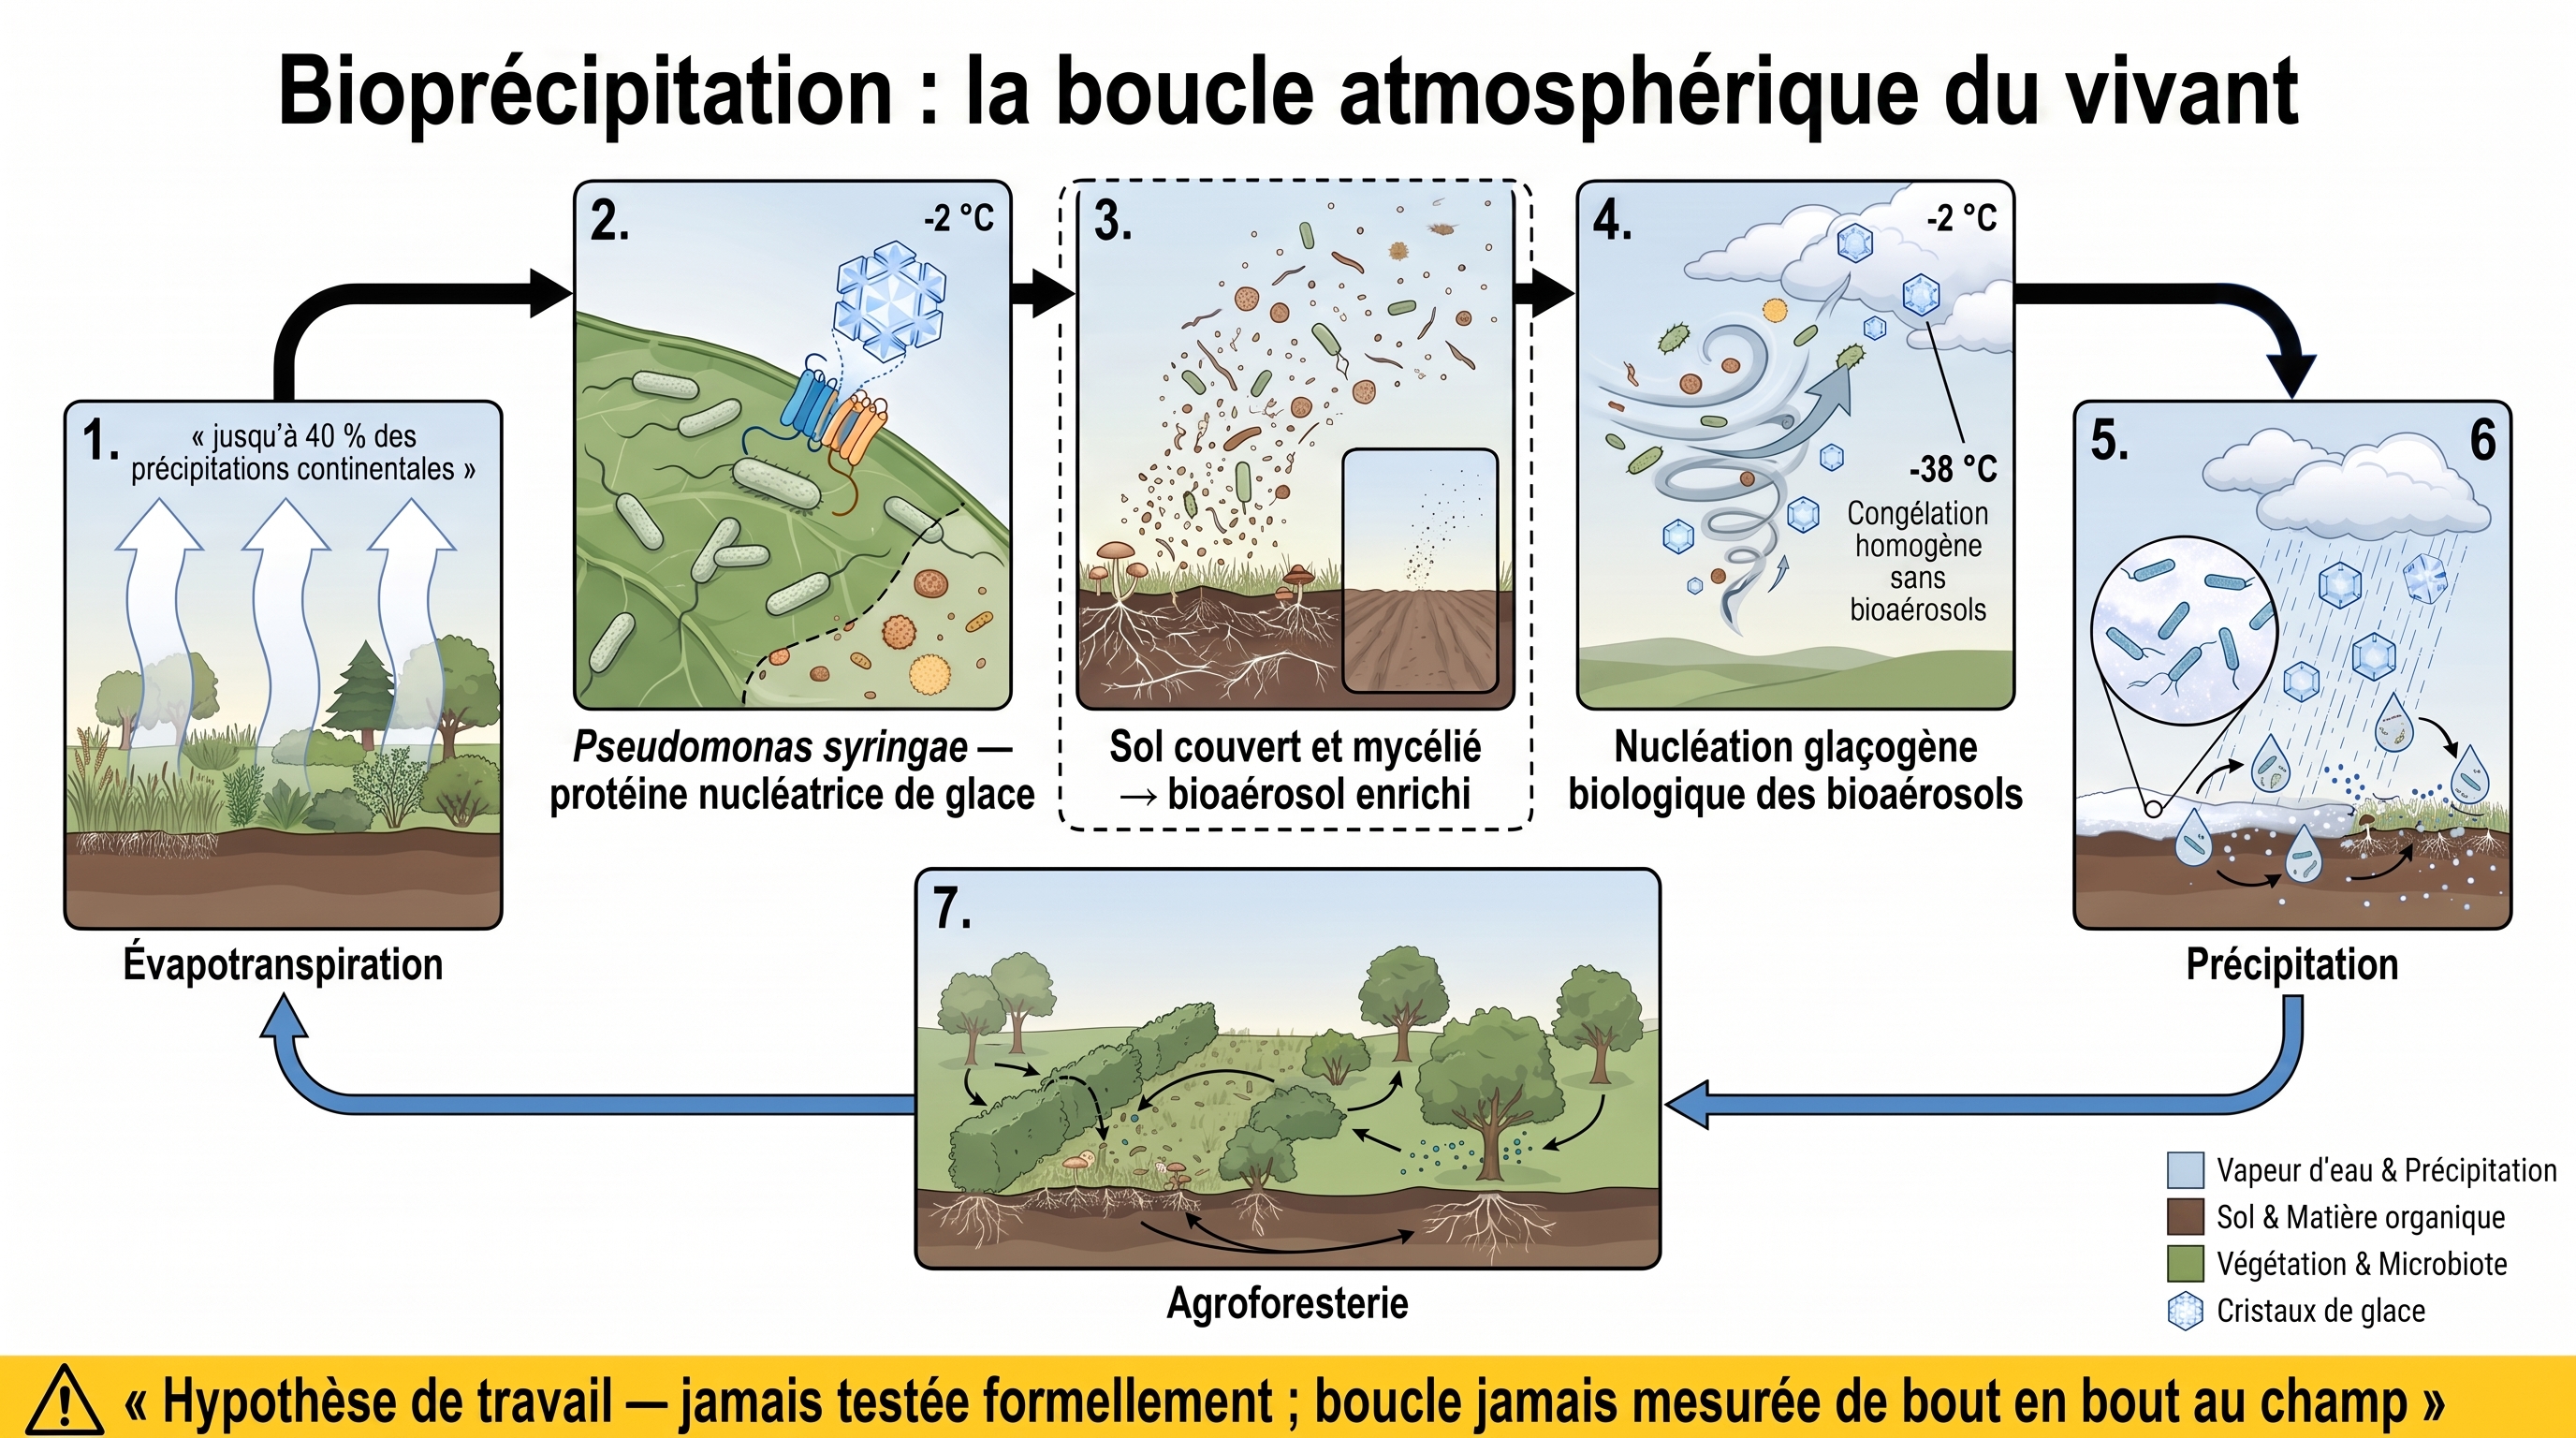
Science
- évapotranspiration (P2) : Point de départ : le couvert vivant recycle l'humidité du sol vers l'atmosphère — jusqu'à 40 % des précipitations continentales (van der Ent et al., 2010), figures extrêmes des rivières volantes d'Amazonie (Nobre et al., 2016).
→ fiche #282 - Pseudomonas syringae (protéine INA — nucléation glaçogène) (V2) : Les surfaces végétales et le sol hébergent des bactéries dont les protéines membranaires déclenchent la cristallisation de la glace dès -2 °C (Christner et al., 2008) — spores fongiques, pollens et débris cellulaires aussi.
→ fiche #282 - sol couvert et mycélié → bioaérosol enrichi (S0) : Piste ouverte : un sol couvert et vivant émettrait un bioaérosol plus abondant et diversifié qu'un sol nu labouré — l'état du sol devient variable du régime pluviométrique local.
→ fiche #282 - Bioaérosols (H3) : Vent et turbulence emportent cellules, spores et débris en bioaérosols viables — microbiome viable retrouvé jusque dans la haute troposphère (DeLeon-Rodriguez et al., 2013).
→ fiche #282 - Nucléation glaçogène biologique (H3) : En altitude, ces bioaérosols servent de noyaux de glace dès -2 °C, là où la glace homogène exige -38 °C : le déclenchement des précipitations devient possible dans les nuages tempérés.
→ fiche #282 - précipitation (S0) : Les cristaux ensemencés grossissent et tombent : pluie et neige — preuve terrain, des bactéries glaçogènes vivantes et abondantes dans la neige de plusieurs continents (Christner et al., 2008).
→ fiche #282 - Recyclage des précipitations (S0) : Les retombées réensemencent potentiellement les surfaces dont les bactéries sont parties (inoculum microbien entre parcelles) : la boucle de bioprécipitation de Sands se referme — conceptuellement, car jamais mesurée de bout en bout au champ.
→ fiche #282 - agroforesterie (P4) : Aboutissement pratique : la végétation est une infrastructure hydrologique — couvrir les sols, planter des haies, agroforester entretient le moteur qui recycle l'humidité vers les terres.
→ fiche #282
C47 : Stress abiotique → réponse microbienne : la tolérance de l'holobionte
Argument
Sous canicule et sécheresse, la plante n'est pas seule : les microbes de ses racines répondent avec elle, et c'est ce duo — plante et microbiome, l'holobionte — qui tient le coup. Les deux stress frappent presque toujours ensemble et se renforcent. La plante stressée modifie ses exsudats, ces sucres libérés par les racines, lançant un appel de détresse qui recrute des bactéries protectrices. Celles-ci abaissent l'hormone de stress, stabilisent leurs membranes et sécrètent des gommes retenant l'eau au contact de la racine. Le tout forme un manchon vivant, la rhizogaine, qui maintient le lien hydrique quand le sol sèche. La tolérance qui en résulte dépasse la somme des partenaires et se renforce quand les stress se combinent — jusqu'à un seuil d'irréversibilité.
Illustration : Fig. C47-A · C47 — Stress abiotique → réponse microbienne : la tolérance de l'holobionte…
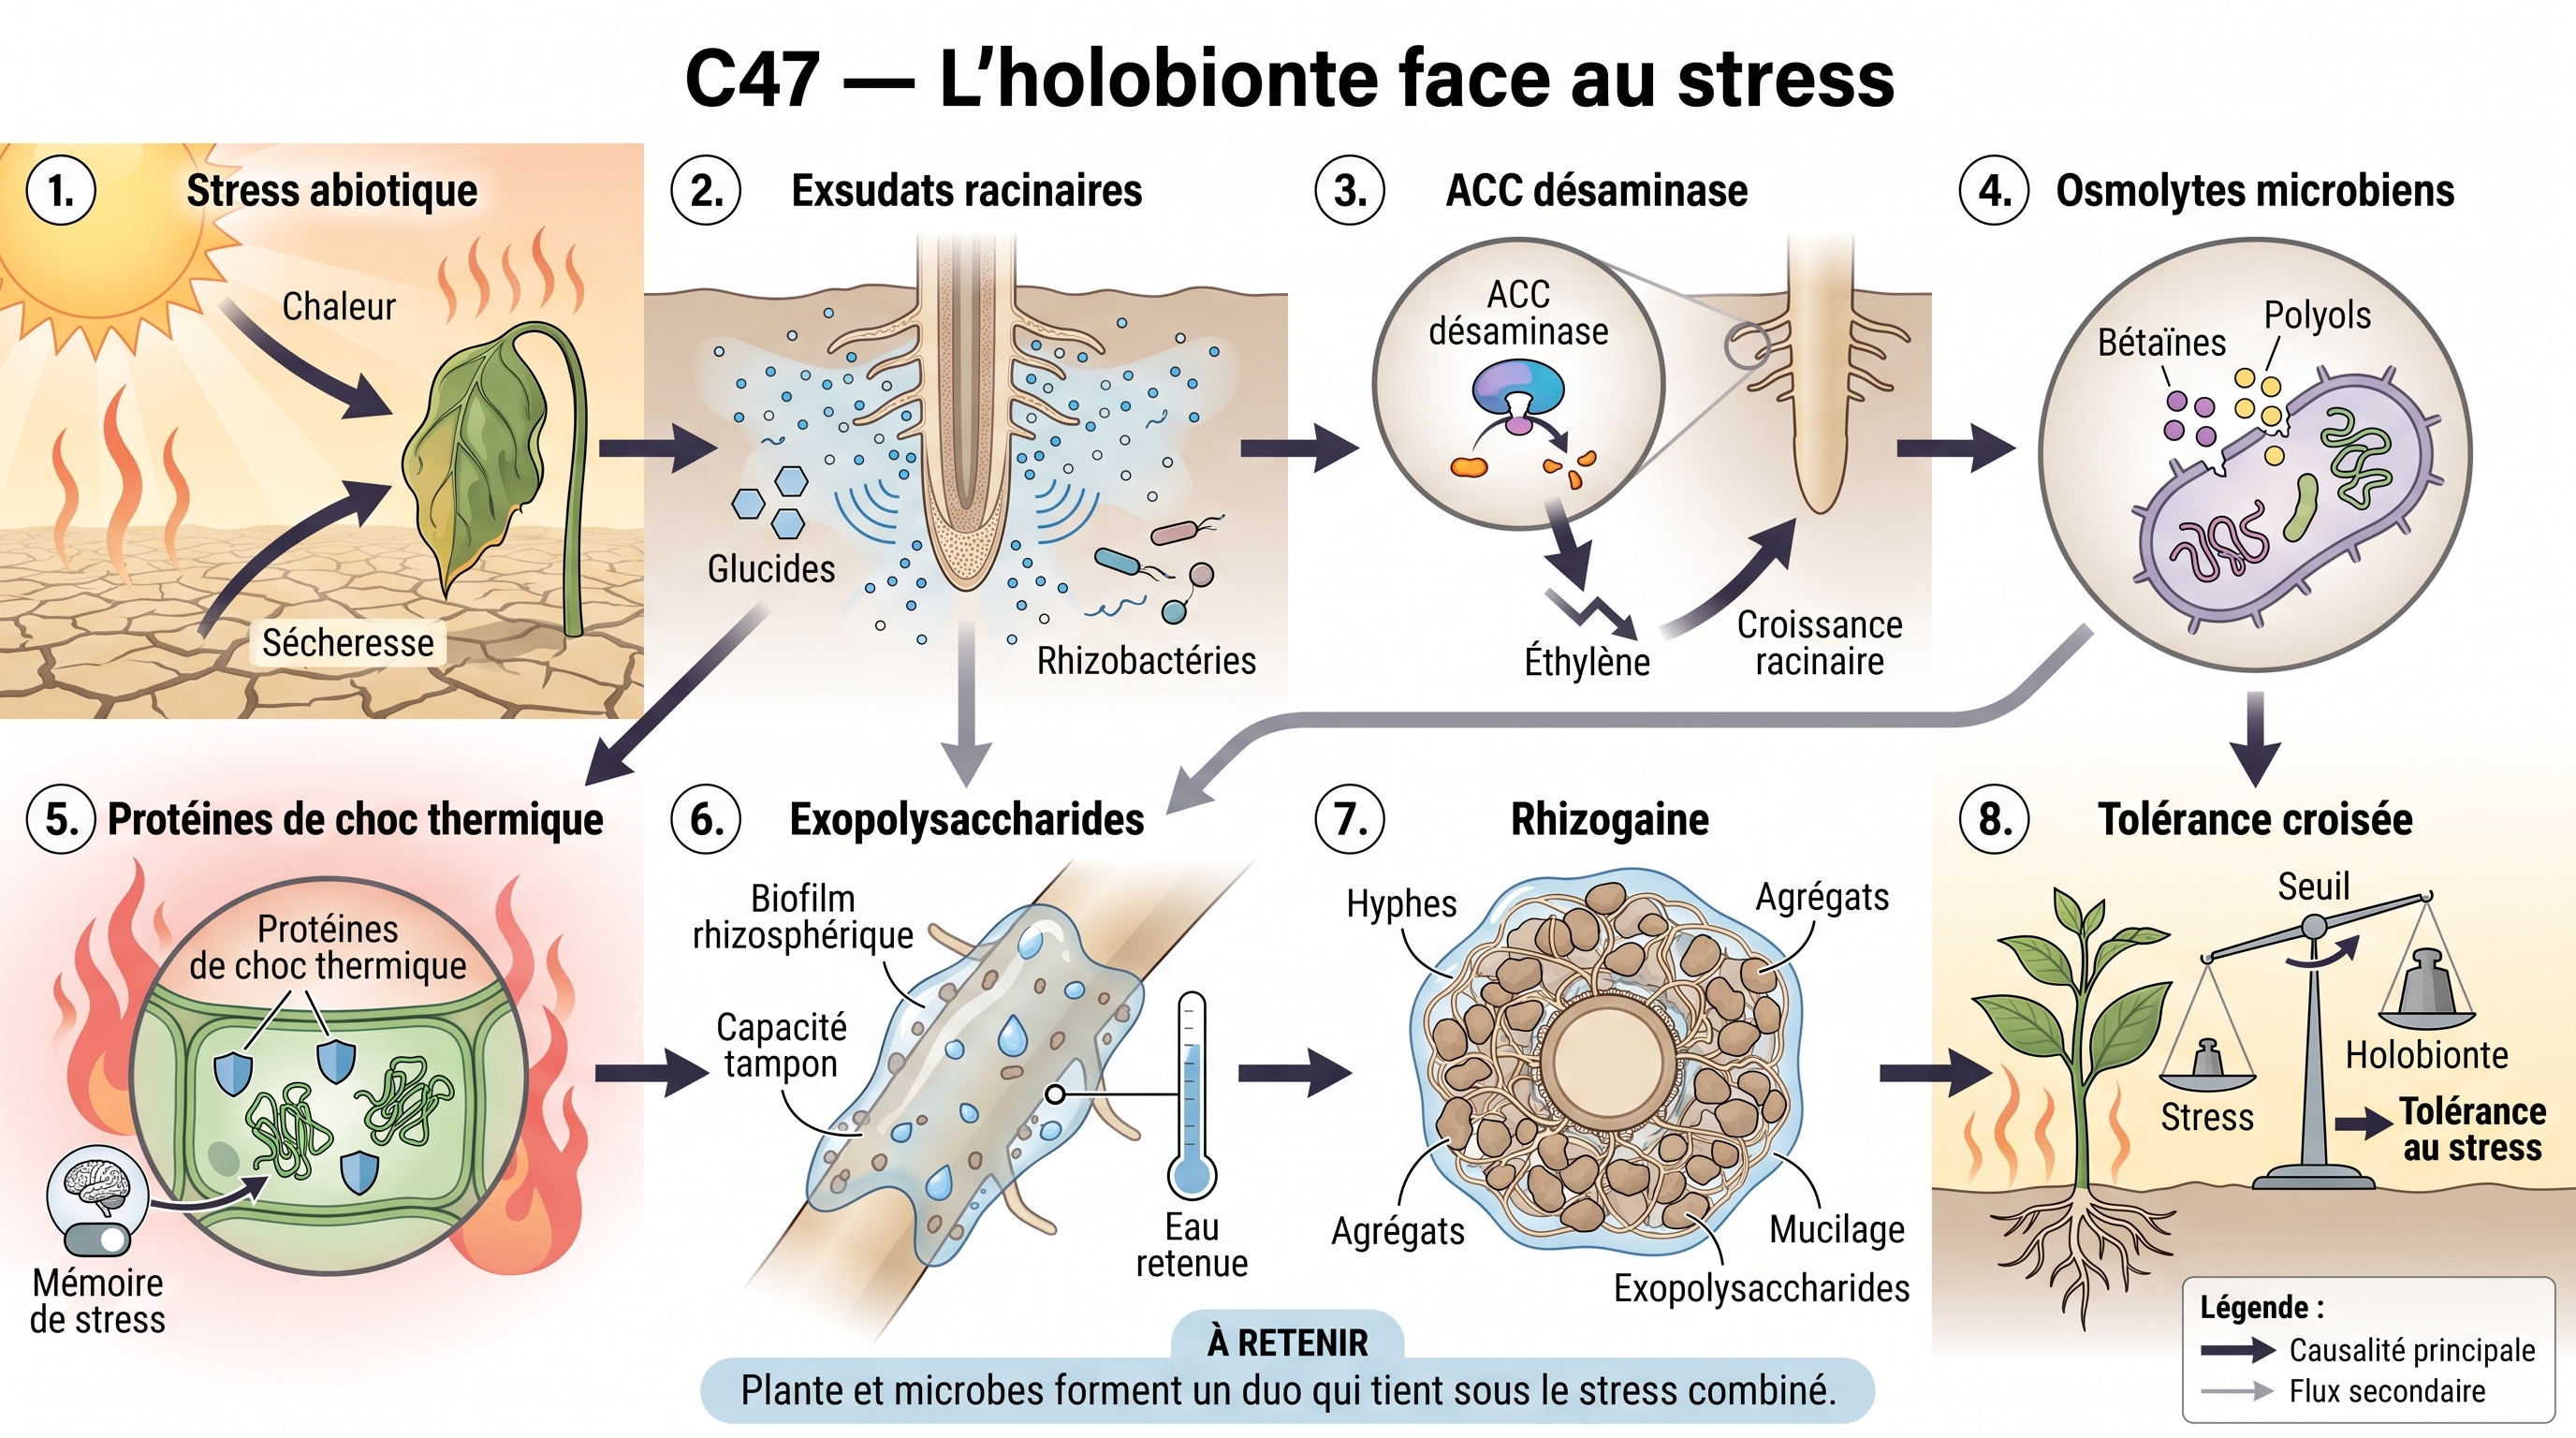
Science
- combinaison de stress multifactorielle (S) : Point de départ : chaleur et sécheresse co-surviennent presque toujours et leur effet combiné est synergique, non additif — rupture de la photosynthèse au-delà de seuils, fermeture stomatique qui aggrave le stress thermique (cadre MFSC, littérature 2024-2026).
→ fiche #21 · fiche #299 - exsudats racinaires (V2) : La plante stressée modifie son profil d'exsudation : signal cry-for-help qui recrute des microbes protecteurs — le microbiome comme système immunitaire étendu (coumarines sous carence Fe, apigénine du riz, linalool du maïs).
→ fiche #210 - ACC désaminase (V2) : Les rhizobactéries (PGPR) recrutées clivent l'ACC, précurseur de l'éthylène : le pic d'éthylène de stress s'abaisse et l'enracinement est préservé sous canicule.
→ fiche #293 · fiche #299 - osmolytes microbiens (S2) : Bétaïnes et polyols, accumulés sans perturber les protéines, stabilisent membranes et enzymes et détoxifient les ROS — cœur de l'osmotolérance, qui recoupe la thermotolérance.
→ fiche #293 (pivot) - Protéines de choc thermique (S) : Les HSP, chaperons moléculaires, préviennent l'agrégation des protéines dénaturées ; chez la plante, le facteur HSFA2 pilote induction et mémoire thermique.
→ fiche #3 (pivot) - Exopolysaccharides (S0) : La matrice EPS des biofilms, hygroscopique, retient l'eau à l'interface racine-sol, tamponne dessiccation et pics thermiques et cimente les agrégats.
→ fiche #166 (pivot) · fiche #293 - rhizogaine (V2) : Les mécanismes se structurent en tissu composite : la rhizosheath (mucilage + hyphes + agrégats fins) maintient le contact hydrique racine-sol quand le sol sèche et abrite un microbiome modulant les signaux ABA — trait holobiontique, objectif de sélection variétale.
→ fiche #293 (pivot) - tolérance croisée (V) : Aboutissement : la tolérance résultante est une propriété émergente de l'holobionte — elle dépasse la somme des partenaires et se renforce quand les stress se combinent (mémoire de stress, antifragilité au réchauffement modéré, seuil au-delà duquel les dommages deviennent irréversibles).
→ fiche #113 · fiche #299
C48 : Azolla : de la rizière à l'amendement azoté du sol
Argument
Une petite fougère flottante transforme une mare ou une rizière en usine d'azote gratuite — et sa récolte peut nourrir les cultures sèches sans un seul sac d'engrais. La fougère Azolla, qui double de volume en quelques jours sous climat chaud, héberge dans ses feuilles une cyanobactérie, Anabaena, capable de fixer l'azote de l'air en ammonium assimilable, de quelques dizaines à une centaine de kilos par hectare et par an. Récoltée puis épandue, sa biomasse agit comme un engrais vert : elle libère cet azote au rythme des cultures. En incubation, près des trois quarts de cet azote deviennent disponibles pour la plante. Et ses frondes, qui se décomposent vite, nourrissent aussi la faune et les microbes du sol, au-delà du simple apport d'azote.
Illustration : Fig. C48-A · C48 — Azolla : de la rizière à l'amendement azoté du sol…
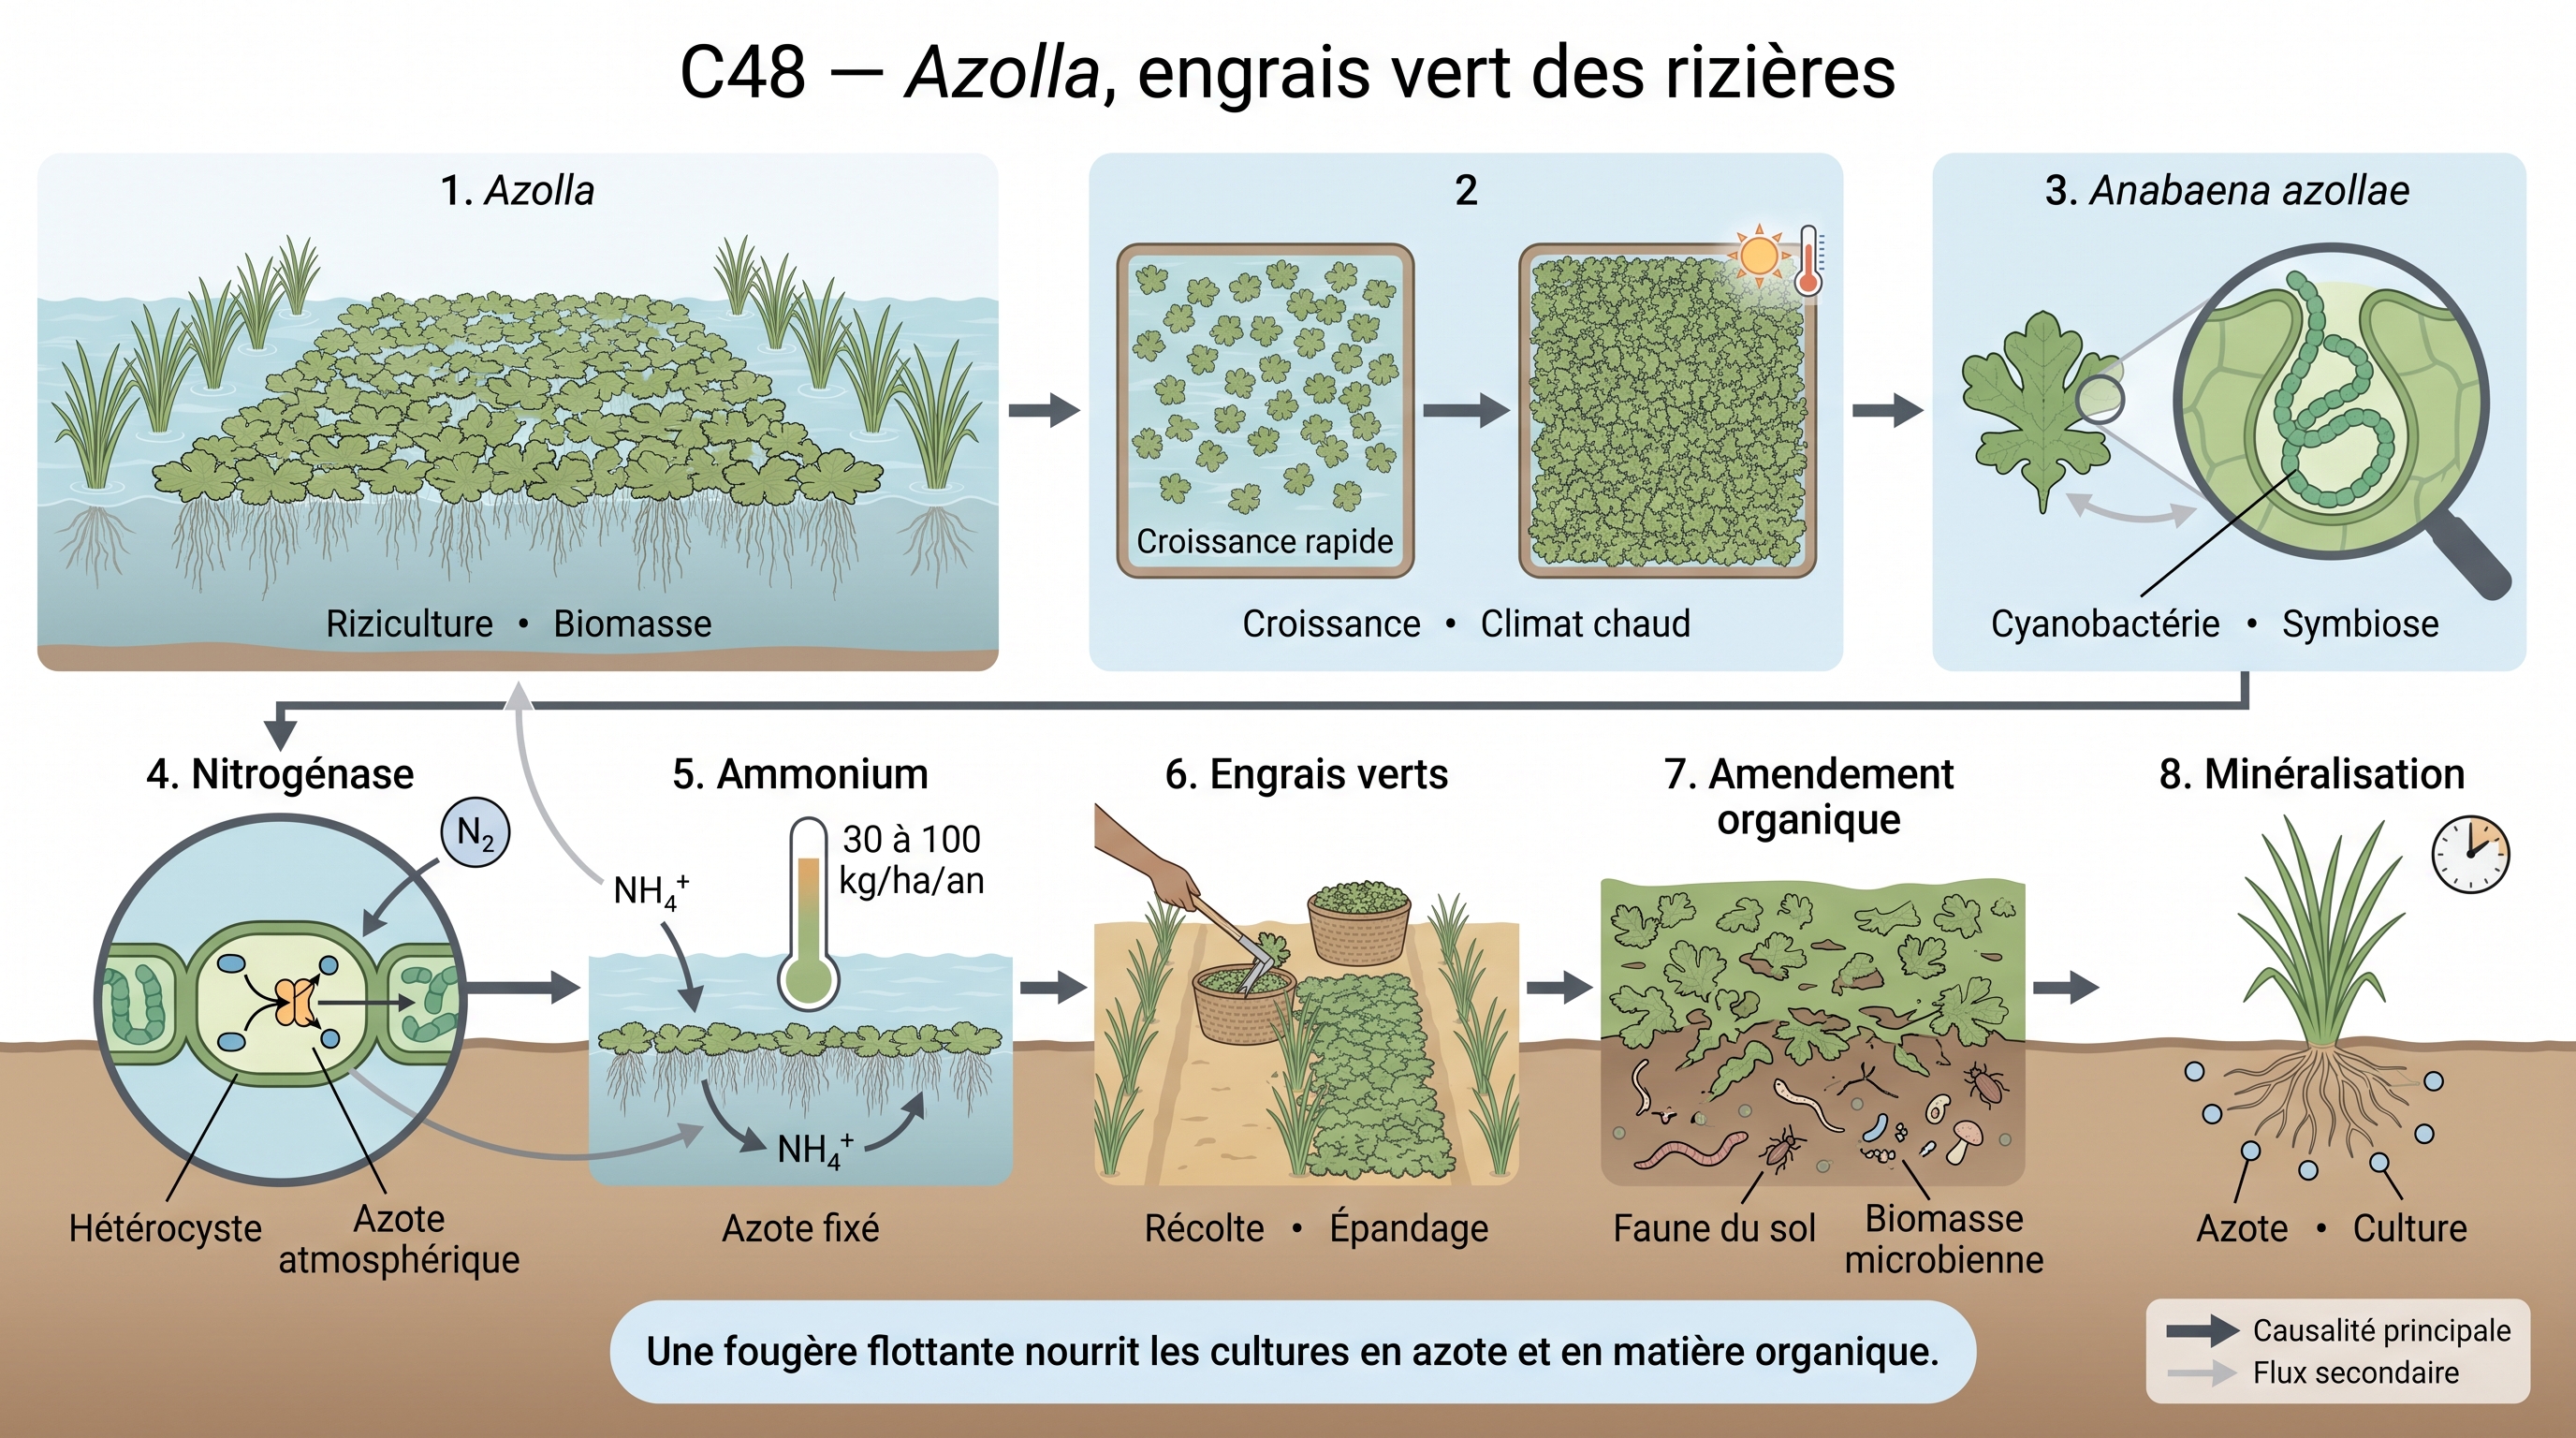
Science
- azolla (F1) : La fougère aquatique Azolla flotte à la surface des rizières et des mares d'Asie : sa croissance exponentielle en fait une biomasse abondante, doublable en quelques jours sous climat chaud.
→ fiche #314 - Anabaena azollae (V2) : Dans ses cavités foliaires dorsales vit la cyanobactérie diazotrophe Anabaena azollae : la plante fournit carbonates et protection, la bactérie fournit l'azote fixé — symbiose obligatoire maintenue depuis des dizaines de millions d'années.
→ fiche #295 · fiche #314 - Fixation de l’azote (V2) : La nitrogénase, protégée de l'oxygène dans les hétérocystes spécialisés, réduit l'azote atmosphérique en ammonium assimilable — de l'ordre de 30 à 100 kg N/ha/an selon les conditions de culture.
→ fiche #10 · fiche #18 (pivot) · fiche #118 - engrais verts (P2) : Récoltée puis épandue sur les cultures ou laissée en décomposition dans l'eau, la biomasse d'Azolla fonctionne comme engrais vert : l'azote biologique se substitue à l'urée de synthèse, usage séculaire des rizicultures chinoises et vietnamiennes.
→ fiche #69 · fiche #314 - amendement organique (S) : La fronde, au ratio C/N bas, se décompose rapidement : l'apport agit aussi comme amendement organique, nourrissant faune et biomasse microbienne du sol au-delà du seul apport azoté.
→ fiche #256 · fiche #314 (pivot) - minéralisation de la matière organique (S) : La minéralisation progressive de cette nécromasse libère l'azote au rythme de la demande culturale — une fertilité mémoisée, pilotée par le vivant plutôt que par le sac d'engrais.
→ fiche #234 · fiche #295
C49 : Relais pédogenétiques : de la roche nue au sol profond
Argument
Un sol profond ne se fabrique pas en une décennie : c'est l'œuvre d'un relais entre la roche et le vivant, qu'on peut préserver mais pas précipiter. Tout commence sans la vie : le gel fragmente la roche nue, l'eau et le gaz carbonique dissous attaquent les minéraux et libèrent les nutriments. Puis la vie prend le relais. Les croûtes biologiques — cyanobactéries, lichens, mousses — s'installent les premières, fixent le carbone et l'azote de l'air. Le vivant devient alors un facteur de formation du sol à part entière. Les argiles s'associent à l'humus naissant, les agrégats se construisent et offrent un habitat à la faune comme aux champignons. La rhizosphère, ce volume de sol lié aux racines, fait du sol profond un organe.
Illustration : Fig. C49-A · C49 — Relais pédogenétiques : de la roche nue au sol profond…
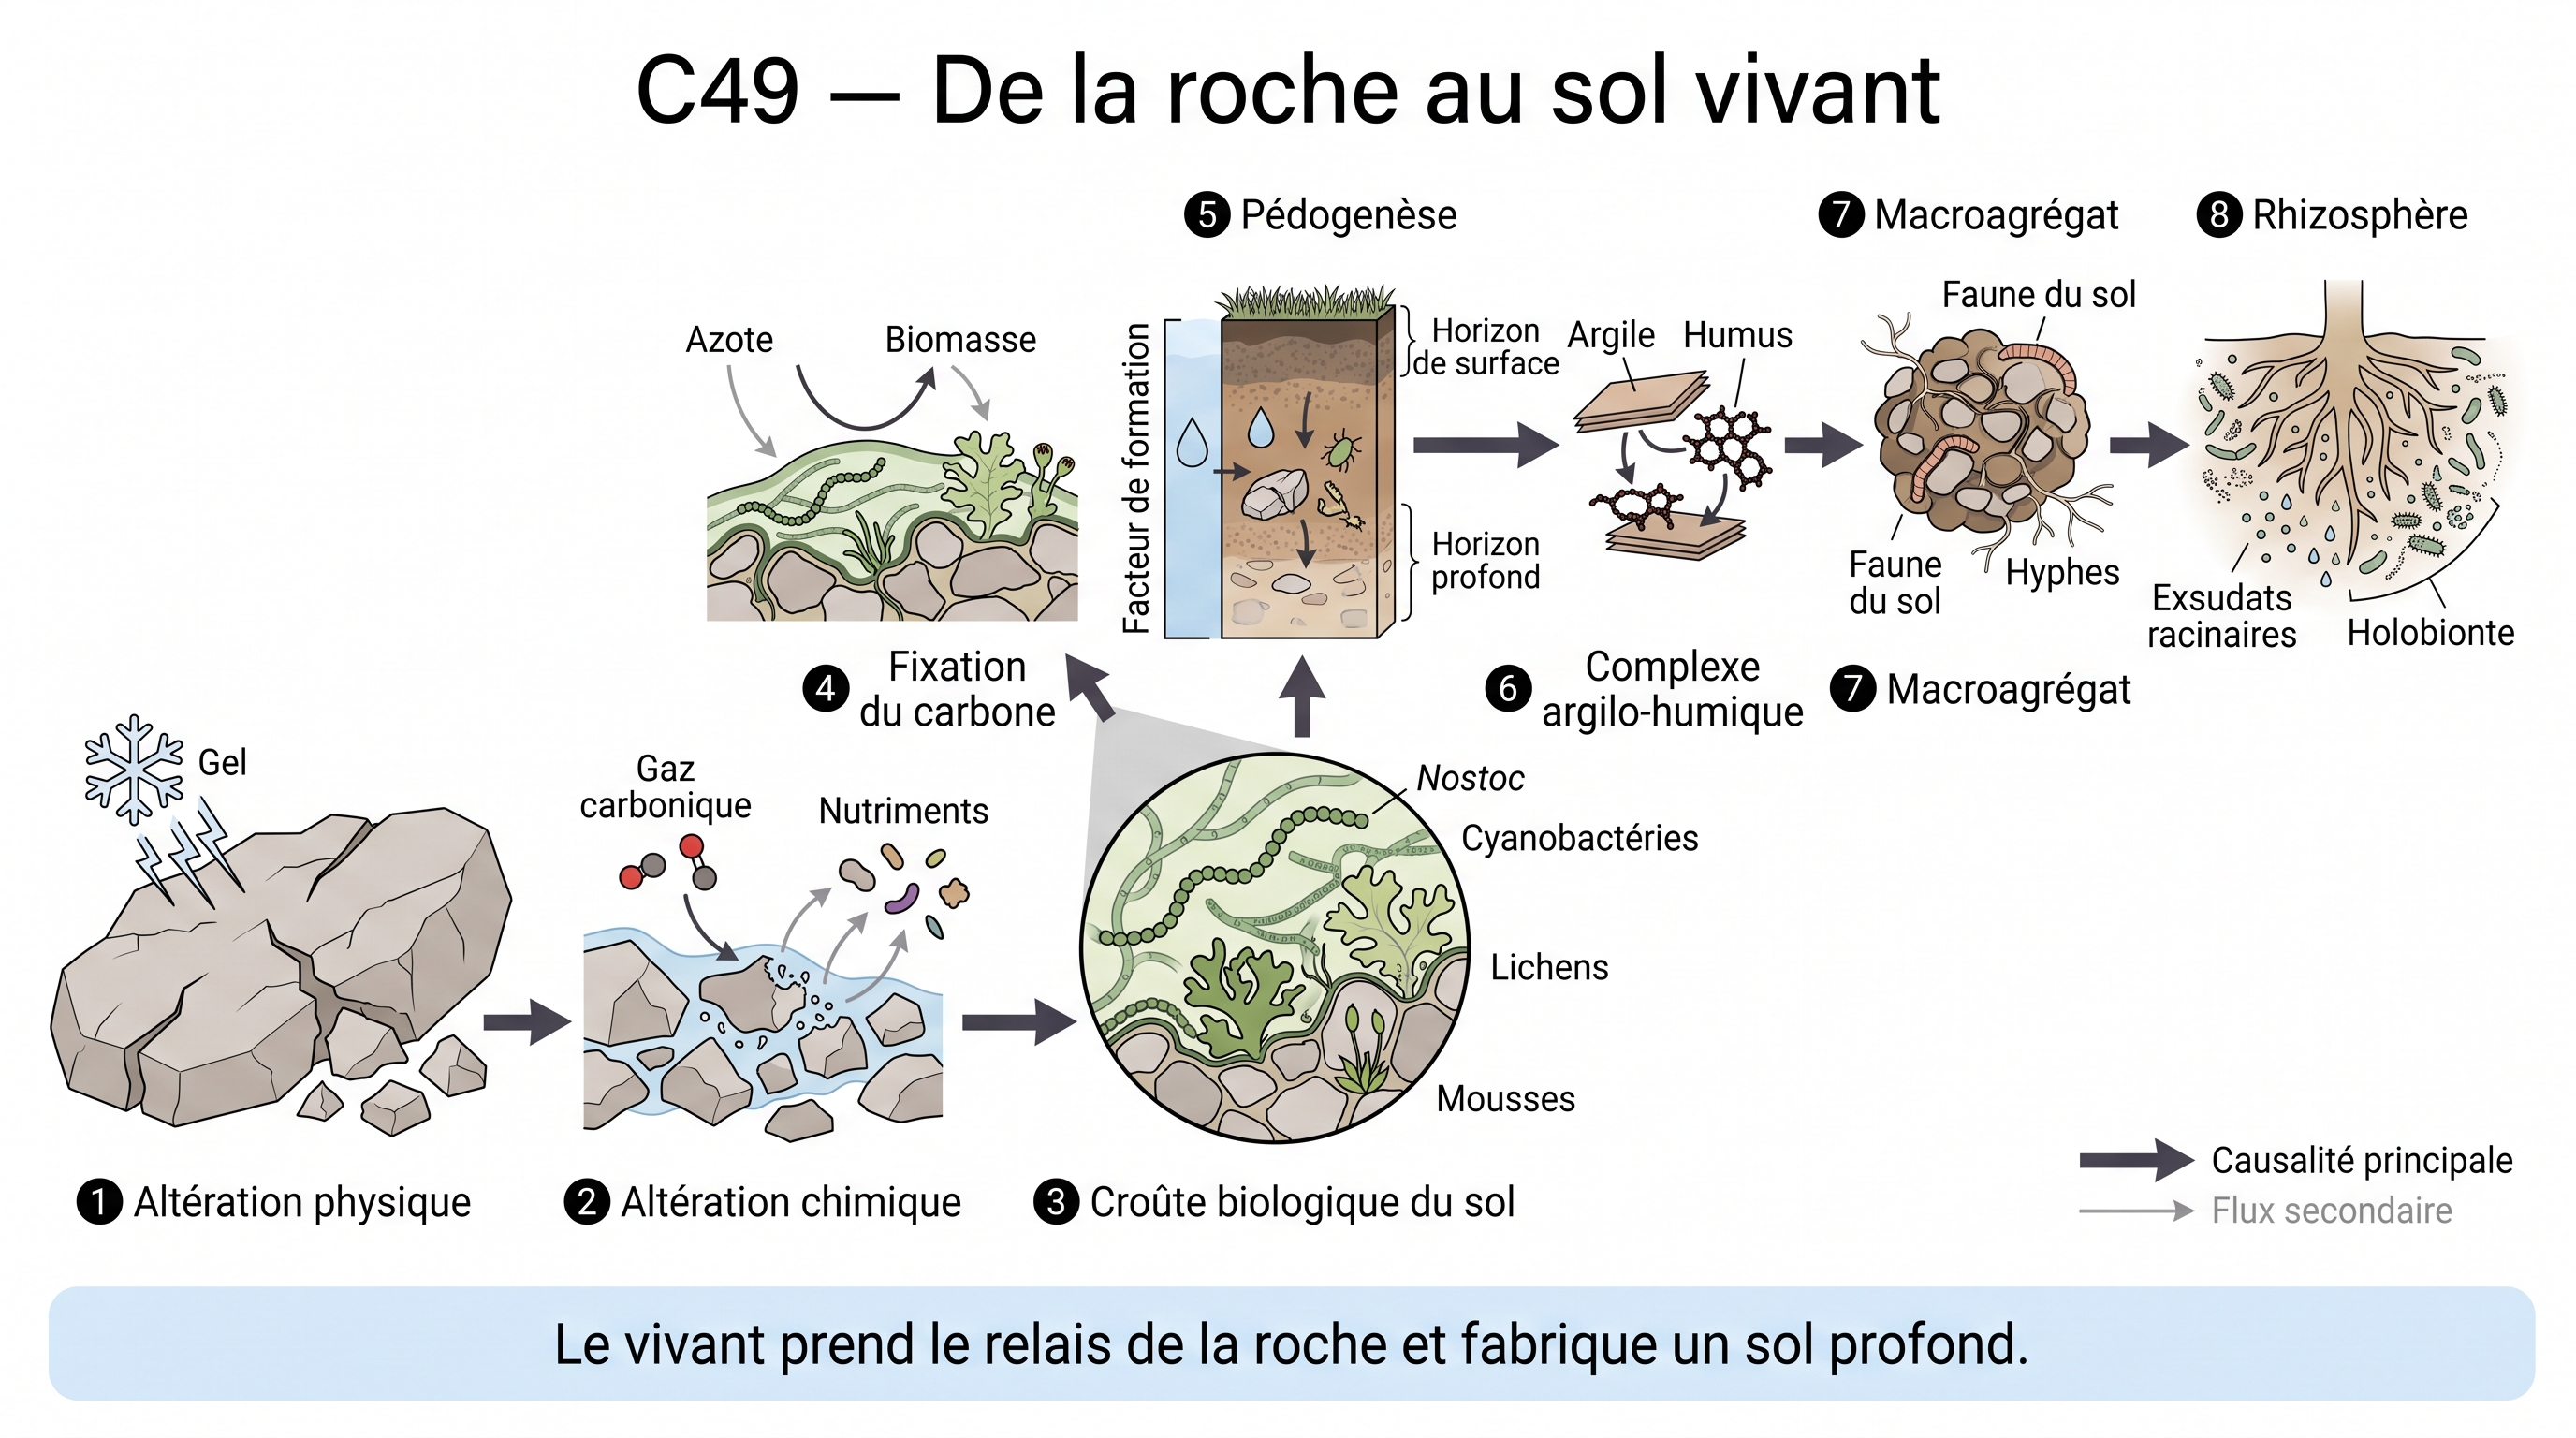
Science
- altération physique (F1) : Roche nue fragmentée par gel et décompression : le point de départ minéral du relais.
→ fiche #201 (cadre) · fiche #300 - altération chimique (S1) : L'eau et le CO₂ attaquent les minéraux, libèrent bases et nutriments : le socle nutritif s'installe.
→ fiche #287 · fiche #300 - croûte biologique du sol (S2) : Biocrusts (cyanobactéries dont Nostoc, lichens, mousses) : fixation du carbone et de l'azote, première biomasse structurante (fusion ex-étapes lichens+biocrust).
→ fiche #343 · fiche #346 (pivot) - Pédogenèse (F1) : CLORPT : le vivant devient facteur de formation — bascule conceptuelle (card pivot #267).
→ fiche #300 (pivot) - Complexe argilo-humique (S1) : Argiles d'altération et humus primaire s'associent : naissance du complexe.
→ fiche #208 (pivot) - macroagrégat (S1) : La structure se construit : habitat pour la faune et les hyphes.
→ fiche #125 · fiche #207 (pivot) - rhizosphère (V2) : Le sol profond devient organe : exsudats racinaires, holobionte.
→ fiche #167 · fiche #308 (pivot)
C50 : Diversité et résistance : la production sous extrêmes climatiques
Argument
Face à un climat qui se dérègle, mélanger les espèces n'est plus un luxe esthétique : c'est une assurance qui stabilise la récolte d'une année sur l'autre. Chaque espèce d'un mélange tolère différemment la chaleur, la sécheresse ou le froid ; sous un climat instable, les extrêmes ne touchent pas toutes les cultures de la même façon. Cette complémentarité amortit le choc : dans les écosystèmes, la diversité augmente la résistance de la production aux extrêmes — un constat à étendre prudemment aux champs cultivés. La diversification tend aussi à lisser les rendements d'une année à l'autre, sans sacrifier leur niveau moyen. Alors que la moyenne climatique dérive, la stabilité de la production devient un critère au moins aussi précieux que le rendement seul.
Illustration : Fig. C50-A · C50 — Diversité et résistance : la production sous extrêmes climatiques…
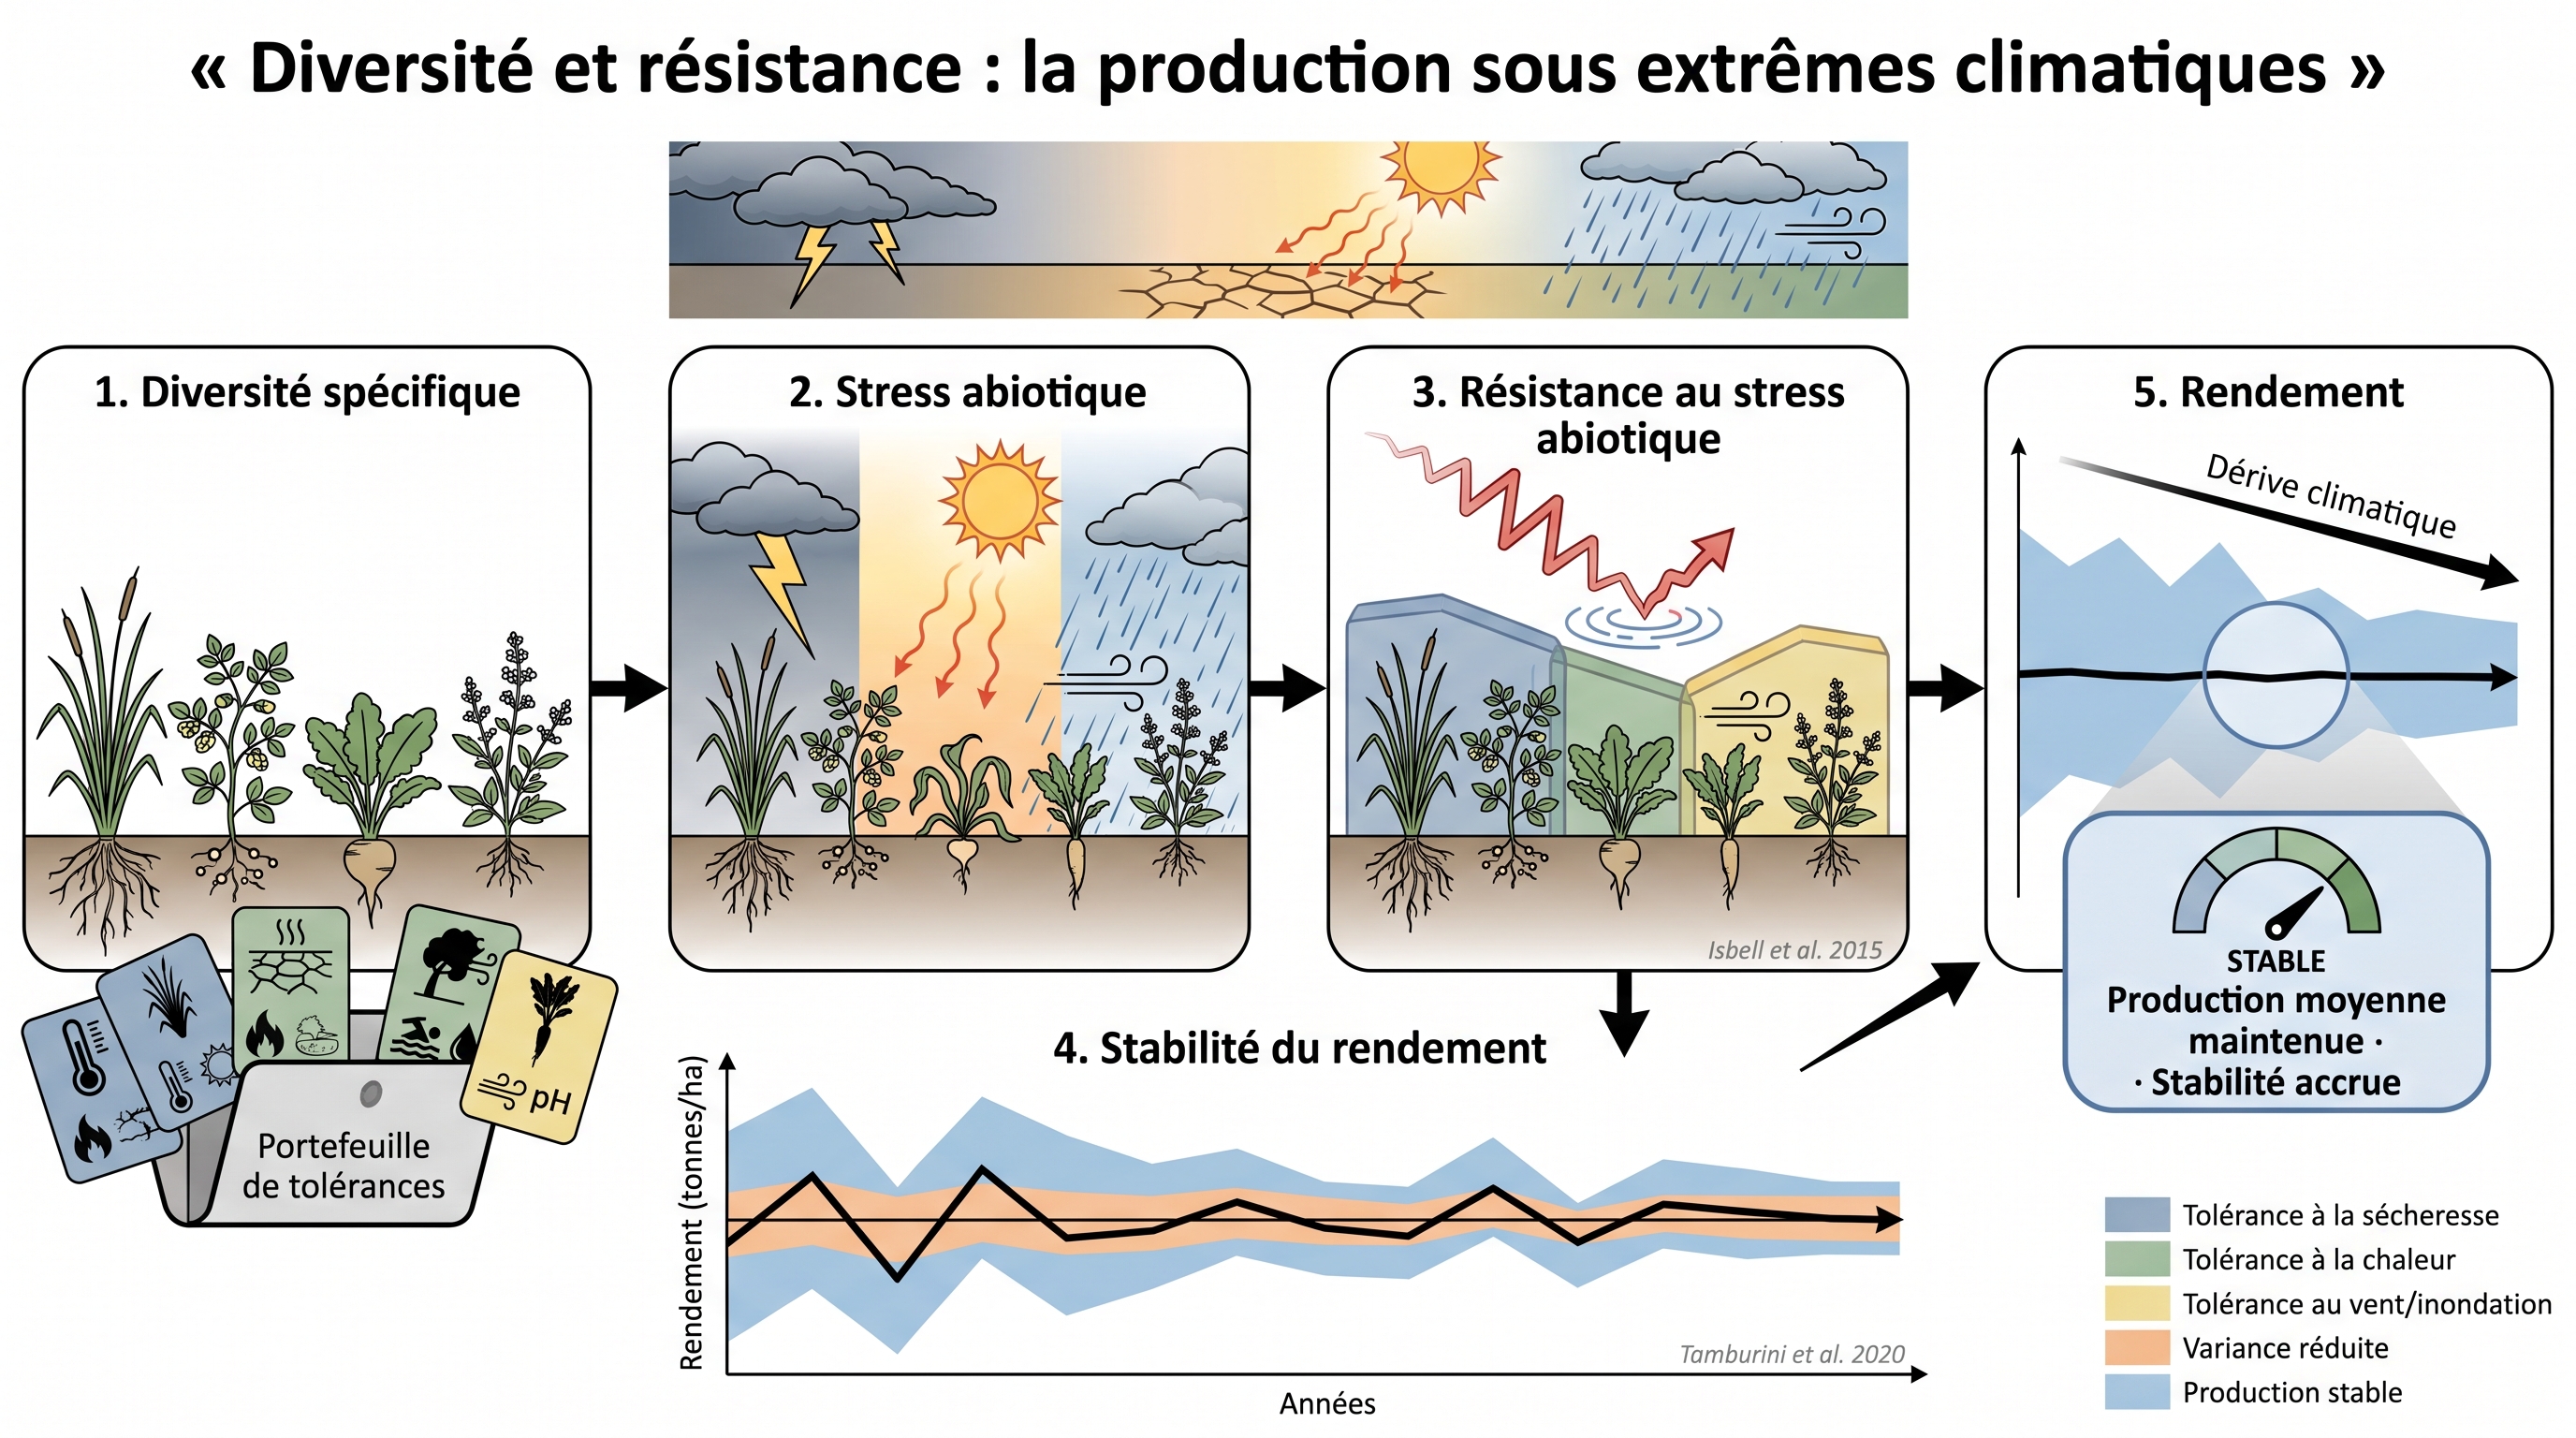
Science
- diversité spécifique (S2) : Le portefeuille de tolérances : chaque espèce du mélange répond différemment aux stress.
→ fiche #215 · fiche #354 (pivot) - Stress abiotique (S1) : Sous climat non stationnaire, les extrêmes frappent — mais pas uniformément (Zhao et al. 2017).
→ fiche #21 (pivot) · fiche #88 · fiche #354 - résistance au stress abiotique (V2) : Les tolérances complémentaires amortissent le choc : la diversité augmente la résistance de la production aux extrêmes (Isbell et al. 2015).
→ fiche #293 · fiche #354 (pivot) - stabilité du rendement (P2) : La variance interannuelle se réduit : la diversification stabilise sans compromettre le rendement moyen (Tamburini et al. 2020).
→ fiche #34 · fiche #354 (pivot) - Rendement (P5) : Le niveau moyen se maintient sous dérive climatique (Ortiz-Bobea et al. 2021 en contexte) — la stabilité devient le critère (card pivot #284).
→ fiche #198 · fiche #354
C51 : Déforestation → perte du recyclage → aridification : la boucle de l'eau vivante rompue
Argument
Quand on coupe une forêt, on ne perd pas seulement des arbres : on éteint le moteur qui recyclait l'eau et faisait revenir la pluie sur les terres. Le couvert pérenne disparaît, remplacé par un sol nu ou des cultures : la pompe végétale s'arrête, la vapeur n'est plus émise vers l'atmosphère. Sans cette évapotranspiration — l'eau que les feuilles relâchent dans l'air — les pluies ne se recyclent plus sur place : l'eau traverse sans nourrir. S'affaiblit aussi la pompe biotique, l'idée — encore débattue — que les forêts aspirent l'humidité de la mer vers l'intérieur des terres. Au bout : l'aridification — sécheresses répétées, sols qui se durcissent, et une spirale qui rend plus difficile le retour de la forêt capable de ramener l'eau.
Illustration : Fig. C51-A · C51 — Déforestation → perte du recyclage → aridification : la boucle de l'eau vivante rompue…
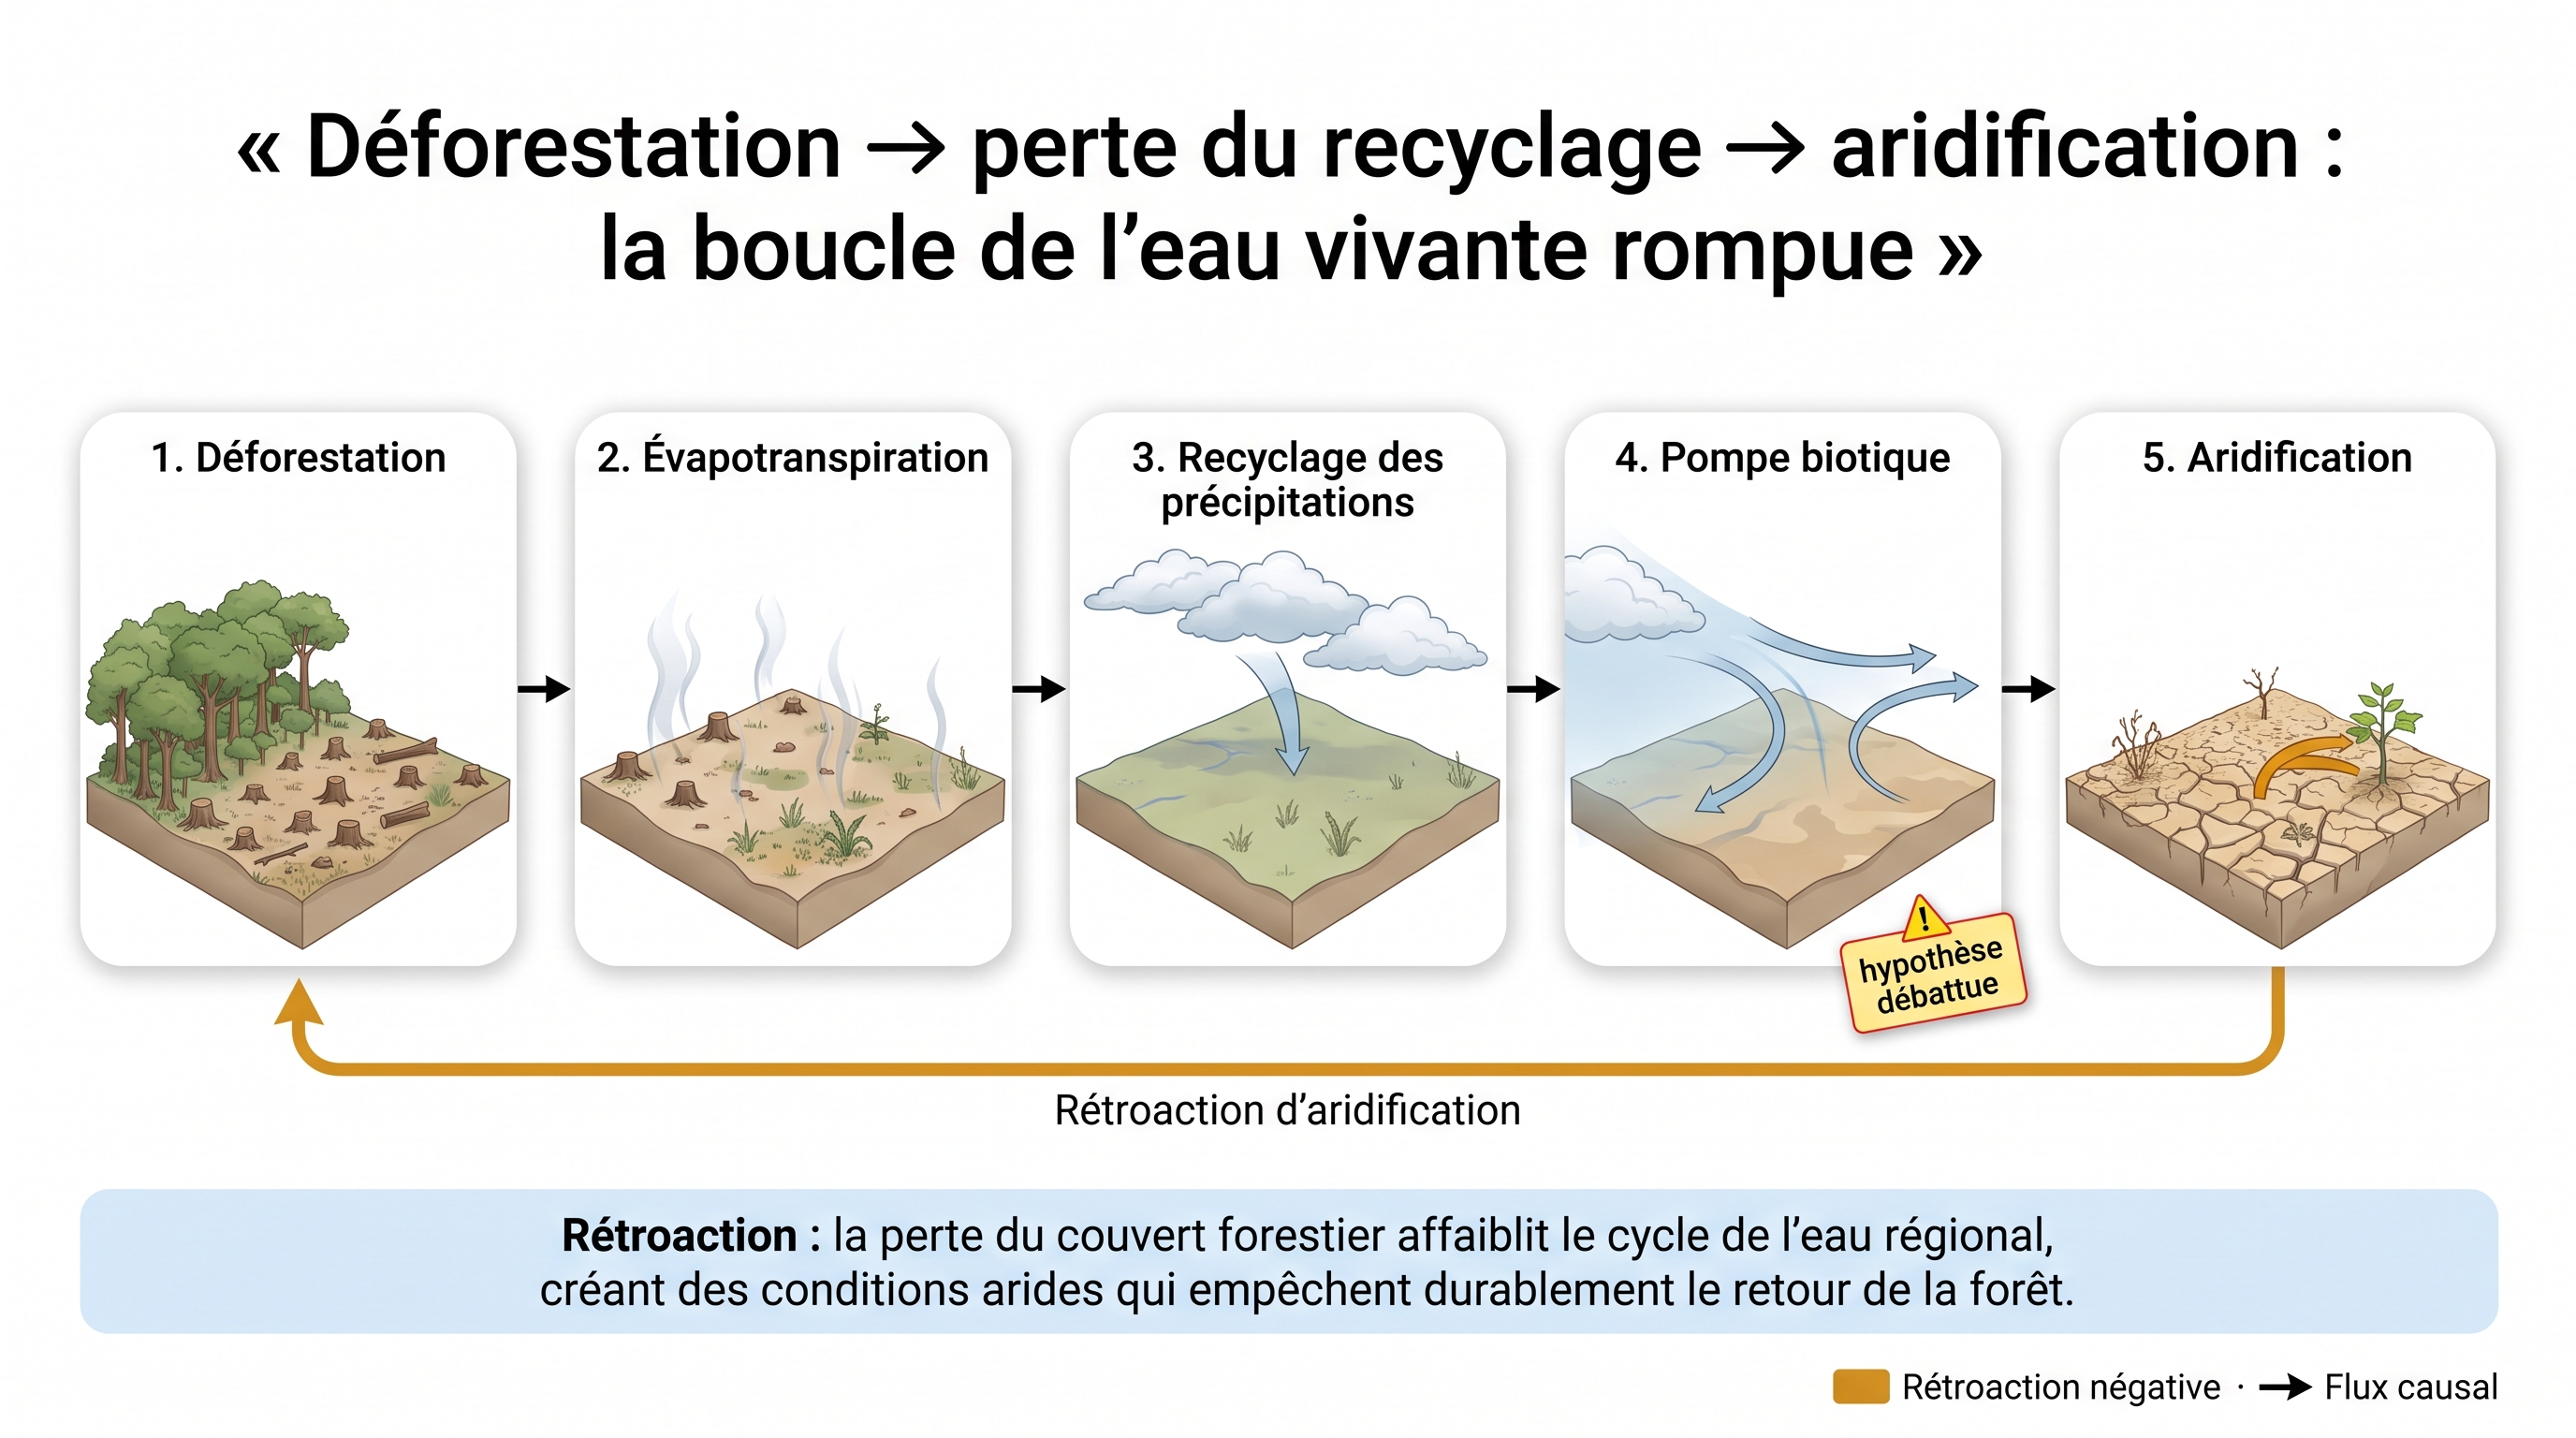
Science
- Déforestation (S0) : Le couvert pérenne disparaît : la surface qui transpirait est remplacée par un sol nu ou annuel une partie de l'année.
→ fiche #43 · fiche #57 - évapotranspiration (S0) : La pompe végétale s'arrête : moins de vapeur émise vers l'atmosphère, le souffle humide de la forêt s'éteint.
→ fiche #36 (pivot) · fiche #252 - Recyclage des précipitations (S0) : Sans vapeur locale, les précipitations ne sont plus recyclées sur place : l'eau traverse sans nourrir (Ellison et al. 2017).
→ fiche #282 (pivot) - Pompe biotique (S0) : La pression de vapeur qui aspirait les masses humides s'affaiblit — le gradient s'inverse, les pluies se déroutent (Makarieva & Gorshkov 2007, débattu).
→ fiche #282 (pivot) - aridification (S0) : Sécheresses récurrentes, sols qui se durcissent : la rétroaction s'installe — plus difficile de faire revenir la forêt qui ramènerait l'eau.
→ fiche #282 · fiche #354
C52 : Glyphosate au sol : de l'inhibition de l'EPSPS au résistome
Argument
Le glyphosate est présenté comme un herbicide qui ne touche que les plantes ; en réalité, il perturbe le sol bien au-delà. Sa cible est une enzyme, l'EPSPS, de la voie du shikimate, qui fabrique certains acides aminés essentiels. Or cette enzyme n'est pas propre aux végétaux : de nombreux microbes du sol la possèdent aussi. En l'inhibant, il déstabilise les communautés microbiennes et les symbioses qui font vivre la terre. Il se dégrade en AMPA, un métabolite persistant qu'on retrouve partout — sols, eaux, pluies — et qui prolonge l'exposition après la pulvérisation. Enfin, la pression de sélection continue favorise les formes résistantes : adventices insensibles et dérive microbienne forment le résistome, cet ensemble de gènes de résistance qui s'accumulent.
Illustration : Fig. C52-A · C52 — Glyphosate au sol : de l'inhibition de l'EPSPS au résistome…
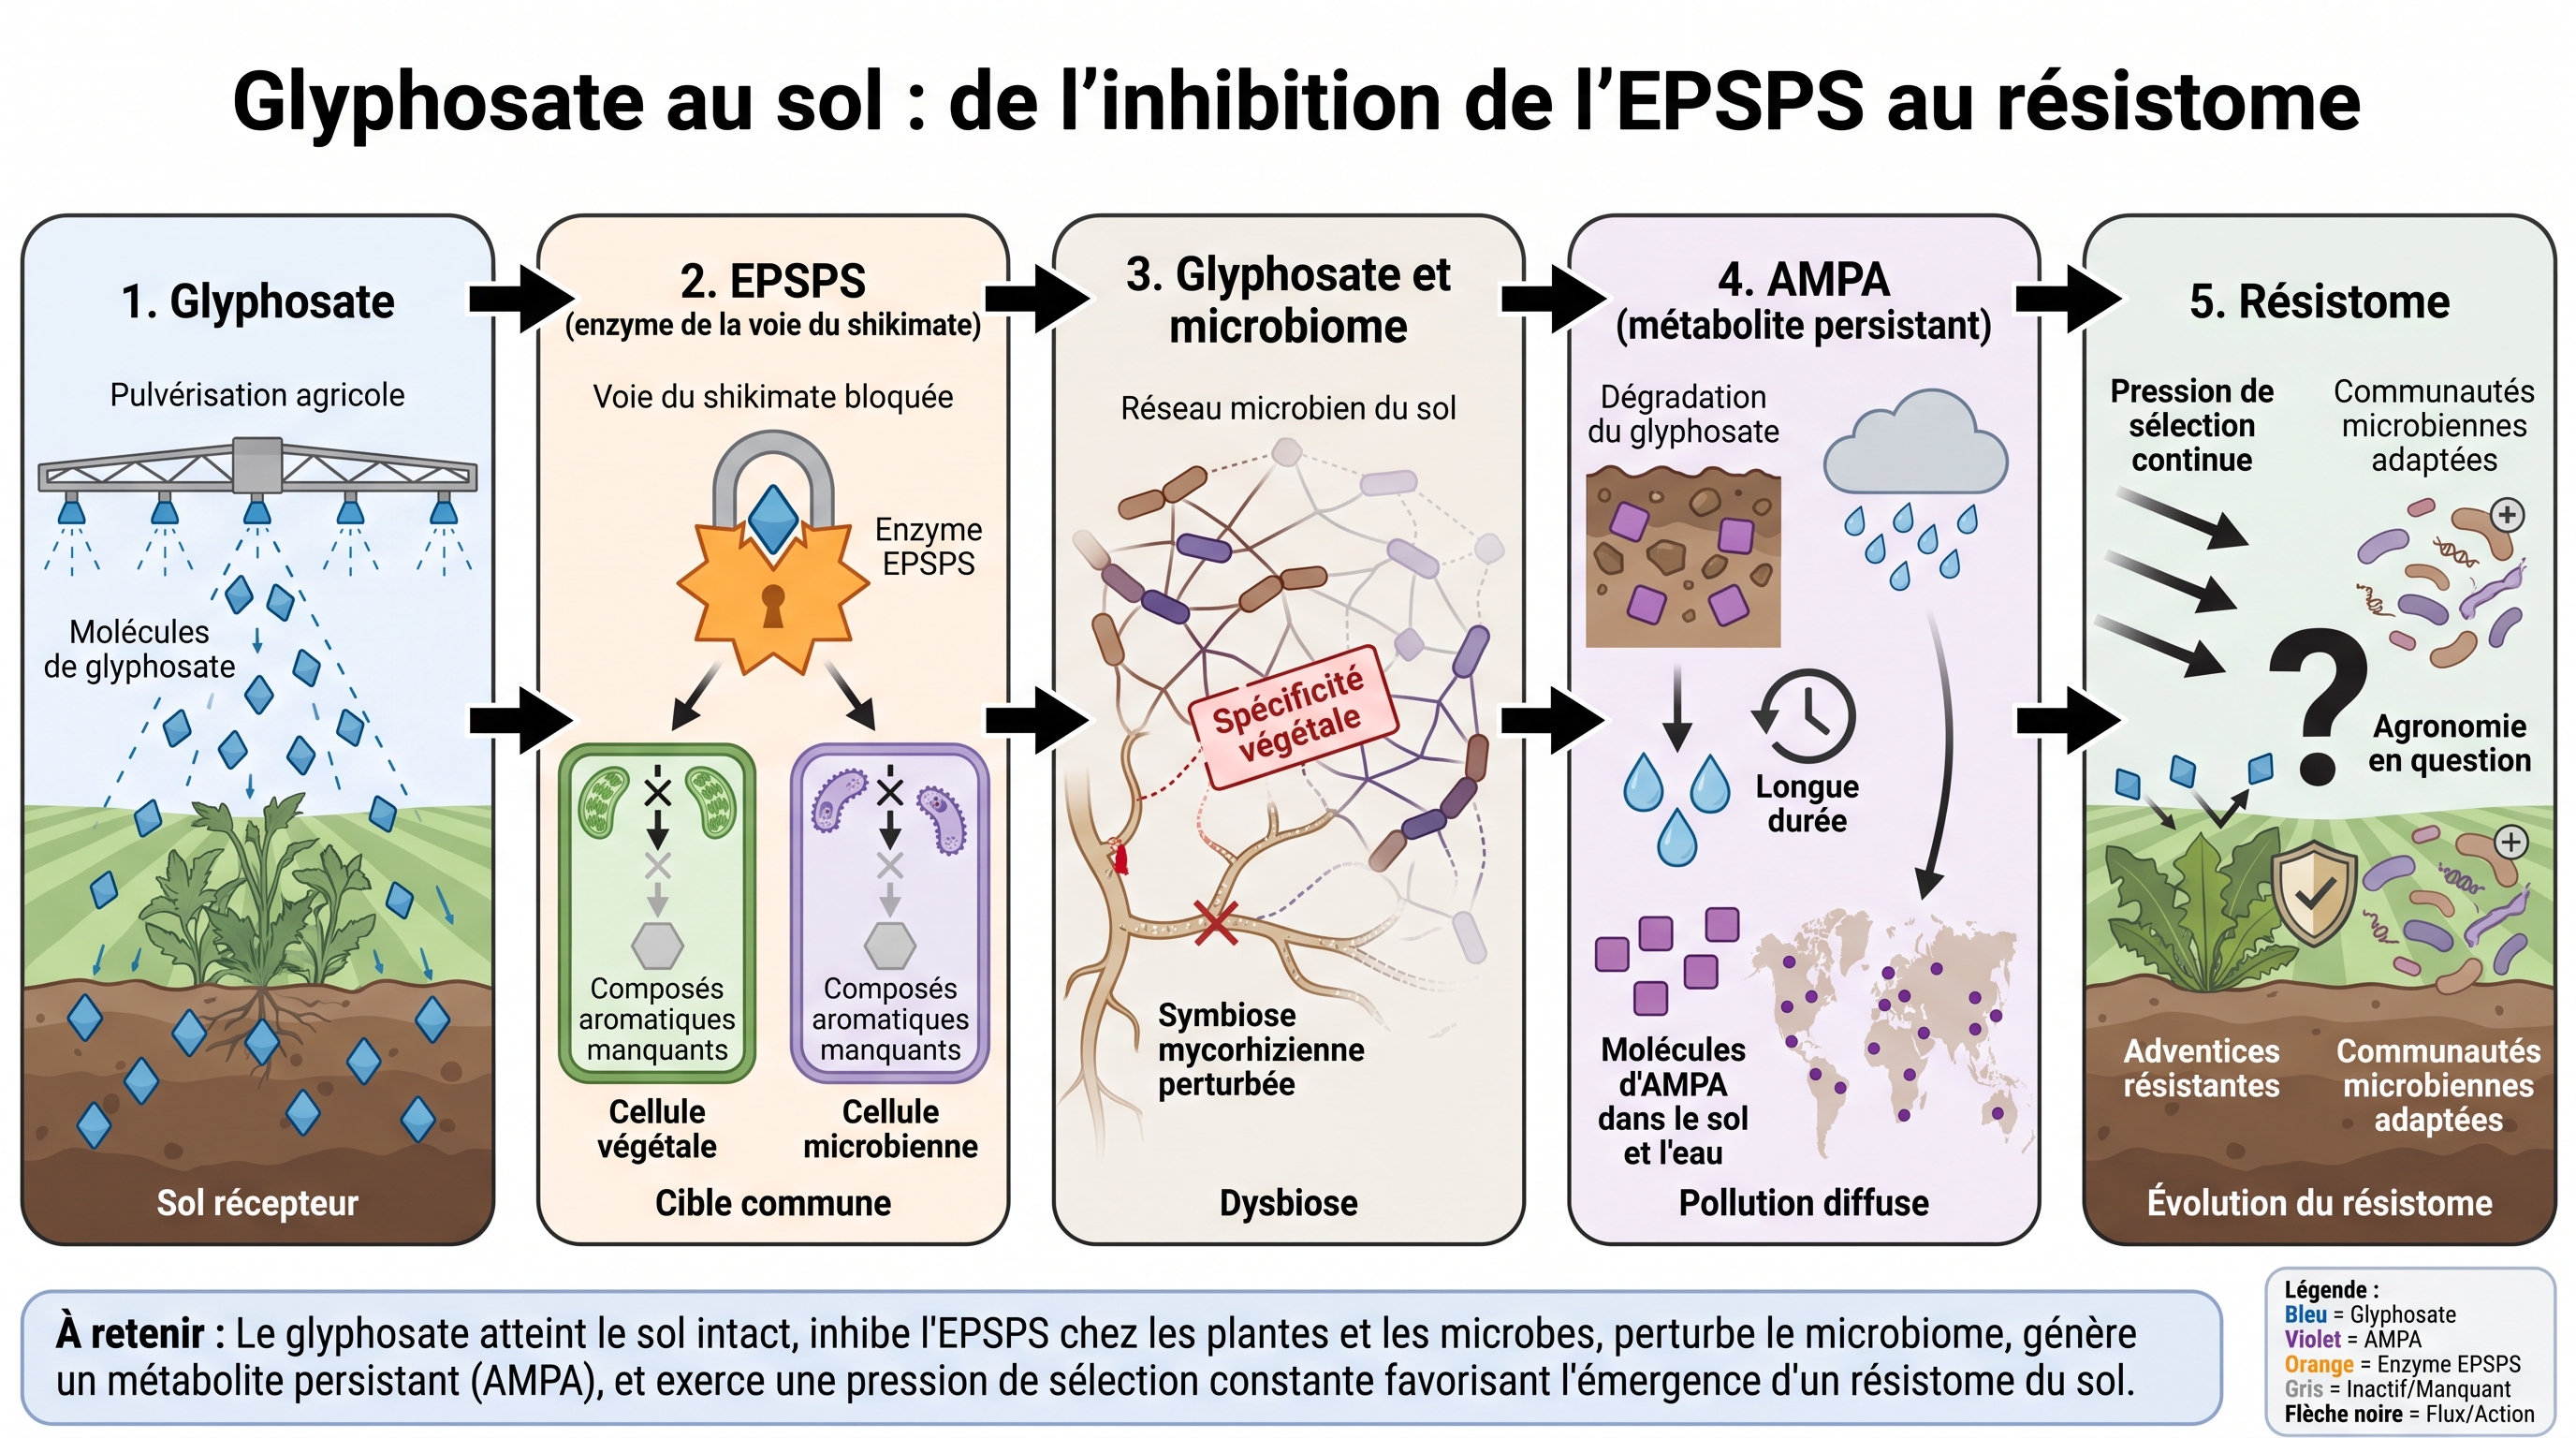
Science
- glyphosate (S2) : La molécule entre au champ : herbicide total, l'application vise les adventices — mais le sol la reçoit entier.
→ fiche #57 · fiche #84 · fiche #221 (pivot) - EPSPS (S2) : Cible moléculaire : l'inhibition de l'enzyme de la voie du shikimate prive plantes ET microbes de leurs aromatiques (Duke & Powles 2008 — card pivot).
→ fiche #213 (pivot) · fiche #221 - glyphosate et microbiome (S2) : La spécificité « végétale » est une illusion taxonomique : communautés microbiennes et symbioses perturbées (van Bruggen et al. 2021).
→ fiche #84 · fiche #221 (pivot) - AMPA (S2) : Le métabolite persiste : ubiquiste dans sols, eaux et précipitations, il prolonge l'exposition au-delà de la pulvérisation (Battaglin et al. 2014).
→ fiche #57 - résistome (P3) : La pression de sélection continue installe le résistome : adventices résistantes et dérive microbienne — la sortie du glyphosate devient une question agronomique, pas seulement réglementaire.
→ fiche #24 (pivot) · fiche #269
C53 : P soluble → Répression mycorhizienne → Dilution micronutritionnelle : l'abondance minérale pathogène
Argument
Le phosphore fait grossir les plantes, mais à trop forte dose, il peut les appauvrir. Sur les terres longuement fertilisées — une situation agricole courante — le sol regorge de phosphore soluble. La plante n'a alors plus besoin de ses alliés souterrains, les champignons mycorhiziens qui colonisent les racines pour puiser l'eau et les minéraux : elle les délaisse. Or c'est par cette voie que le zinc, le fer et le cuivre étaient capturés. La plante grossit donc, mais sa chair se dilue en micronutriments — un effet documenté pour l'intensification, même si le lien direct avec l'excès de phosphore reste moins établi. Au bout : des régimes riches en calories mais pauvres en minéraux — ce que la santé publique nomme la faim cachée.
Illustration : Fig. C53-A · C53 — P soluble → Répression mycorhizienne → Dilution micronutritionnelle : l'abondance minérale pathogène…
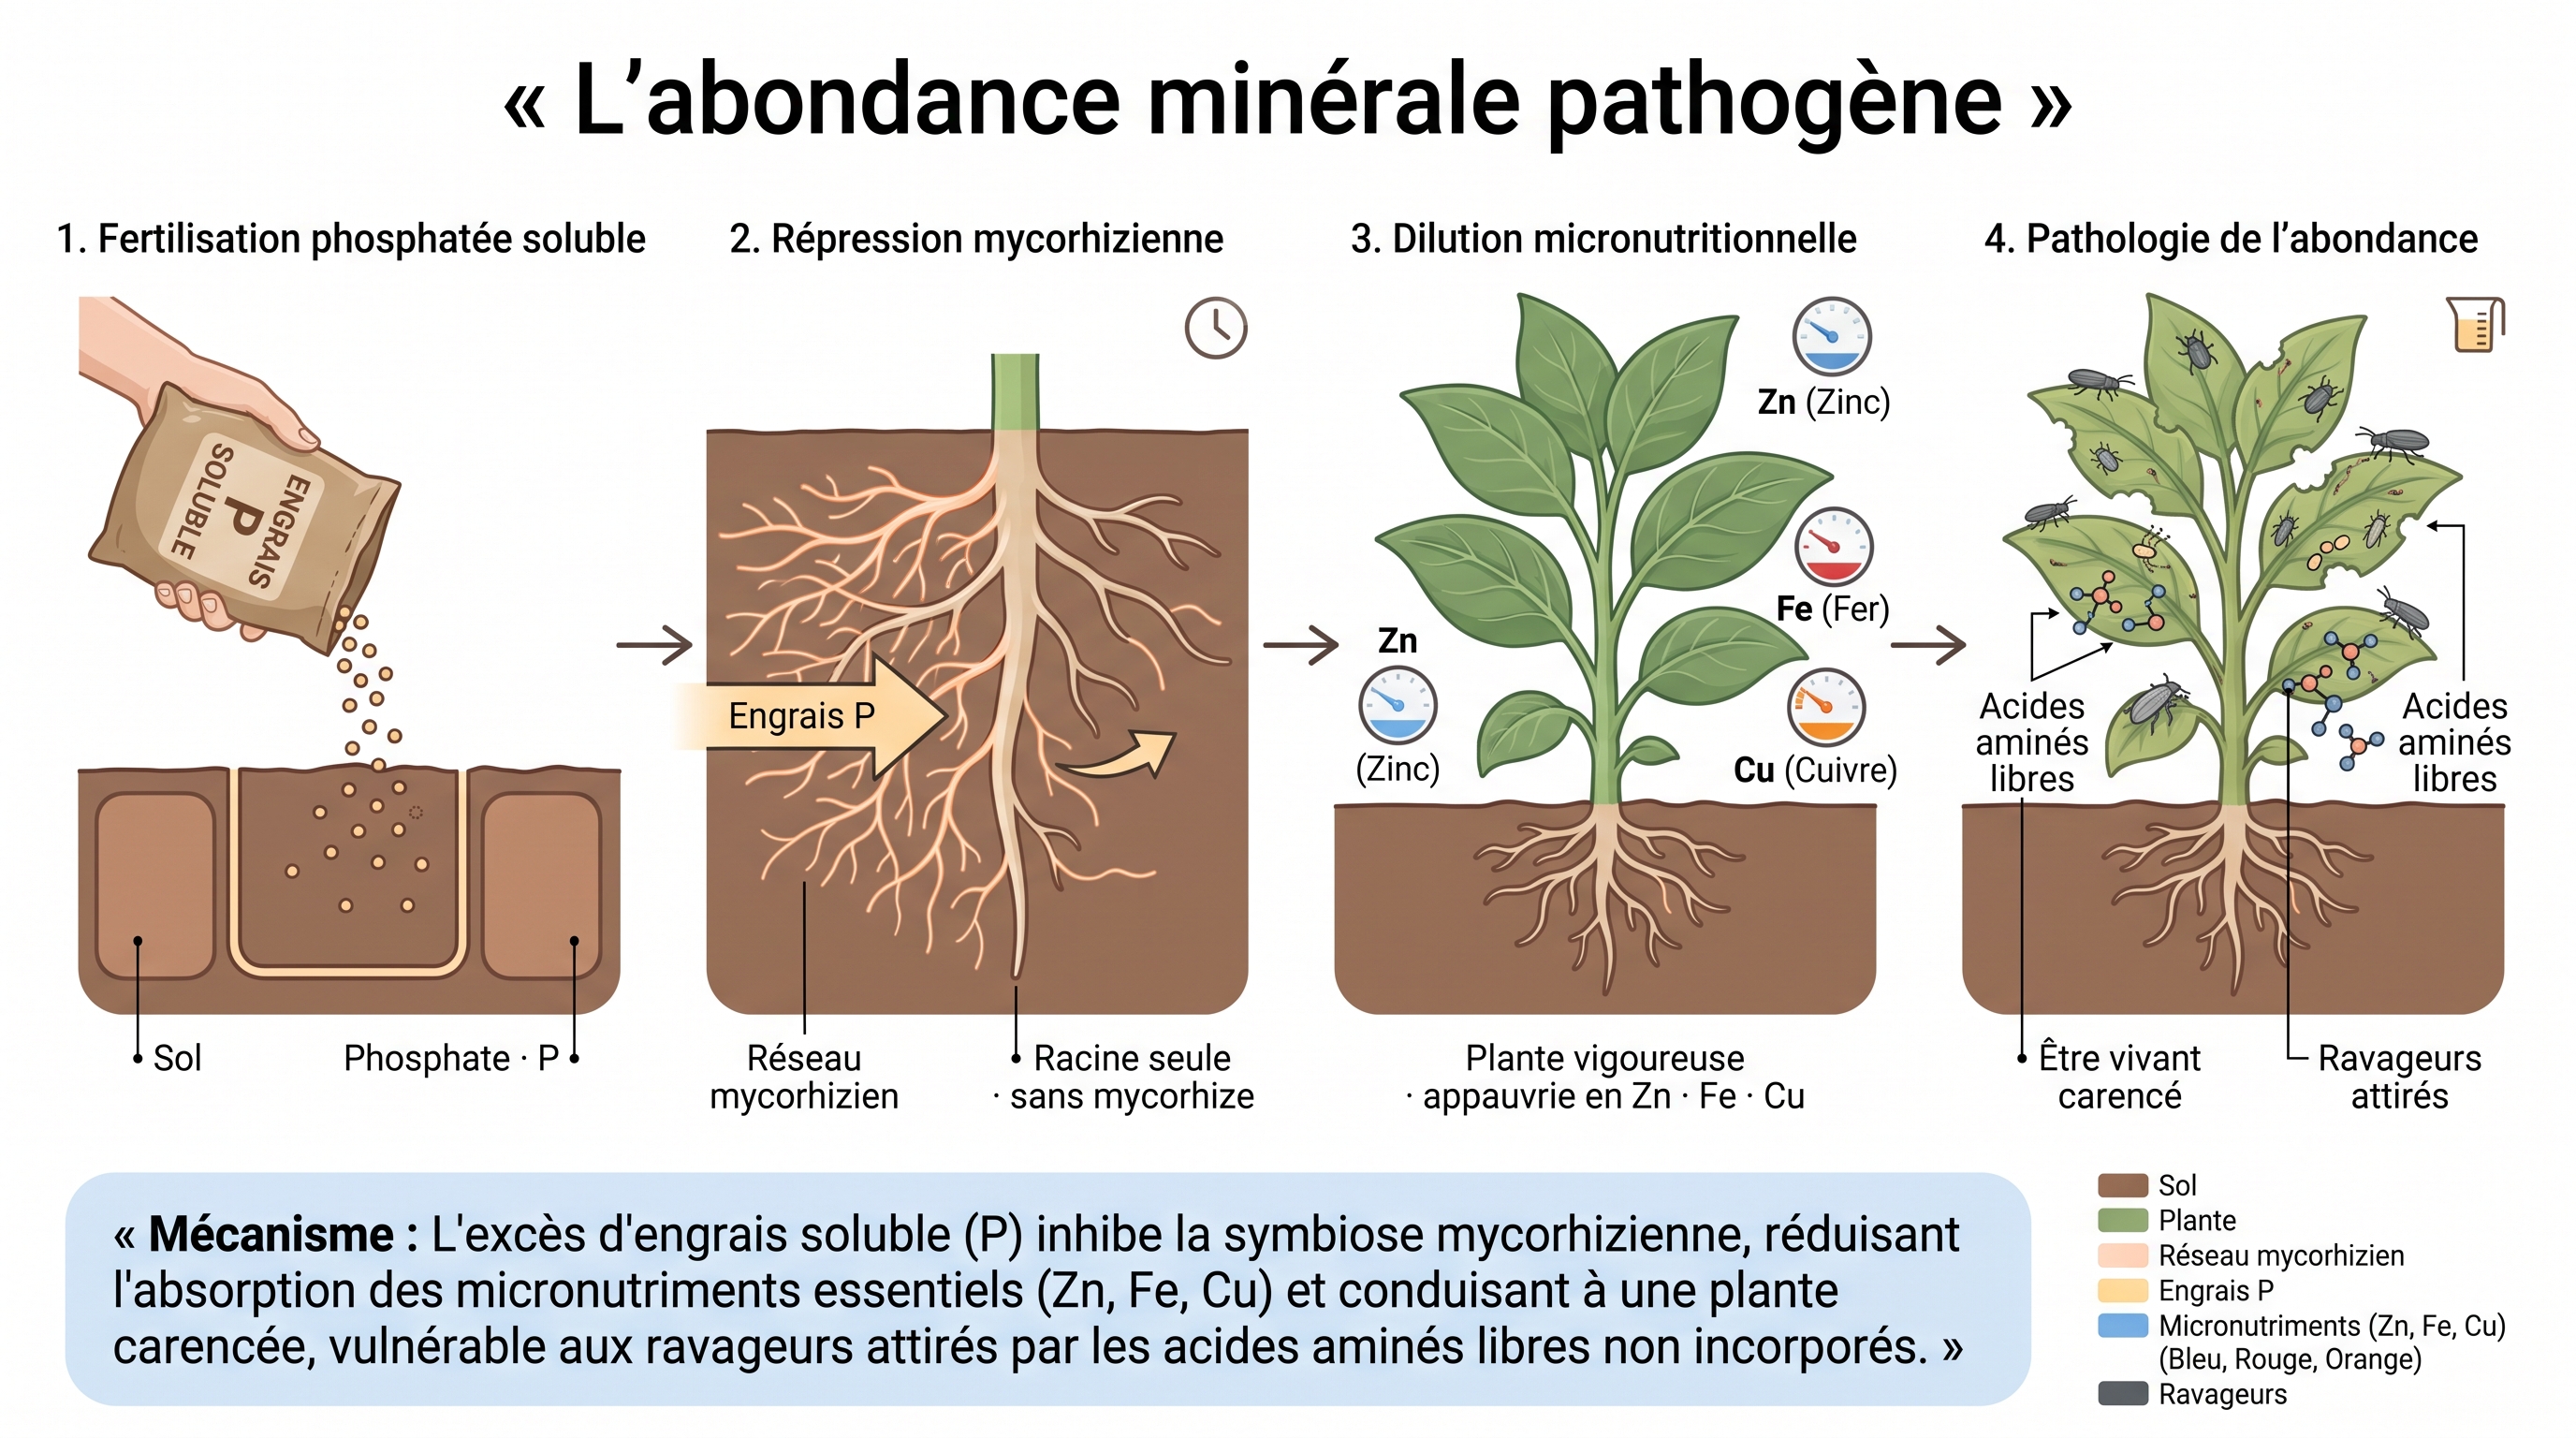
Science
- Phosphore biodisponible (S4) : Point de départ : le P soluble en excès (fertilisation phosphatée, forte disponibilité du P en solution — Johnson et al. 2009)
→ fiche #83 (pivot) · fiche #297 - Paradoxe d'inoculation mycorhizienne (S3) : Conséquence directe : un sol riche en P rend la colonisation mycorhizienne inefficace — répression de la symbiose
→ fiche #35 · fiche #83 (pivot) - voie de capture mycorhizienne (S3) : La voie mycorhizienne d'acquisition des micronutriments (Zn, Fe, Cu) est court-circuitée
→ fiche #35 · fiche #144 - Carence en zinc induite par le phosphore (H1) : Premier dommage mesurable : l'antagonisme P-Zn se traduit en carence minérale induite
→ fiche #83 · fiche #240 (pivot) - Dilution nutritionnelle (H1) : La biomasse croît (effet fertilisant) mais la concentration en micronutriments s'effondre
→ fiche #89 · fiche #237 (cadre) - densité nutritionnelle (H1) : La densité nutritionnelle des organes consommés chute
→ fiche #89 (pivot) - faim cachée (H1) : Aboutissement santé : carences micronutritionnelles masquées par un apport calorique normal
→ fiche #64 (pivot) · fiche #89
C54 : Biopuncture : la vie fait le sol : du radis fourrager à la réserve utile
Argument
Le labour tasse et déstructure : il détruit les gros canaux par lesquels l'eau et l'air circulent dans le sol. Plutôt que de forcer mécaniquement, on peut laisser une plante s'en charger. Le radis fourrager, avec sa grosse racine pivotante, perce la semelle compactée ; quand elle meurt, elle laisse derrière elle un canal vertical et continu — un biopore — qui rouvre le passage. Cette reconstruction de la porosité par le vivant porte un nom d'image, la « biopuncture » : un néologisme pratique, pas un terme scientifique établi. Le service rendu est d'abord hydrique : l'eau s'infiltre de nouveau et se stocke mieux, en lien aussi avec la matière organique, et un couvert permanent entretient ce réseau de canaux dans la durée.
Illustration : Fig. C54-A · C54 — Biopuncture : la vie fait le sol — du radis fourrager à la réserve utile…
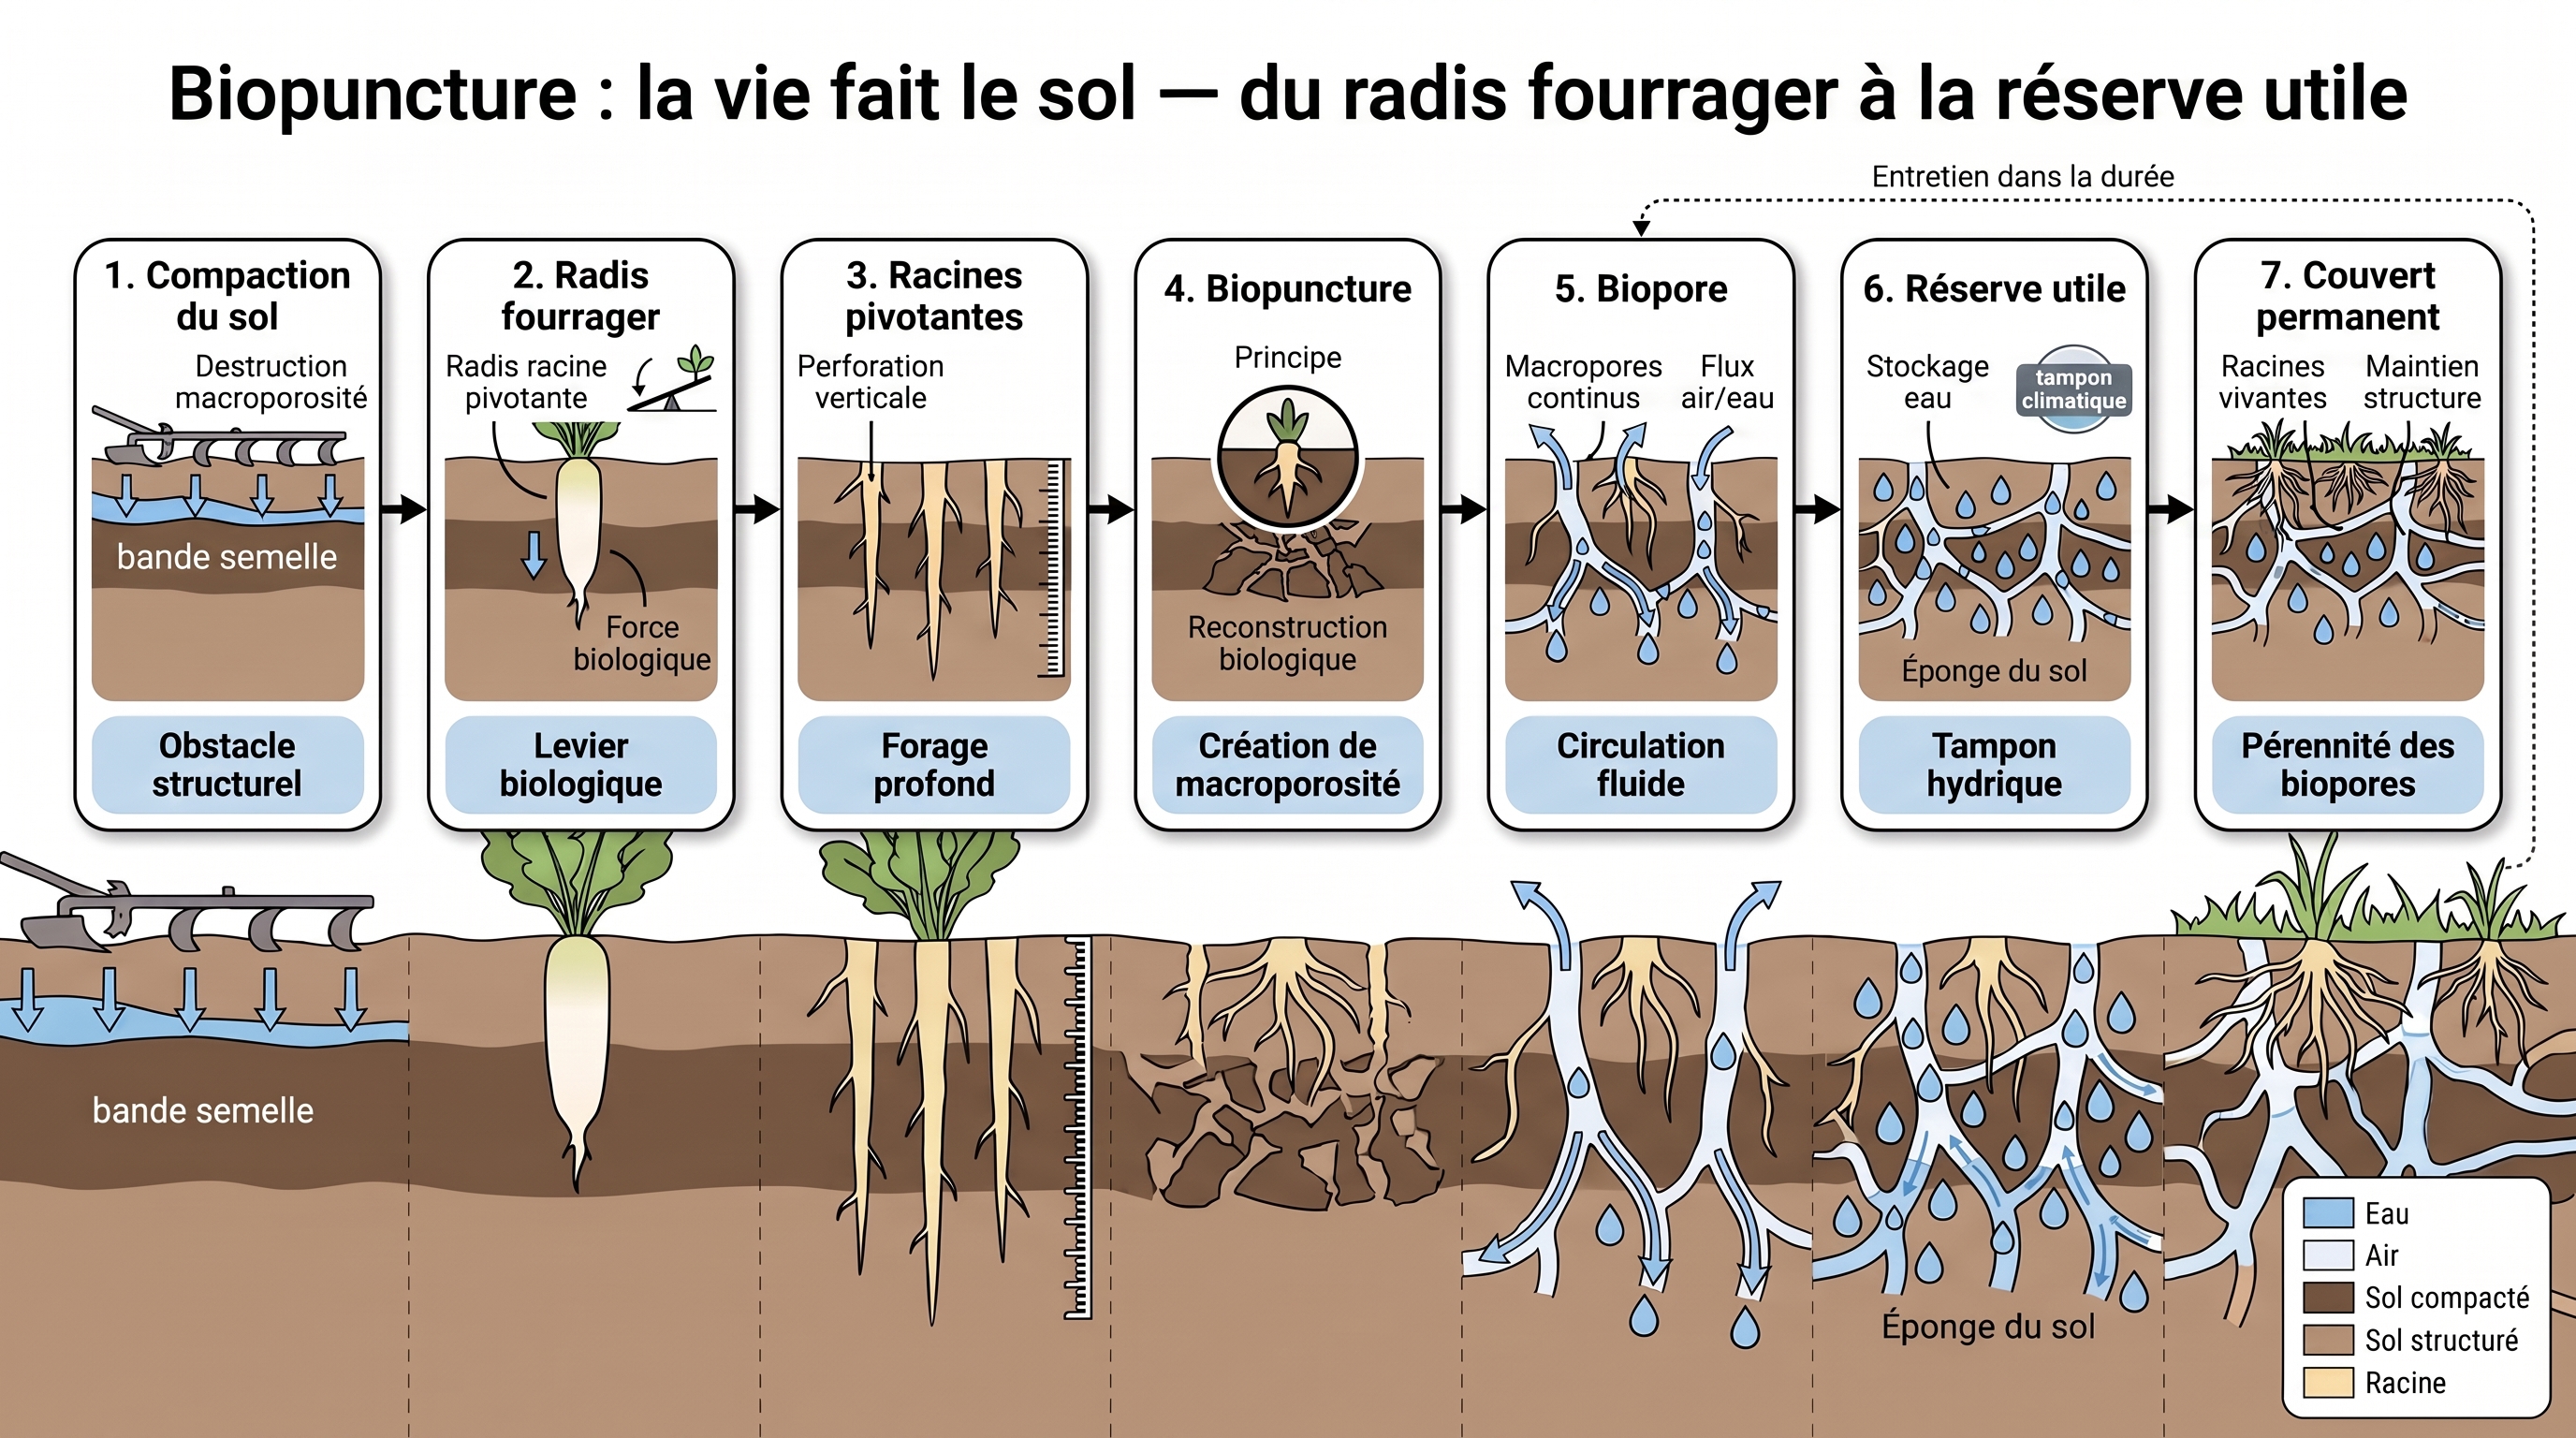
Science
- compaction du sol (S1) : Point de départ : le labour déstructure et compacte, détruisant la macroporosité
→ fiche #87 (pivot) · fiche #255 · fiche #309 - radis fourrager (P2) : Levier végétal : une racine pivotante charnue capable de percer la semelle de labour
→ fiche #69 · fiche #217 - racines pivotantes (S0) : Mécanisme de pénétration : la racine pivot fore verticalement le profil compacté
→ fiche #217 (pivot) - biopuncture (S0) : Le principe-racine : reconstruction biologique de la macroporosité détruite
→ fiche #111 · fiche #261 (pivot) - biopore (S0) : Résultat structural : des biopores tubulaires continus restaurés
→ fiche #76 · fiche #305 (pivot) - réserve utile (S0) : Service hydrique : la réserve utile est reconstituée (tampon climatique)
→ fiche #36 · fiche #275 (pivot) - Couvert permanent (P2) : Bouclage : le couvert permanent entretient le réseau de biopores dans la durée
→ fiche #69 · fiche #278 (pivot)
C55 : Capture indigène : des communautés autochtones à la suppressivité : l'alternative aux SynCom brevetées
Argument
Pour protéger un sol contre les maladies, on peut fabriquer en laboratoire des communautés microbiennes sur mesure — les SynCom, pour « communautés synthétiques » —, ou amplifier celles qui vivent déjà sur place. C'est cette seconde voie que porte la capture indigène : on prélève les micro-organismes autochtones du lieu, on les multiplie, puis on les réintroduit. Le principe est écologique : ces communautés locales comptent des prédateurs capables de réguler les pathogènes. En s'établissant, elles rendent le sol « suppressif », c'est-à-dire résistant à l'installation d'un agent pathogène. Résultat : un sol protecteur obtenu sans intrant venu d'ailleurs, en s'appuyant sur le vivant qui est déjà là.
Illustration : Fig. C55-A · C55 — Capture indigène : des communautés autochtones à la suppressivité — l'alternative aux SynCom brevetées…
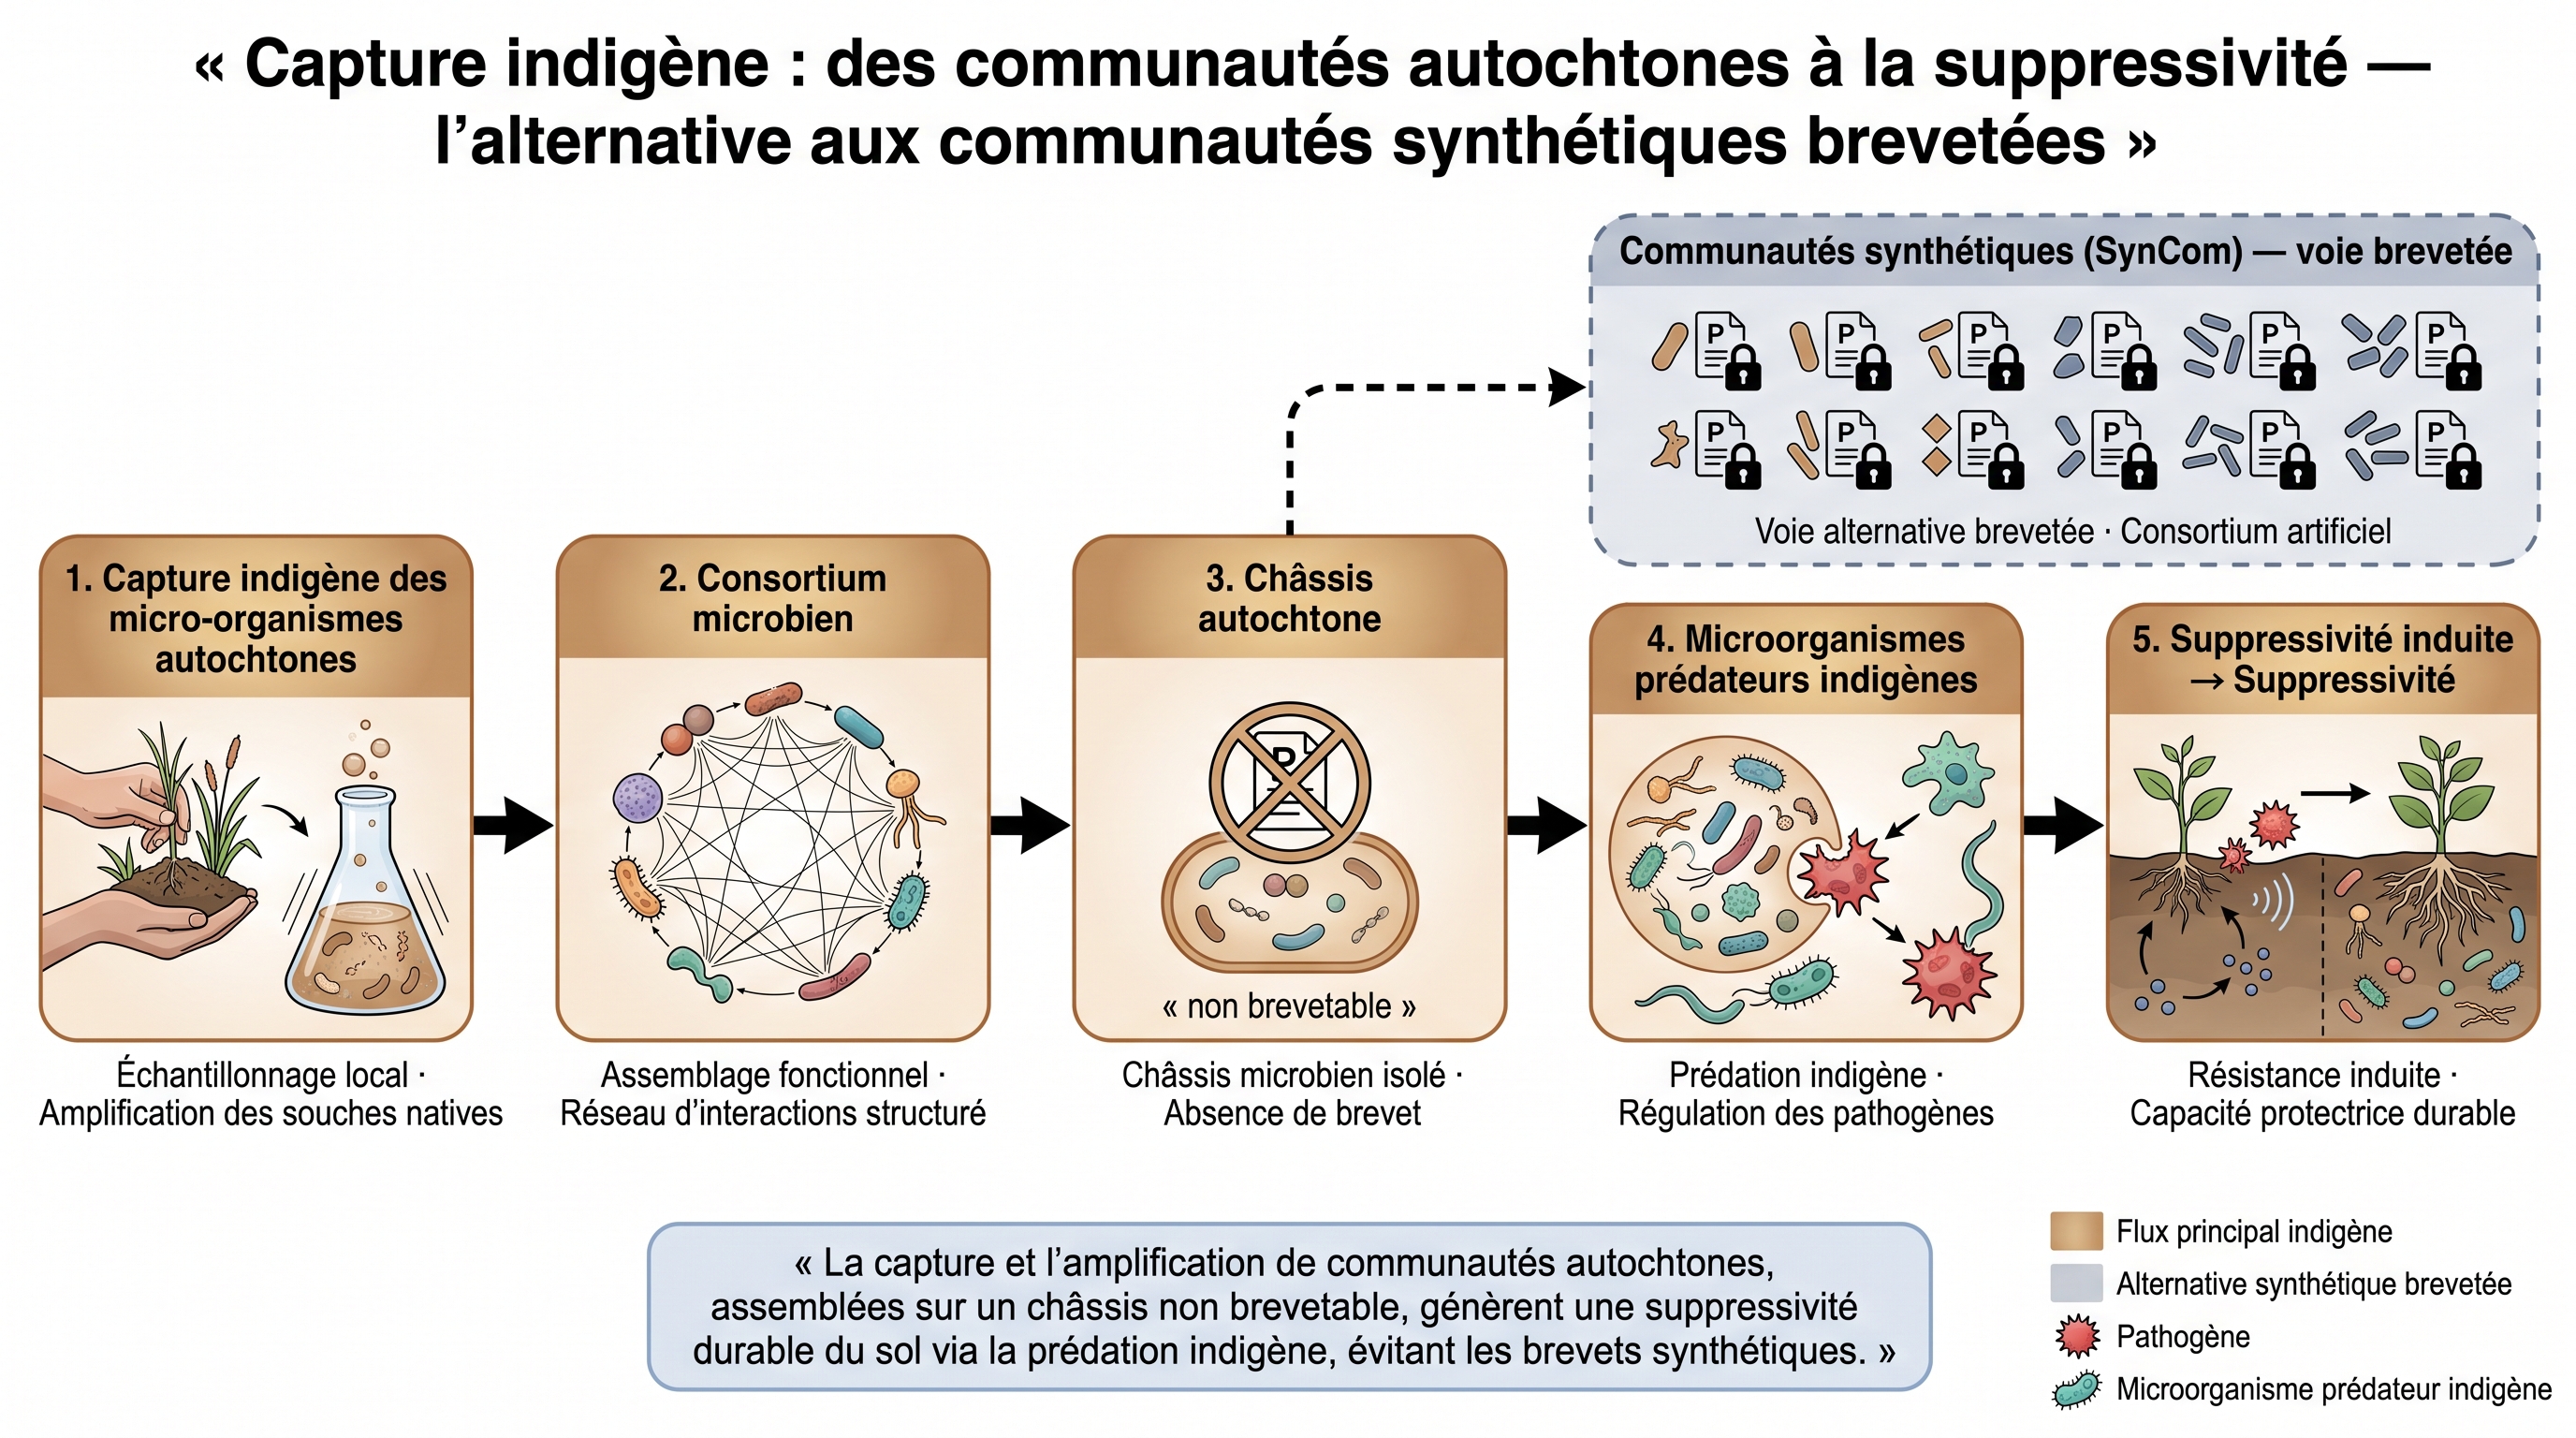
Science
- capture indigène (V3) : Point de départ : collecte et amplification des micro-organismes du lieu (mécanisme générique)
→ fiche #96 (pivot) · fiche #160 - Micro-organismes autochtones (V3) : La matière première : les communautés microbiennes indigènes de l'écosystème
→ fiche #96 · fiche #160 - Consortium microbien (V3) : L'assemblage : les autochtones sont structurés en consortium fonctionnel
→ fiche #160 · fiche #294 - châssis autochtone (S2) : Le support : un châssis microbien isolé de l'environnement cible
→ fiche #142 · fiche #160 - SynCom (V3) : La tension : la voie alternative des communautés synthétiques brevetées (frein/alternative)
→ fiche #142 (pivot) - Microorganismes prédateurs indigènes (S2) : La fonction écologique : la prédation indigène régule les pathogènes
→ fiche #73 (pivot) · fiche #139 - suppressivité induite (S2) : Le service déclenché : la résistance induite du sol à un pathogène
→ fiche #103 · fiche #154 - suppressivité (S2) : Aboutissement : un sol protecteur sans intrant microbien breveté
→ fiche #73 · fiche #103 (pivot)
C56 : Réversibilité conditionnelle de la MAOM : un puits de carbone sous conditions
Argument
Le sol stocke du carbone, mais ce stock n'est pas un coffre-fort : c'est un équilibre. Une grande part de la matière organique stable vient de la nécromasse microbienne — les restes des micro-organismes —, qui se fixe aux minéraux pour former ce qu'on appelle la MAOM, la matière organique associée aux minéraux. Or cette fixation est une adsorption, une liaison réversible : si les conditions changent, elle peut se rompre et le carbone repartir. La capacité de fixation n'est pas non plus sans limite — la question d'une saturation fait débat, mais un plafond existe dans certaines conditions. En clair, le carbone séquestré peut être remobilisé vers le stock labile, la fraction qui circule vite : le puits est conditionnel, pas permanent.
Illustration : Fig. C56-A · C56 — Réversibilité conditionnelle de la MAOM : un puits de carbone sous conditions…
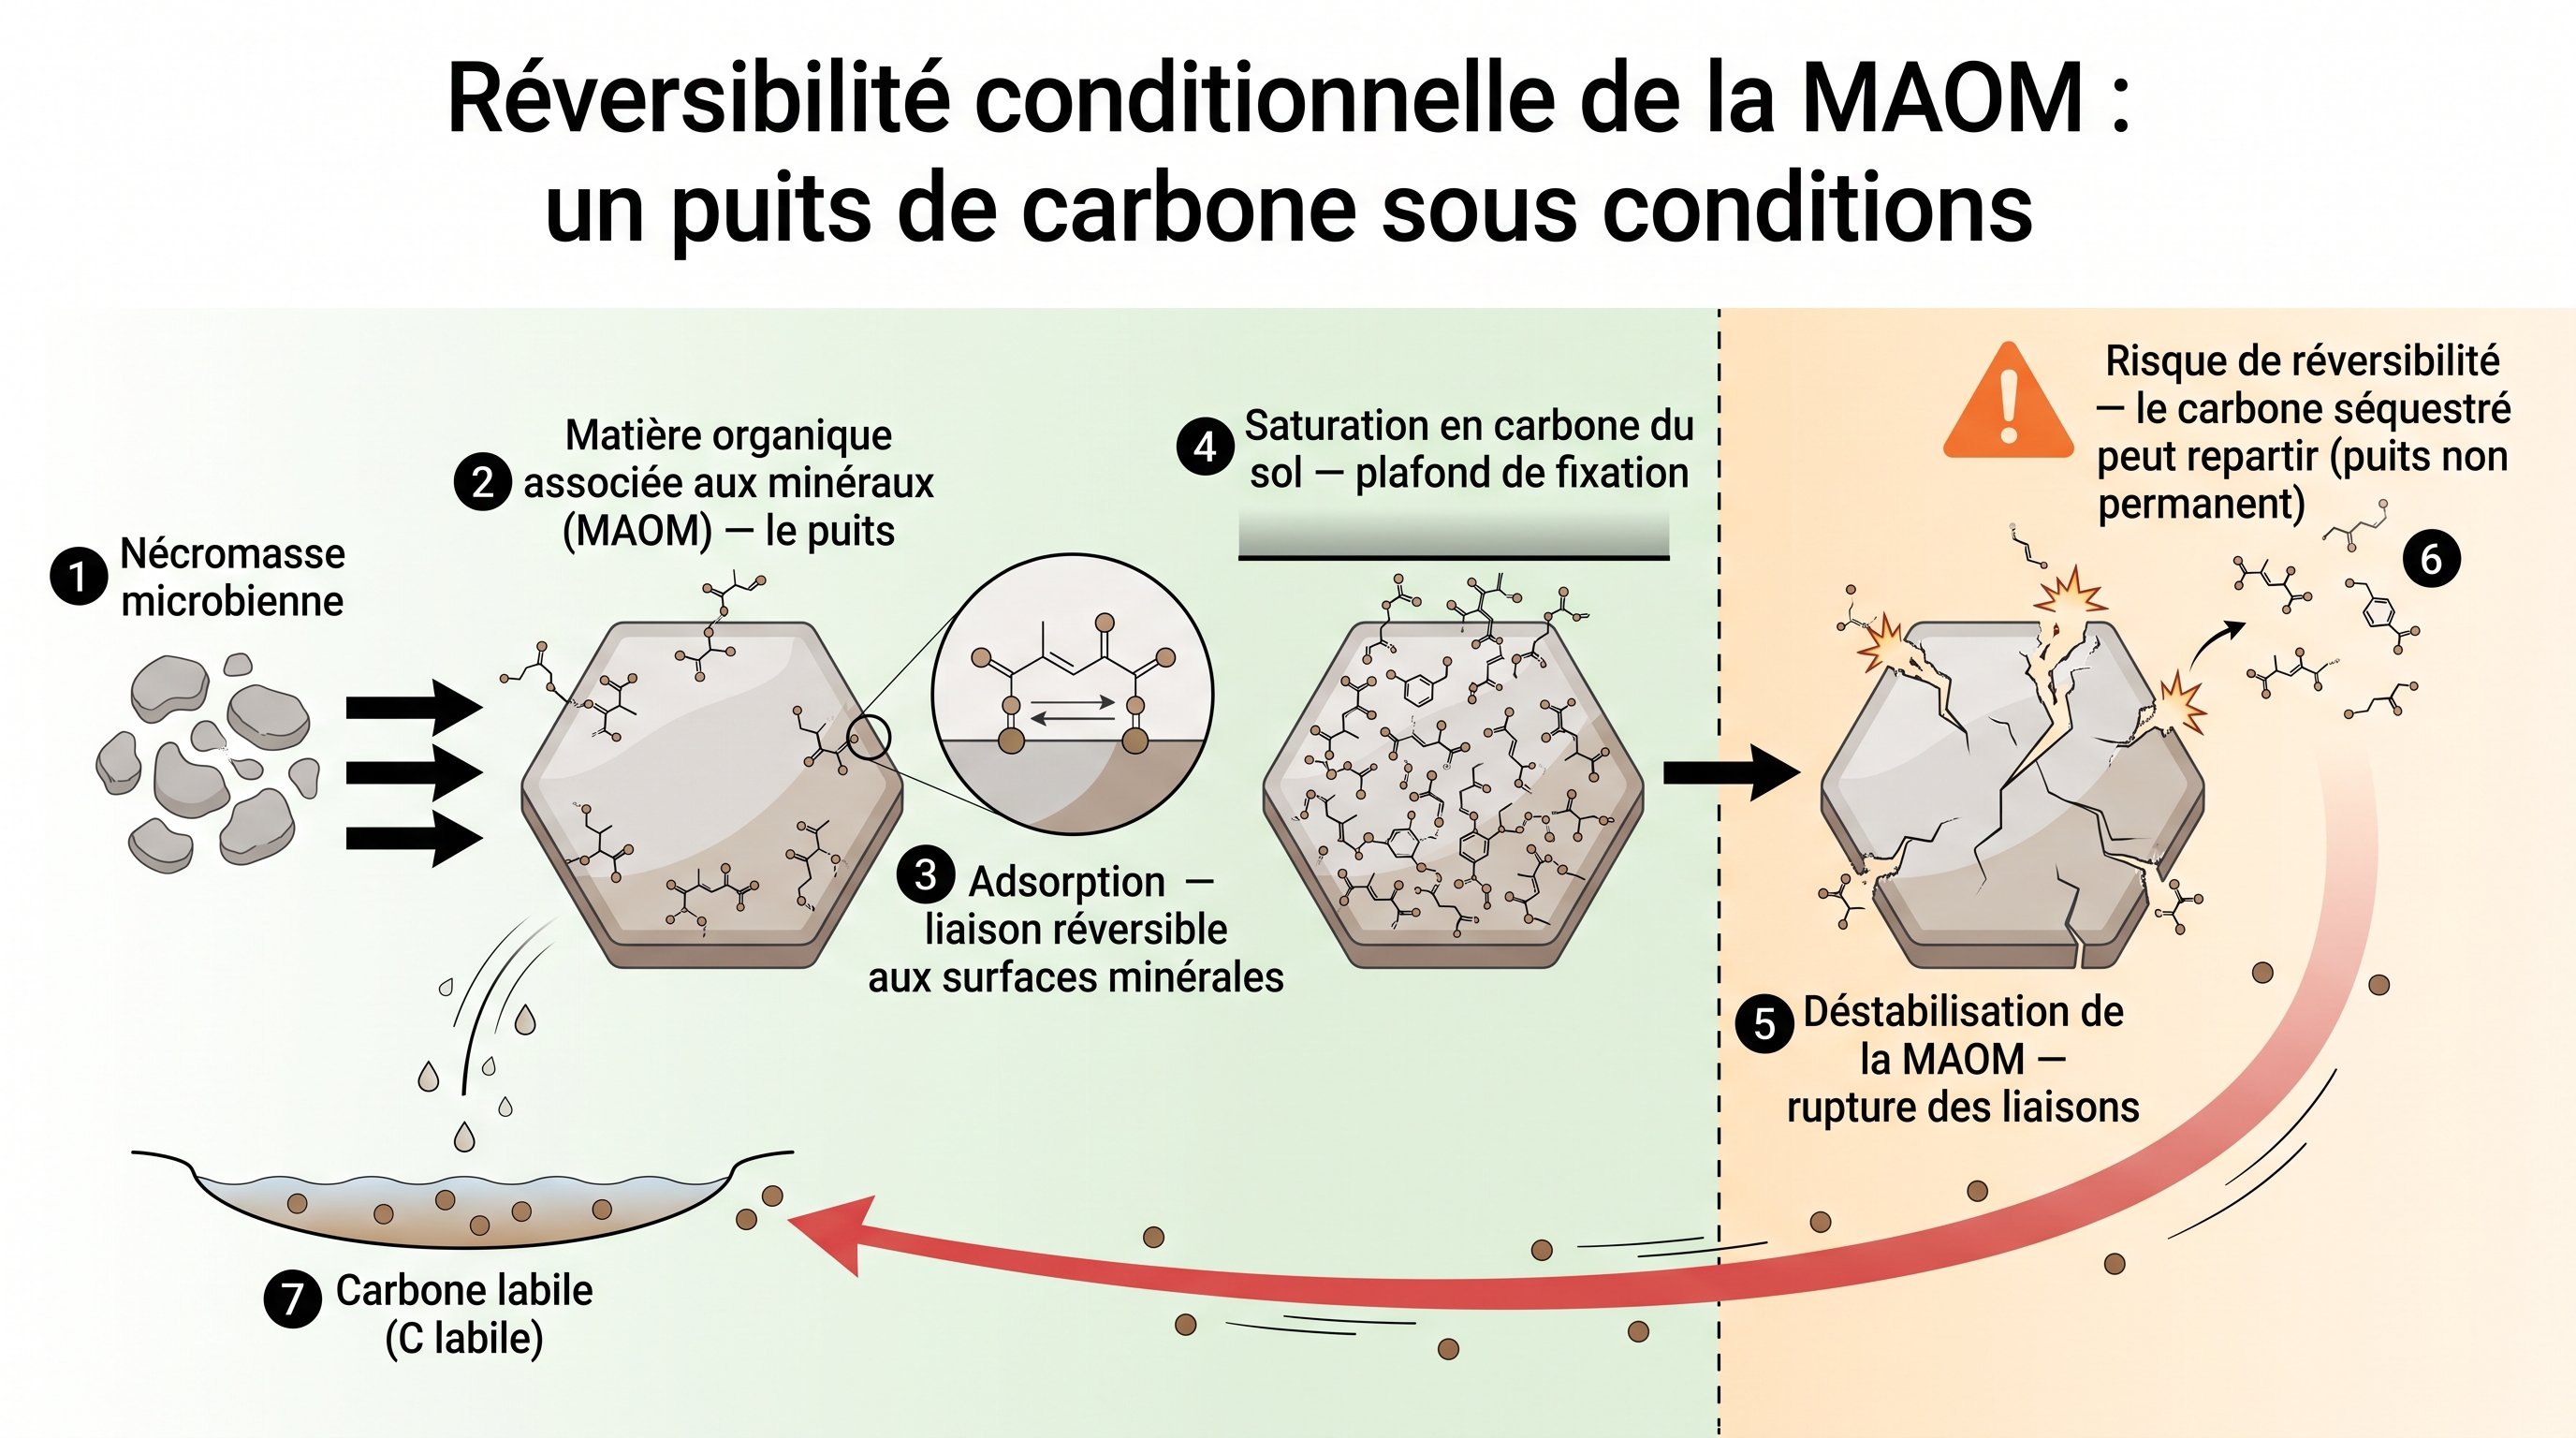
Science
- nécromasse microbienne (S2) : Point de départ : la nécromasse alimente le stock de matière organique stable
→ fiche #65 (pivot) · fiche #181 - matière organique associée aux minéraux (S2) : Le puits : la MAOM se forme par association organo-minérale
→ fiche #11 (cadre) · fiche #204 · fiche #256 (pivot) - adsorption (S1) : Le mécanisme de fixation : liaison réversible aux surfaces minérales
→ fiche #306 (pivot) - saturation en carbone du sol (S4) : Première condition-limite : la saturation plafonne la capacité de fixation
→ fiche #204 (pivot) - déstabilisation de la MAOM (S1) : Le renversement : rupture des liaisons, la MAOM se déstabilise
→ fiche #190 (pivot) · fiche #306 - risque de réversibilité (S4) : Le verdict : le carbone séquestré peut repartir (puits non permanent)
→ fiche #174 (pivot) · fiche #204 - C labile (S4) : La conséquence : le carbone remobilisé rejoint le pool labile
→ fiche #82 · fiche #256
C57 : Lecture des flux pF→Eh : de la tension hydrique au potentiel redox
Argument
Dans un sol, l'eau et l'air se disputent les mêmes pores : plus l'eau les remplit, moins l'oxygène circule. Les pédologues mesurent la force avec laquelle l'eau est retenue — une convention qu'ils notent pF : plus elle est élevée, plus l'eau est difficile à extraire. Quand le sol se gorge d'eau, l'oxygène vient à manquer et le milieu bascule de l'état oxique (aéré) vers l'état anoxique (privé d'air). Cette bascule se lit dans le potentiel redox, noté Eh, qui mesure l'intensité des échanges d'électrons : en manque d'oxygène, certains microbes changent d'« accepteur d'électrons » pour respirer. C'est ainsi que naissent, au cœur d'une terre pourtant aérée, des microsites anoxiques — de toutes petites zones privées d'oxygène.
Illustration : Fig. C57-A · C57 — Lecture des flux pF→Eh : de la tension hydrique au potentiel redox…
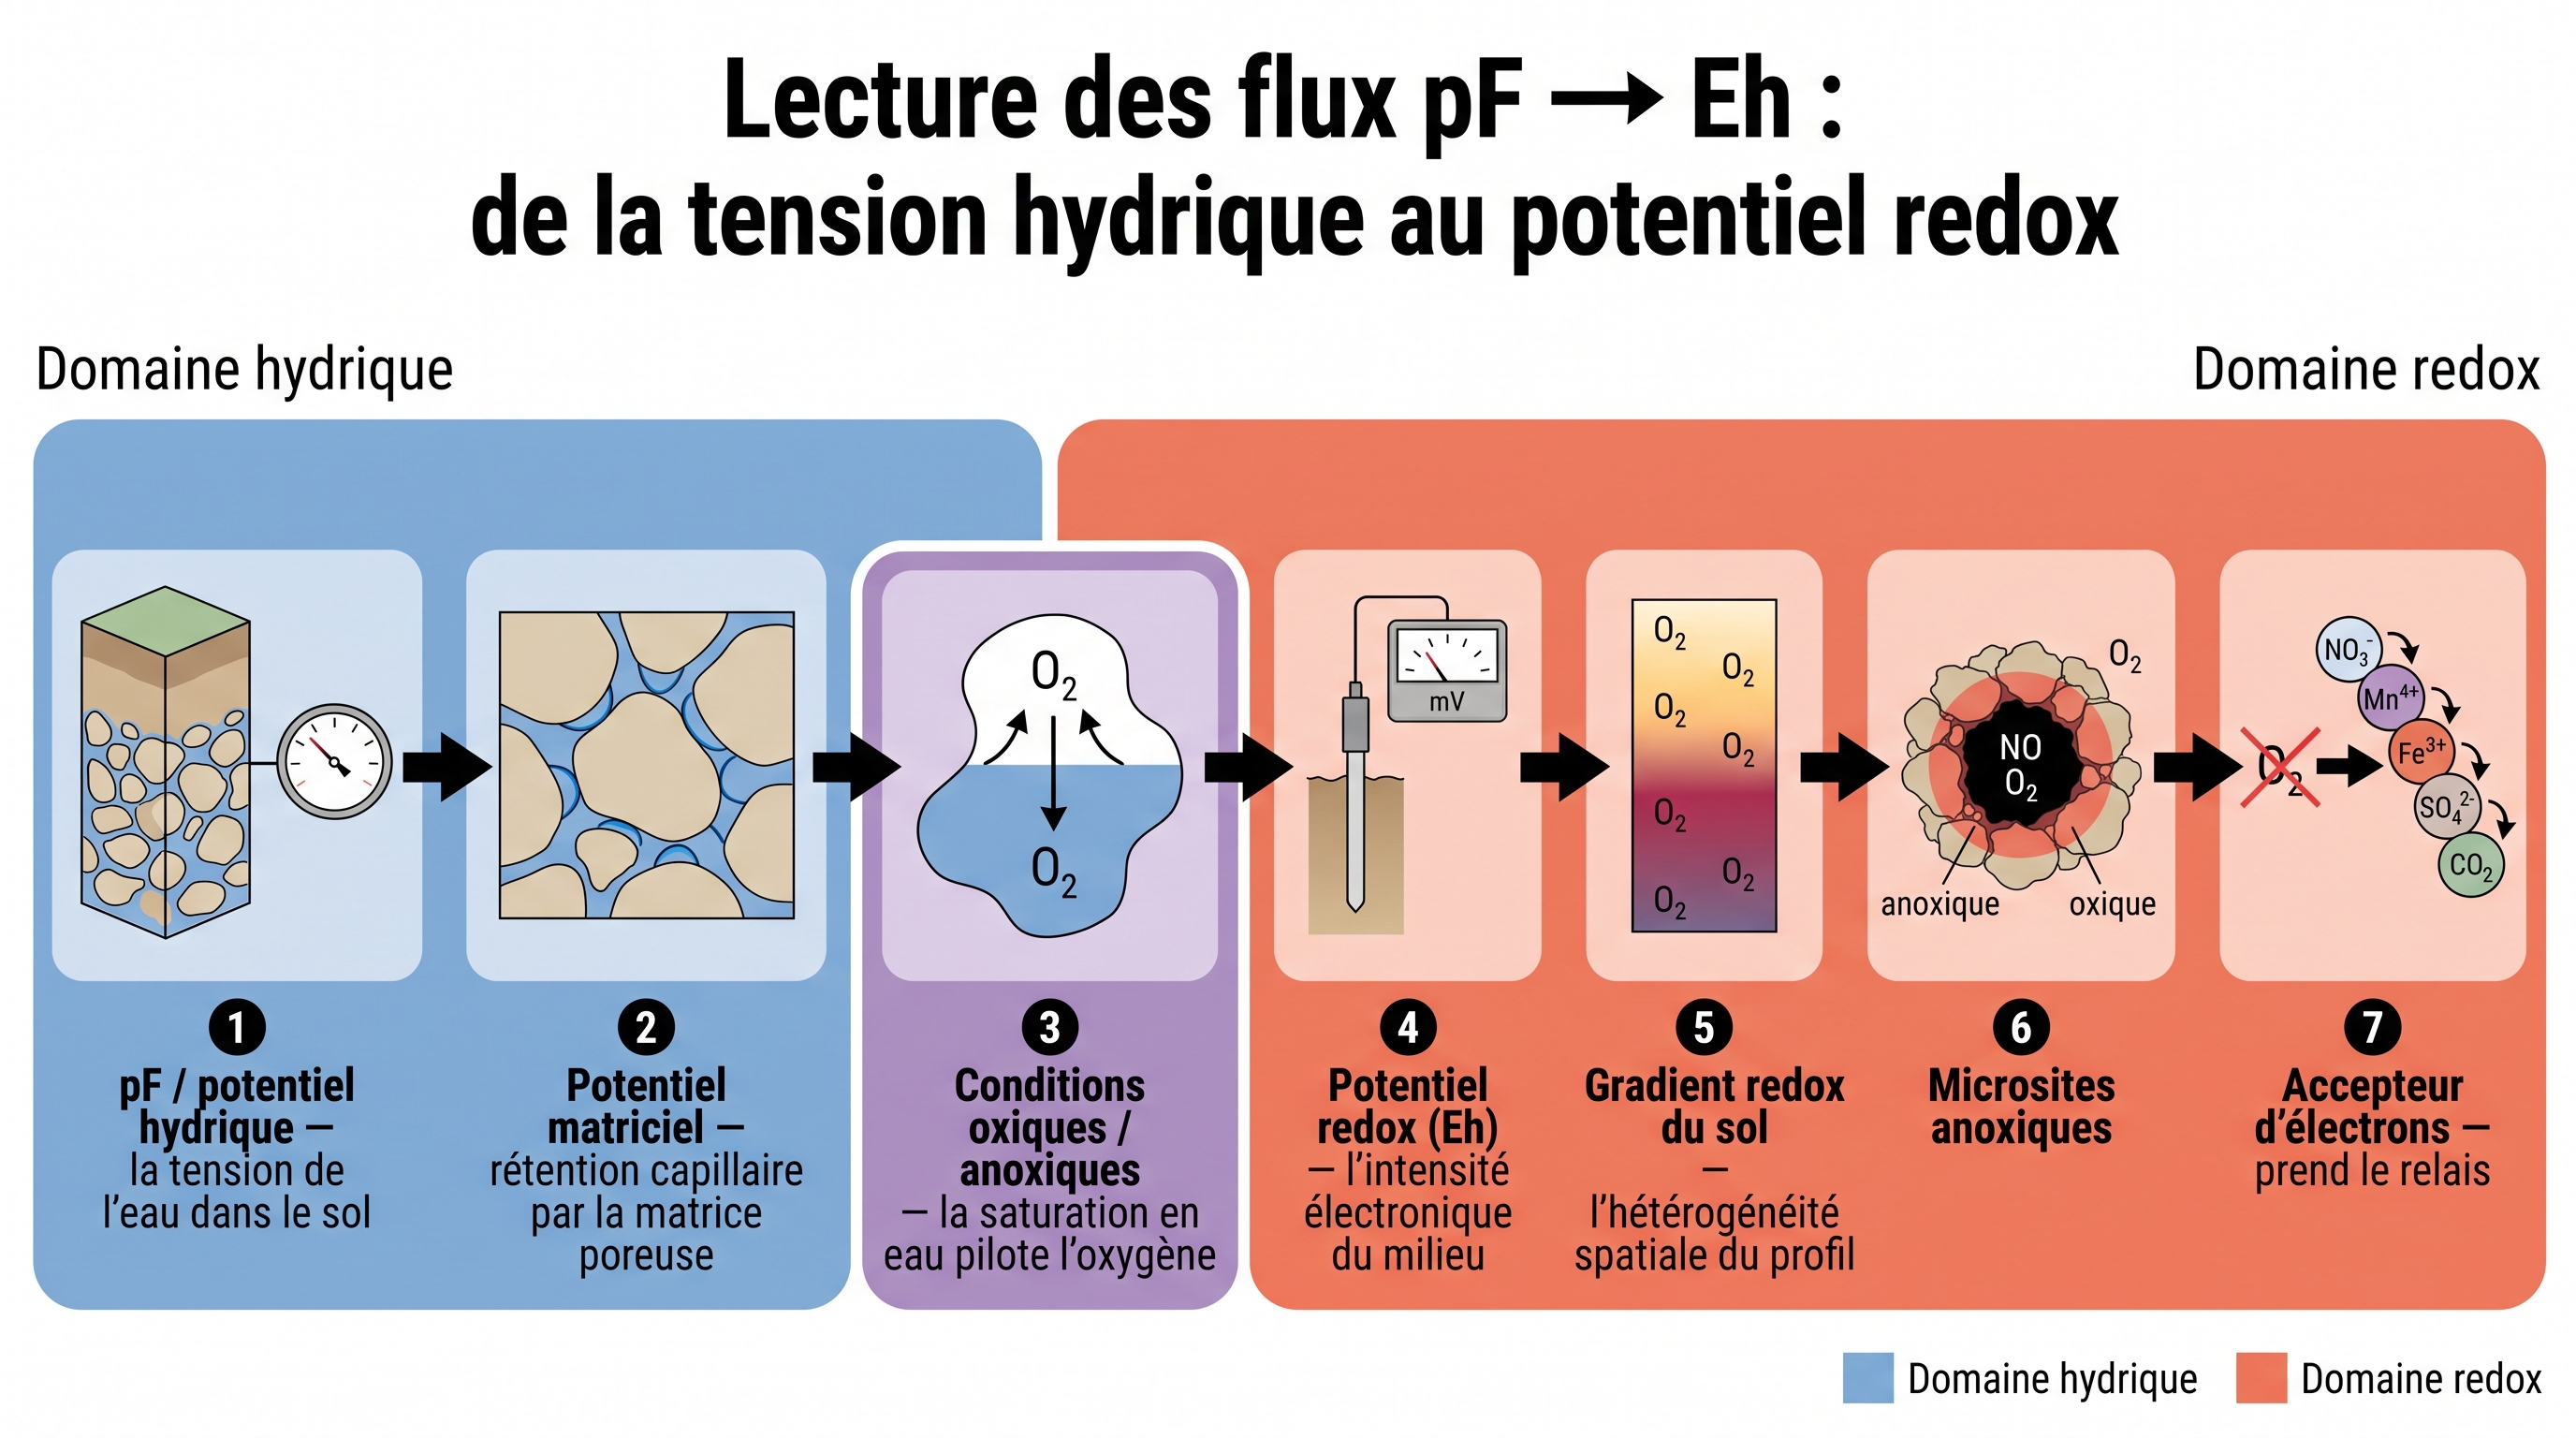
Science
- pF (S0) : Point de départ : la tension de l'eau, variable d'état hydrique
→ fiche #36 (pivot) · fiche #252 - potentiel hydrique (S0) : L'état énergétique de l'eau dans le sol (déclinaison du pF)
→ fiche #36 (pivot) - Potentiel matriciel (S0) : La rétention capillaire de l'eau par la matrice poreuse
→ fiche #36 (pivot) · fiche #252 - Conditions oxiques/anoxiques (S1) : Le pont : la saturation en eau détermine la disponibilité d'oxygène
→ fiche #121 · fiche #252 - potentiel redox (S4) : La sortie : le Eh traduit l'intensité électronique du milieu
→ fiche #23 (pivot) · fiche #114 - gradient redox du sol (S4) : L'hétérogénéité spatiale du redox dans le profil
→ fiche #23 · fiche #114 (pivot) - microsites anoxiques (S4) : Aboutissement : naissance des microsites anoxiques (bascule vers C42)
→ fiche #136 (pivot) · fiche #163 - Accepteur d'électrons (S4) : Conséquence finale : les accepteurs d'électrons prennent le relais
→ fiche #23 · fiche #268 (pivot)
C58 : Volatilité hydroclimatique → effet Birch → lixiviation des nitrates → pollution des nappes → eutrophisation → pollution des eaux
Argument
Sous un régime hydroclimatique devenu volatil — sécheresses et pluies intenses alternées —, le sol se comporte comme un réservoir d'azote retardé. Le pulse de minéralisation à la réhumectation (effet Birch) libère un azote que la plante absente ou débordée ne prélève pas ; la nitrification le convertit en nitrate mobile, et les pluies intenses l'entraînent vers les nappes puis les eaux de surface. La qualité de l'eau apparaît ainsi comme une variable dépendante du régime quantitatif : chaque extrême hydrique prépare une dégradation différée, avec des décennies de retard. En huit étapes, la chaîne relie la strate du sol (volatilité, minéralisation, lixiviation) à la strate humaine (eutrophisation, hypoxie, pollution des eaux) : le consommateur final des excès d'azote est le cours d'eau. À l'inverse, un sol qui stocke l'eau et reste couvert peut limiter l'entraînement des nitrates ; cette maîtrise reste partielle, car l'eau peut filer par des passages rapides sans être retenue.
Illustration : Fig. C58-A · C58 — Volatilité hydroclimatique → effet Birch → lixiviation des nitrates → pollution des nappes → eutrophisation → pollution des eaux…
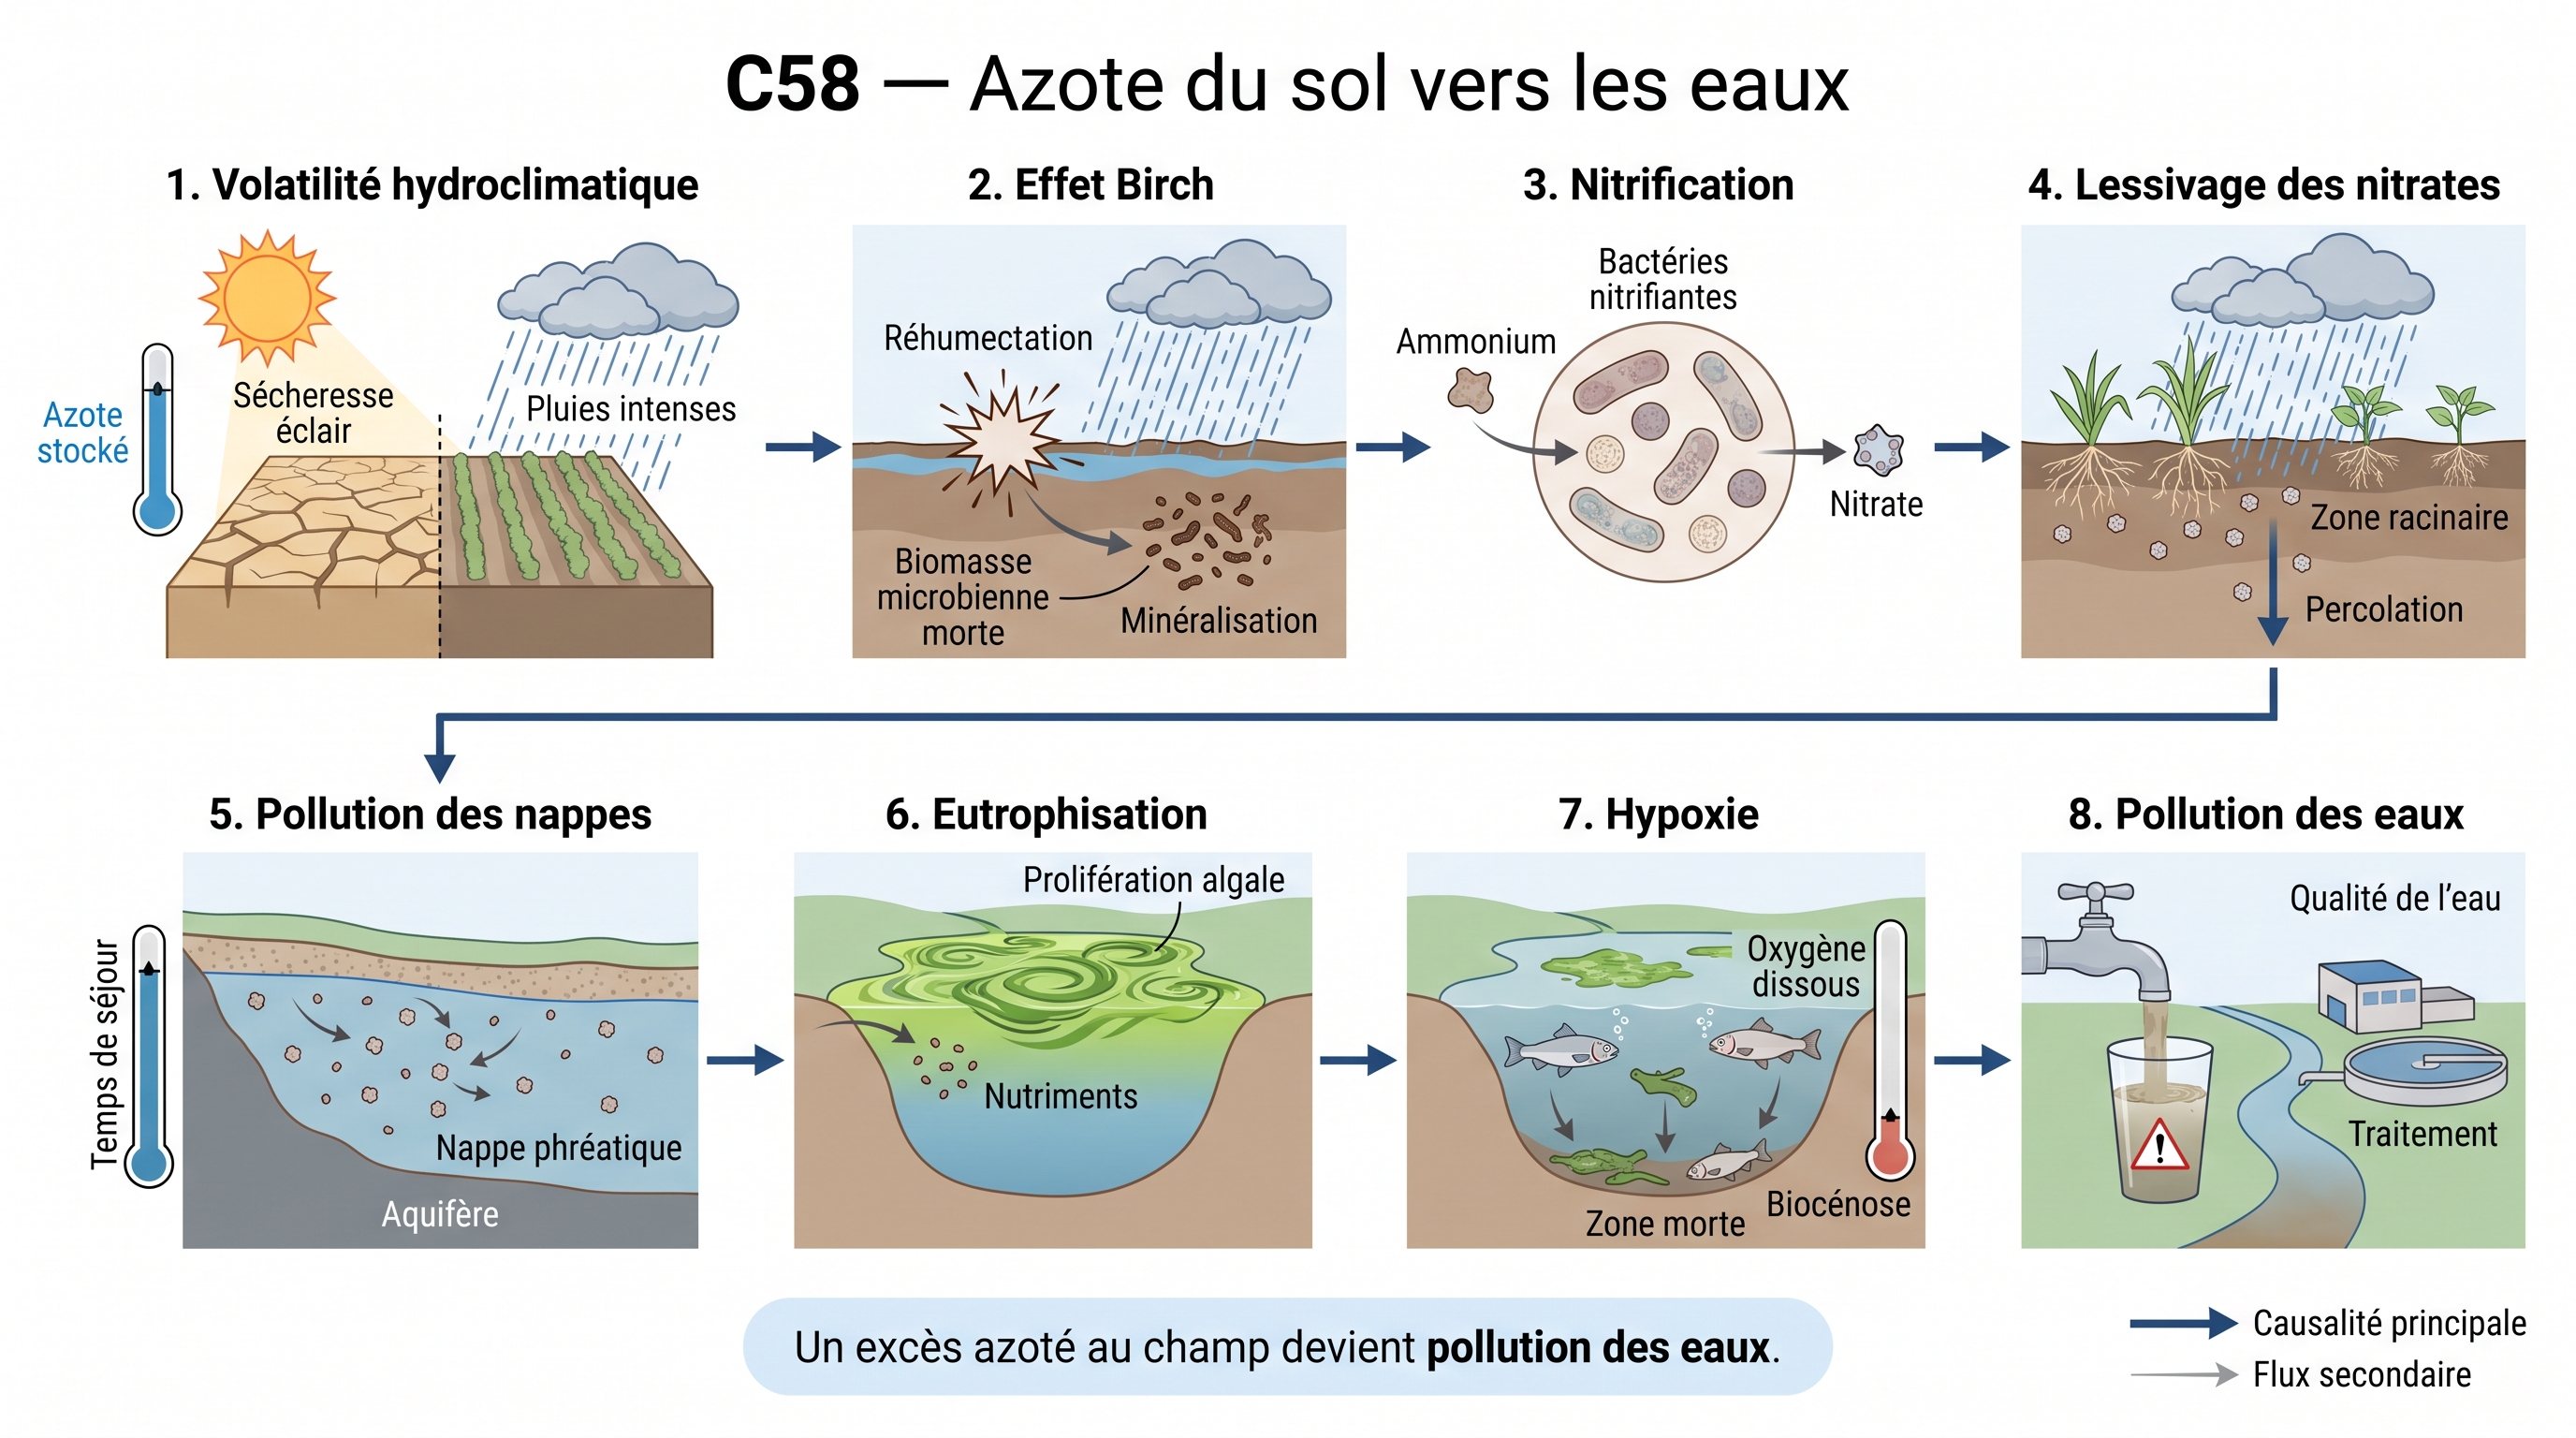
Science
- volatilité hydroclimatique (S) : L'alternance sécheresses éclairs / pluies intenses redistribue l'eau dans le temps au lieu de la délivrer en régime. Cette non-stationnarité arme le mécanisme : le sol emmagasine de l'azote pendant la phase sèche et le perd pendant la phase humide.
→ fiche #359 - effet Birch (S) : Le verrou biologique : à la réhumectation d'un sol sec, la biomasse microbienne morte se minéralise en pulse, libérant un azote minéral massif en quelques jours — avant que la plante, absente ou au ralenti, ne puisse le prélever. L'effet Birch transforme la sécheresse en bombe à retardement azotée.
→ fiche #234 - nitrification (S4) : L'oxydation microbienne NH4+ → NO3- convertit l'azote libéré en nitrate, forme mobile et peu retenue par le complexe absorbant : le château d'eau de la contamination. Sans cette transformation, l'azote resterait majoritairement adsorbé ; avec elle, chaque goutte qui percole devient vecteur.
→ fiche #151 · fiche #295 (cadre) - lessivage des nitrates (S) : Le transport : les pluies intenses qui suivent la réhumectation entraînent le nitrate au-delà de la zone racinaire, vers les couches profondes puis la nappe. La lixiviation est le produit conjoint du stock d'azote disponible et du régime pluviométrique — l'excès d'eau devient excès d'azote.
→ fiche #295 - pollution des nappes (S) : Le stockage souterrain : le nitrate entraîné s'accumule dans l'aquifère, où son temps de séjour se compte en décennies. La pollution des nappes est l'héritage azoté différé — les concentrations d'aujourd'hui paient les excès d'hier, et les nitrates d'aujourd'hui paieront ceux de demain.
→ fiche #314 - eutrophisation (H1) : Le relais de surface : les eaux drainées rejoignent cours d'eau et plans d'eau chargées de nutriments qui dérégulent leur biologie — proliférations algales, déséquilibres trophiques. L'eutrophisation est la traduction visible, paysagère, de la fuite invisible du champ.
→ fiche #295 - hypoxie (S) : L'étouffement : la décomposition des blooms algaux consomme l'oxygène dissous jusqu'à l'hypoxie — zones mortes, poissons asphyxiés, biocénoses appauvries. À l'étiage et en chaleur, le peu d'eau restante concentre à la fois les nutriments et la demande biologique en oxygène.
→ fiche #116 - Pollution des eaux (H1) : Aboutissement : la pollution des eaux agrège nitrate, pesticides et effluents en un seul verdict de qualité — potabilité dégradée, coûts de traitement, milieux dégradés. Le consommateur final des excès d'azote est le cours d'eau, et la facture remonte jusqu'au robinet.
→ fiche #314