Concept cards
300 cards — la rigueur du corpus. Recherchez une card ou choisissez une dimension : sa description s'affiche ici, dans cette page.
Coût réel de l'énergie fossile et 'esclaves énergétiques'
Chaque machine, chaque intrant concentre l'équivalent de nombreux travailleurs invisibles mis à notre service.
Cette grille révèle ce que la facture monétaire masque : le vrai coût énergétique de l'agriculture ne vient pas du carburant qu'on voit brûler, mais de l'engrais azoté fabriqué en usine à partir du gaz. Le fossile, anormalement bon marché, fausse toute comparaison.
Le levier devient limpide : substituer à cette énergie achetée l'énergie que le vivant fabrique sur place — les légumineuses et leurs bactéries fixent l'azote de l'air, gratuitement, sans usine ni pétrole.
Science
Cadre de comparaison : un « esclave énergétique » (Jancovici / Shift Project) traduit l'énergie d'un intrant en équivalent de travail humain — un humain ne soutient que ~80-100 W, si bien qu'un tracteur de 100 kW concentre l'équivalent d'environ 1000 paires de bras (Jancovici, 2015). Le poste dominant n'est d'ailleurs pas le carburant visible mais l'engrais azoté (Haber-Bosch). Cette grille rend visible le coût énergétique réel — énergie externe, exergie, externalités (dette écologique) — que masque la facture monétaire : le fossile est anormalement bon marché (un litre de gazole coûte moins qu'une heure du travail qu'il remplace), ce qui fausse toute comparaison conventionnel vs régénératif. Levier : substituer l'énergie achetée par l'énergie fabriquée sur place par le vivant (fixation symbiotique de l'azote). Développé dans fiche #94 et fiche #259.
Cards en dialogue (10)
- Approfondi par
- Voir aussi (9)
-
- Temporalité, irréversibilités et entropie des pratiques humaines
- Socio-économique : travail, filières, risques et dépendances
- Transition : chronoséquence 4 phases et indicateurs de suivi
- Cascade des coûts cachés : €0 direct → €5 civilisationnel (qui paye, et quand)
- Souveraineté azote-fertilisation : l'autonomie nationale face à la dépendance Haber-Bosch
- MRV crédits carbone biominéraux : certification de la séquestration C inorganique pérenne
- EROI : retour énergétique des systèmes agricoles (énergie utile / énergie investie)
- Fragilité systémique fossile : la dépendance aux intrants de synthèse comme point de rupture
- Révolution verte : Haber-Bosch, blé nain et modernisation agricole
Temporalité, irréversibilités et entropie des pratiques humaines
Détruire un sol est rapide — érosion, perte de structure, brûlage de la matière organique stabilisée. Le reconstruire prend des siècles, voire des millénaires pour un simple centimètre : un gain d'aujourd'hui payé par la perte d'un capital hérité est une fausse économie. La physique le rappelle à sa manière : disperser un stock d'énergie et de matière accumulé lentement est irréversible à l'échelle d'une vie. Avant d'adopter un geste, une question s'impose : combien de temps faudra-t-il pour revenir en arrière ?
Science
Cadre : tout bilan agronomique doit expliciter ses échelles de temps et ses irréversibilités. L'asymétrie est la règle — la destruction est rapide (érosion, perte de structure, minéralisation de la matière organique stabilisée), la reconstruction lente : un sol se forme en ~100 à 1000 ans/cm, et la coévolution sol-plante-microbe s'est jouée sur ~450 Ma (fiche #26). Le second principe (entropie) donne un sens matériel aux pratiques : dilapider un stock de matière organique stabilisée hérité ou réduire une forêt en broyat peut être incohérent selon le bilan matière/énergie. Un gain immédiat payé par une perte de capital long est une fausse économie. Usage : juger une pratique sur la trajectoire et le temps de reconstruction qu'elle engage, pas sur l'effet de l'année (fiche #72).
Cards en dialogue (9)
- Approfondi par
- Voir aussi (8)
-
- Histoire des sols : désastres et réussites (Croissant fertile, Nil, Terra Preta, Milpa)
- Transition : chronoséquence 4 phases et indicateurs de suivi
- Cascade temporelle : T0 instantané → T5 géologique (à quelle échelle ça se joue)
- Coût réel de l'énergie fossile et 'esclaves énergétiques'
- Évolution du vivant : monde anaérobie → photosynthèse → oxygénation → respiration (cadre redox)
- Cycle 5 étapes d'érosion civilisationnelle (200-2000 ans)
- Résilience
- Pédogenèse et CLORPT : les cinq facteurs de formation des sols
Types de sols et comportements différenciés
La différence tient au type de sol — sa texture (sable, limon, argile), sa minéralogie, son calcaire, son engorgement en eau.
Le mécanisme est simple à retenir. Une argile s'auto-structure : ses feuillets chargés se lient entre eux par des ponts de calcium et de magnésium. Un sable, lui, est instable par nature ; il n'agrège que s'il trouve des ciments extérieurs (oxydes de fer et d'aluminium, calcium échangeable).
Conséquence pratique : avant de conclure à une carence ou de transposer une recette, passez toute règle de diagnostic au filtre du type de sol. C'est la boussole de cette série de fiches.
Science
Cadre : à mêmes apports et mêmes pratiques, les effets diffèrent radicalement selon la texture (sable/limon/argile), la minéralogie, le calcaire actif et l'hydromorphie. Mécanisme : un sol argileux s'auto-structure via les ponts cationiques entre ses feuillets chargés (Ca²⁺, Mg²⁺ — et se disperse au contraire en contexte sodique), tandis qu'un sol sableux est intrinsèquement instable et dépend de « verrous » externes — sesquioxydes de fer/aluminium et calcium échangeable — pour agréger (fiche #111). La dispersion échappe aux indices classiques (SAR, CROSS) : le rapport de charge cationique CROSSc intègre la chimie variable des sols et des eaux (Rengasamy, 2025), tandis que CROSS et le pourcentage dispersif échangeable (EDP) convertissent les effets dispersifs du K et du Mg en équivalent Na (Zhu, 2019). L'agrégation des sables repose sur la cimentation par apport de roche tendre argileuse, via les composés fer-aluminium (Cao, 2023 ; Sun, 2023). Côté carbone, la stabilité dépend de la fraction minérale fine : le carbone associé aux minéraux (MAOC) est plus persistant, et sa capacité relève d'un plafond effectif qui émerge des conditions pédo-climatiques plutôt que d'un maximum universel fixé par la minéralogie (Breure, 2025 ; Georgiou, 2025). Conséquence : un même amendement stabilise durablement l'un et se minéralise sans laisser de structure dans l'autre. Usage : filtrer toute règle de diagnostic par le type de sol avant de conclure à une carence ou de transposer une recette.
Cards en dialogue (10)
- Approfondit
-
- Profil sol sableux : plafond MAOM bas, marge structurale maximale, métastabilité biologique
- Profil sol argileux : potentiel élevé mais risques redox si enfouissement et excès d'eau
- Profil sol limoneux : battance/érosion, priorité couverture et biofilms de surface
- Profil sol calcaire/argilo-calcaire : calcium structurant, risques de blocages P/oligo
- Profil sol hydromorphe/organique : redox bas, émissions, gestion de l'eau centrale
- Profil sol 'franc' (loam) : effets intermédiaires, sensibilité au travail du sol
- Diagnostic terrain intégré : du profil bêché au tableau de bord biologique
- BCSR vs SLAN : doctrine équilibre cationique et limites du système Albrecht
- Calibration régionale du diagnostic de santé du sol : SMAF/CASH/SHAPE et groupes de pairs
Histoire des sols : désastres et réussites (Croissant fertile, Nil, Terra Preta, Milpa)
D'un côté, la dégradation : érosion, salinisation (accumulation de sel dans les terres irriguées), irrigation mal conduite, déboisement, perte de fertilité. De l'autre, des systèmes qui durent, en gardant le sol couvert et en y recyclant la matière organique.
La leçon tient dans ce contraste : il n'y a pas de fatalité. Les trajectoires qui maintiennent la fertilité misent sur la continuité de couverture, la diversité des plantes et le retour du carbone au sol ; les autres simplifient et surexploitent.
Comparer ces histoires, sans idéologie, fait ressortir exactement les mécanismes que la science du sol mesure aujourd'hui : le carbone, l'eau, la structure.
Science
Objectif : ancrer les diagnostics (pédologie + eau + redox + pratiques) dans des trajectoires historiques, pour valider et illustrer les mécanismes.
On ne compare pas des systèmes agricoles sans intégrer l'érosion, la salinisation, l'irrigation mal gérée, le déboisement, la perte de structure, la baisse de fertilité, la désertification. À l'inverse, documenter les systèmes qui maintiennent ou accroissent la fertilité (Nil, Terra Preta, Milpa) — à l'inverse des trajectoires de dégradation (salinisation du Croissant fertile ; trajectoire débattue — Jacobsen et Adams, 1958 ; Powell, 1985) fait ressortir des invariants mécanistiques : continuité de couverture, flux de carbone, diversité, polyculture/agroforesterie (le biochar/MAOM étant spécifique des anthrosols pyrogéniques type Terra Preta).
Usage : comparer sans idéologie, en identifiant ces invariants.
Cards en dialogue (10)
- Approfondi par
- Voir aussi (7)
-
- Évolution du vivant : monde anaérobie → photosynthèse → oxygénation → respiration (cadre redox)
- Chantier de reconstruction d'un sol sableux structurellement vide : doctrine intégrée
- Cycle 5 étapes d'érosion civilisationnelle (200-2000 ans)
- Temporalité, irréversibilités et entropie des pratiques humaines
- 450 Ma de coévolution plante-microbe : cadre temps-profond trois piliers
- Biochar : architecte de sol (habitat, CEC, C stable)
- Effondrement agraire : trajectoire cumulative, pas événement
Redox central : gradients, microzones et 'redox ladder'
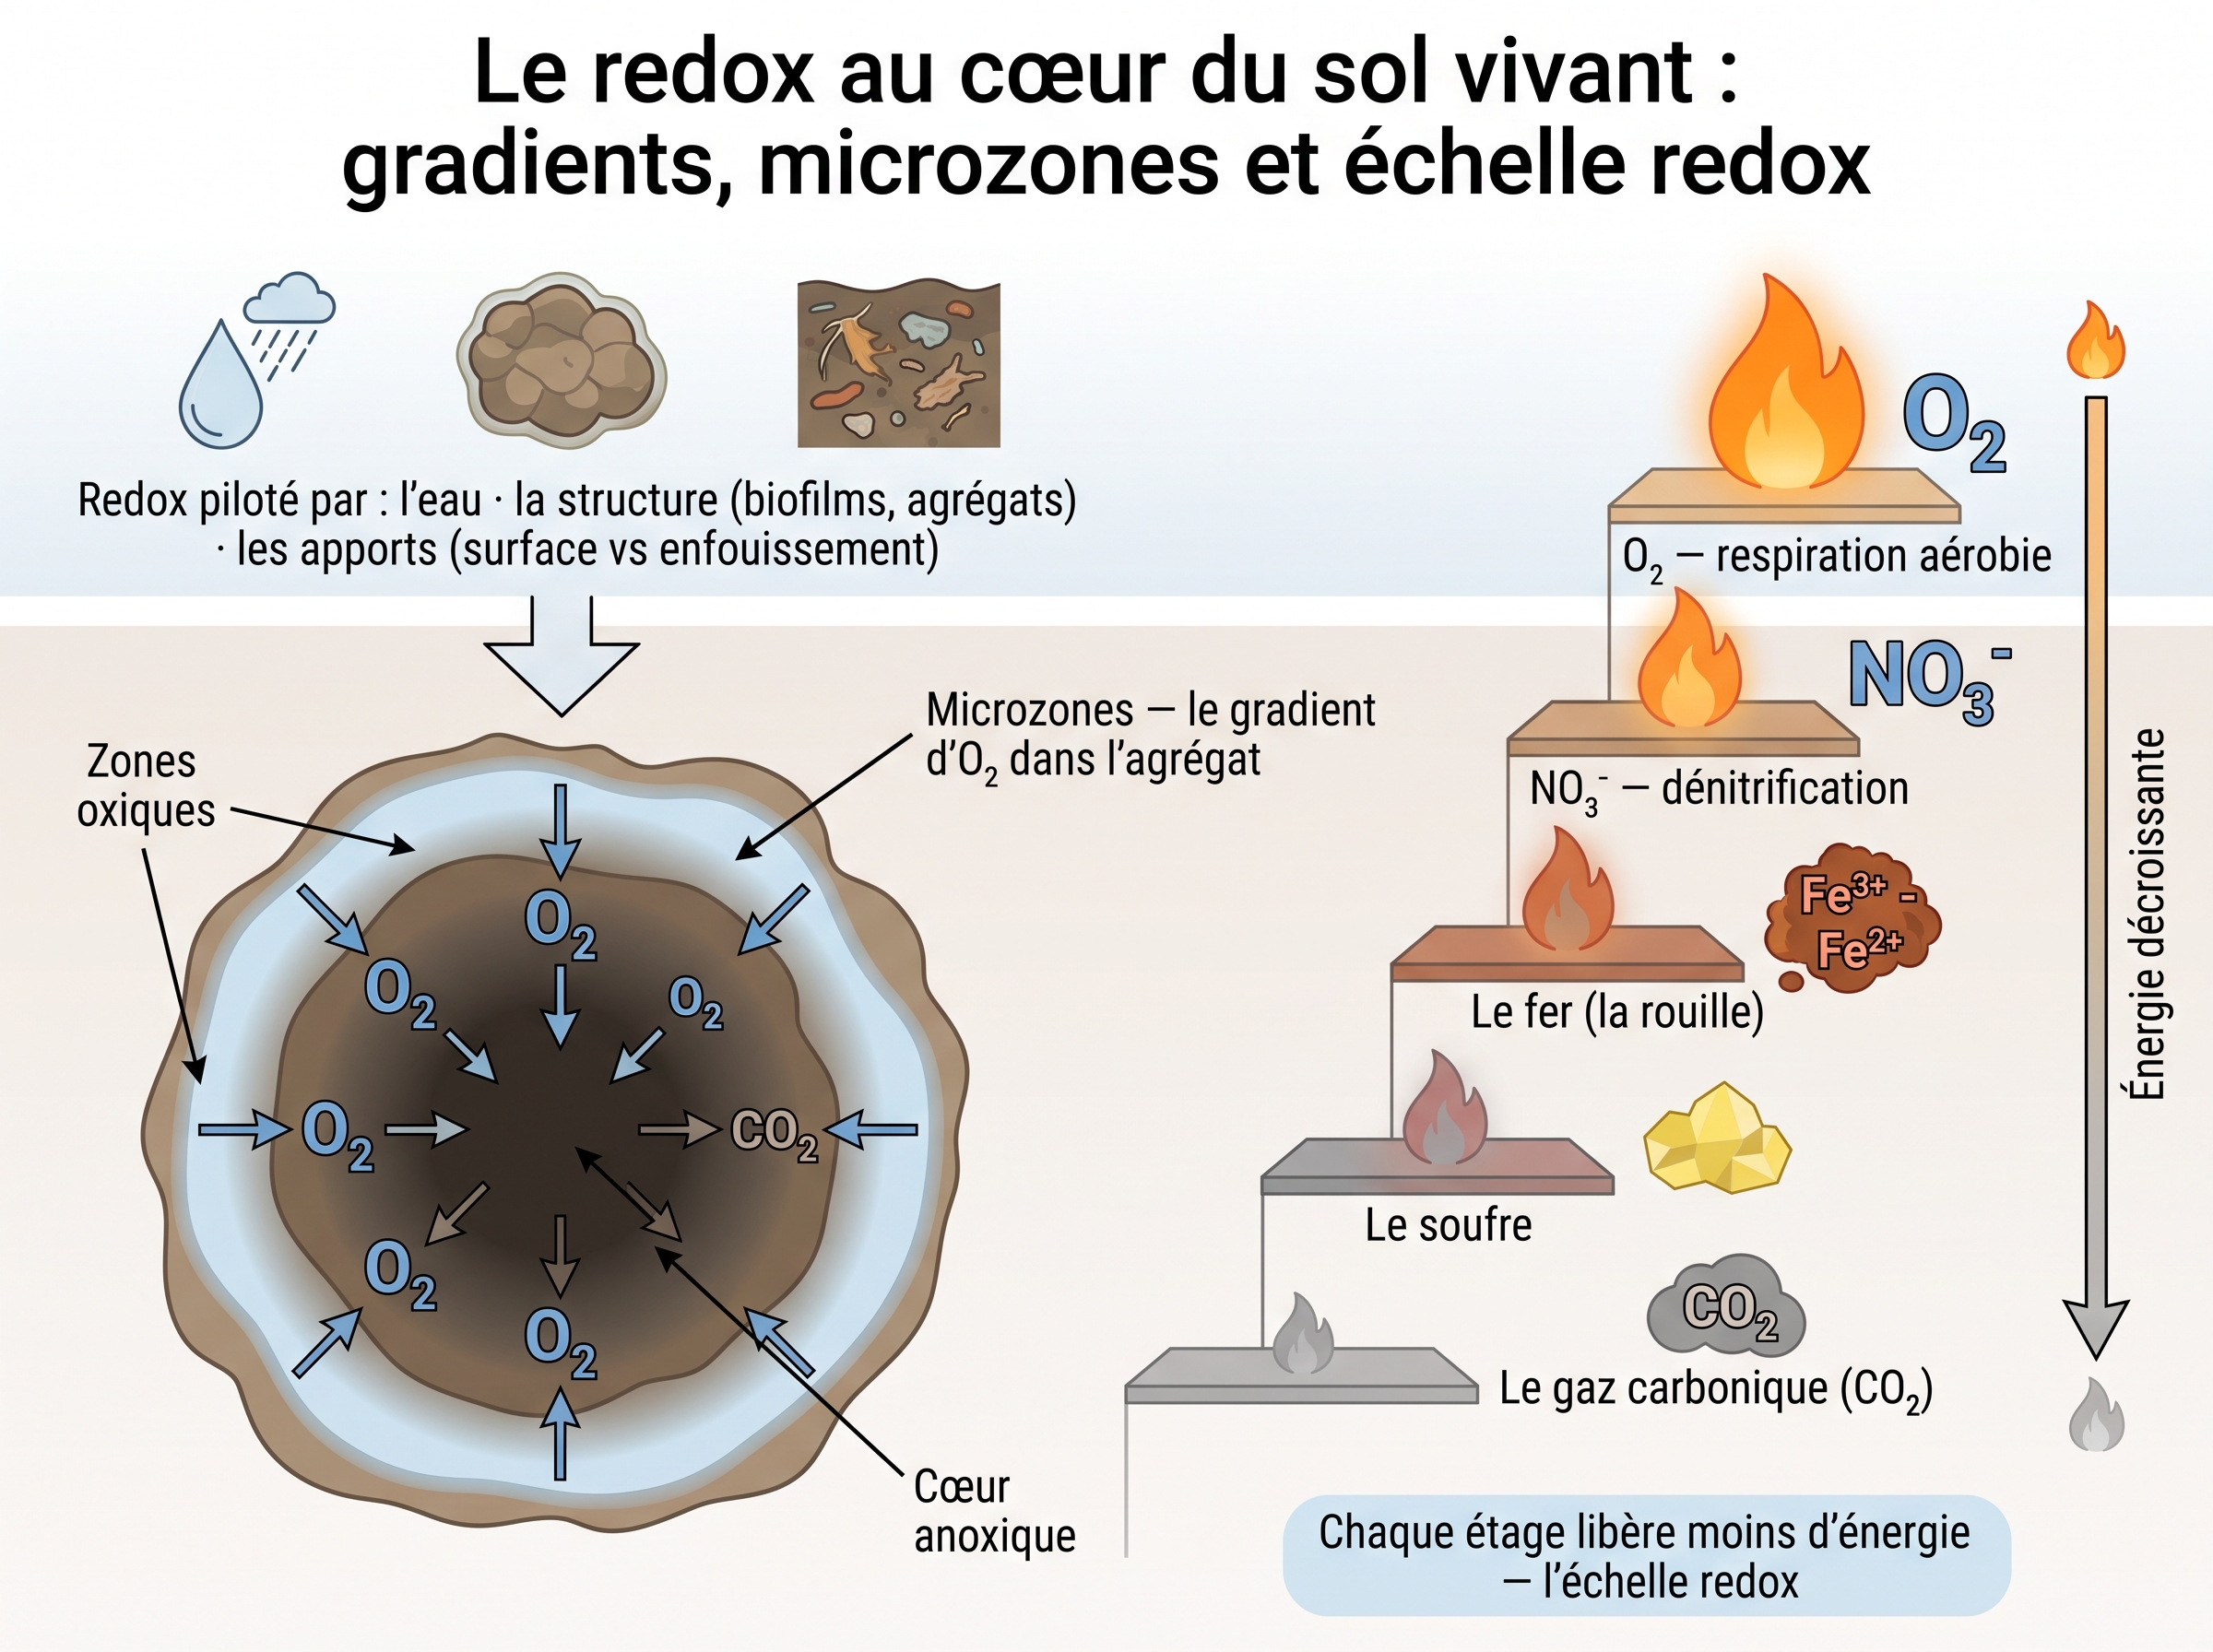
Mais quand l'eau ou la compacité chasse l'oxygène, ils changent de carburant — c'est la clé de lecture du sol vivant.
Ce changement suit un ordre précis : d'abord l'oxygène, puis le nitrate, puis la rouille (le fer), puis le soufre, enfin le gaz carbonique. Chaque étage libère moins d'énergie : c'est une échelle de carburants de plus en plus pauvres, que les spécialistes appellent l'échelle redox.
Cette cascade ne se produit pas dans tout le sol d'un coup, mais dans de minuscules zones privées d'air, au cœur d'une motte ou après une pluie. Raisonner par cette échelle, c'est comprendre où et quand chaque processus — dénitrification, fermentation, gaz à effet de serre — peut démarrer.
Illustration : Fig. card 5-A · Redox central : gradients, microzones et 'redox ladder'…
Science
Cadre : raisonner par gradients Eh/O2 et microzones. Les voies microbiennes (respiration, dénitrification, fermentation, méthanogenèse…) dépendent du redox, qui est piloté par l'eau, la structure (biofilms/agrégats) et les apports (surface vs enfouissement).
Échelle redox : séquence des accepteurs d'électrons :
- À mesure que l'O₂ s'épuise, les micro-organismes basculent vers les accepteurs suivants par rendement énergétique décroissant : O₂ (respiration aérobie) → NO₃⁻ (dénitrification) → Mn⁴⁺ → Fe³⁺ (ferri-réduction) → SO₄²⁻ (sulfato-réduction) → CO₂ (méthanogenèse).
- Cette échelle thermodynamique ordonne dans l'espace (microzones d'un même agrégat) et dans le temps (heures-jours après une pluie) les voies métaboliques et la spéciation des éléments — card #166 pour les domaines Eh-pH, card #76 pour la capacité tampon.
Limites méthodologiques de la mesure EH
- Potentiel mixte : l'équilibre thermodynamique parfait n'est quasiment jamais atteint dans les sols. L'Eh mesuré par une électrode de platine est souvent un "potentiel mixte" résultant de la somme de plusieurs réactions hors-équilibre (Fiedler et al., 2007).
- Artefacts de mesure : sensibilité à la température (cycles diurnes de l'Eh jusqu'à 200 mV sans lien avec l'activité microbienne) et aux ondes électromagnétiques (Dorau 2021, Rousselot 2012).
- Implication : une mesure Eh ponctuelle doit être contextualisée, pas prise pour vérité absolue.
Cinétique du réhumectage — découplage chimie/biologie
- Lors d'un réhumectage (effet Birch), les microbes peuvent mettre plusieurs heures à se réactiver alors qu'un pic de CO₂ est détecté immédiatement (Liu 2025).
- Ce pic initial est classiquement attribué au stress osmotique microbien et à la minéralisation de cytoplasme/nécromasse (Birch 1958 et successeurs) ; une composante abiotique (oxydation chimique, dissolution de minéraux) existe mais est généralement tenue pour minoritaire.
- Un modèle à deux phases est proposé (Liu 2025) : (1) flash abiotique minutes-heures, (2) respiration microbienne heures-jours — la part abiotique restant débattue. À distinguer pour interpréter les flux mesurés.
Cas particuliers
- Sols sulfatés acides : risque de formation d'acide sulfurique lors du drainage de sols anoxiques riches en pyrite (FeS₂ → Fe(OH)₃ + H₂SO₄). Enjeu critique de gestion redox (Berkowitz & VanZomeren 2020).
- Bioremédiation : la thermodynamique redox régit la dégradation des polluants organiques (déchloration réductrice) (Borch, 2010), la mobilité de l'antimoine, arsenic et autres métalloïdes (Markelova 2016).
- Cf card #76 (rH2, capacité redox) pour les paramètres avancés.
Cards en dialogue (32)
- Approfondit
- Approfondi par
-
- Biostimulation indigène KNF/JADAM et thermodynamique redox
- rH2, capacité redox et poising capacity : au-delà de l'Eh ponctuel
- Bactéries ferro-réductrices : Geobacter, Shewanella et la respiration dissimilatoire du fer
- Couplages biogéochimiques Fe-P-S-N sous alternance redox : vivianite, NDFO et gouvernance des nutriments
- Eh terrain : sondes redox, gradient mV/cm et méthode in situ
- Mémoire redox et noyaux de réduction persistants : la dimension temporelle des microzones anoxiques
- Bascule paradigme microzones anoxiques : demande biologique vs géométrie de l'agrégat
- Voir aussi (24)
-
- Mode d’application : surface vs incorporation (profondeur) change le diagnostic
- Hydrique & redox → stress / microzones → stratégies
- Profil sol argileux : potentiel élevé mais risques redox si enfouissement et excès d'eau
- Profil sol hydromorphe/organique : redox bas, émissions, gestion de l'eau centrale
- Évolution écologique du sol : sol nu → climax, stratégies microbiennes r/K et Y-A-S (cadre diagnostique)
- Asphyxie / anaérobie locale (odeurs, horizons réduits)
- Excès de C très fermentescible (odeurs, chauffe, instabilités)
- Archées : troisième domaine écologiquement distinct dans le sol
- PNSB (Purple Non-Sulfur Bacteria) : Rhodopseudomonas et la biofertilisation photosynthétique multi-fonctionnelle
- Toxicité ferreuse en sols hydromorphes : stress oxydatif, mobilité Cd/As et stratégies AWD
- Fenton-like et radicaux hydroxyles dans les sols : oxydation abiotique de la MAOM et flux CO₂ non microbien
- Films IRIS et imagerie redox 2D : cartographier les microzones réductrices au-delà des électrodes ponctuelles
- AOA, AOB et comammox : les trois guildes nitrifiantes, partage de niche et implications agronomiques
- Diagramme Eh-pH (Pourbaix) : domaines de stabilité et spéciation redox des éléments
- Oxydes Fe/Al
- Méthanogènes
- Anaérobiose
- Méthanogenèse
- N₂O : émissions agricoles, mécanismes et mitigation
- Bactéries câbles : l'électricité longue distance du sol
- Couleur du sol : code Munsell et lecture chromatique du profil
- Riz noyé : la racine fabrique sa microzone oxydée (ROL, plaque ferrique)
- Biosphère profonde : Desulforudis audaxviator, la vie habite la roche
- Croix redox : lire la santé végétale en diagonale (pe+pH)
Eau facteur limitant : potentiel, continuité hydraulique, diffusion des gaz
Les agronomes parlent d'un continuum sol-plante-atmosphère (SPAC) — l'eau circule sans frontière du sol aux feuilles, puis s'évapore dans l'air.
Cette eau porte les nutriments dissous, nourrit les micro-organismes et règle la respiration du sol : trop d'eau chasse l'oxygène, trop peu bloque la vie. Le vrai réservoir, c'est la continuité de ce réseau — un sol vivant se comporte comme une éponge qui retient l'eau de pluie (l'« eau verte ») au lieu de dépendre de l'irrigation (l'« eau bleue », finie).
Le réflexe utile : avant de conclure à une carence, regarder d'abord comment l'eau circule dans ce sol-là.
Science
Cadre : l'eau gouverne presque tout, et c'est le potentiel (énergie de rétention) bien plus que la teneur qui compte. Pensé comme un continuum sol-plante-atmosphère (SPAC, fiche #36), modélisable par jumeau numérique (Zeng, 2024), il commande la diffusion de l'O₂/CO₂ (donc le redox), la mobilité des solutés, l'activité microbienne et racinaire et la stabilité structurale. La continuité hydraulique — non la quantité brute — détermine le disponible : un sol vivant agit comme une éponge, retenant 10-30 % d'agrégats stables à l'eau (> 2 mm) de plus qu'un sol conventionnel (Tangen, 2025). La réserve en eau utile (AWC), paramètre le plus influent des modèles à réservoir, n'a pourtant pas de définition unique : laboratoire, terrain, fonctions de pédotransfert ou inversion de modèles (Cousin, 2022). La transpiration végétale assèche les horizons superficiels, abaisse leur conductivité hydraulique et freine l'infiltration, préservant la succion en profondeur (Tarantino, 2023). Les systèmes à racines vivantes, couvert persistant, rotations diversifiées et perturbation minimale corrèlent avec agrégats stables et macropores ; mais les pluies intenses peuvent provoquer le slaking des agrégats, la perte des pores de surface et la dégradation des fonctions hydrauliques — sans que l'on sache encore comment ces propriétés évoluent dans les sols à texture fine (Tangen, 2025). Distinguer l'eau bleue (irrigation, finie) de l'eau verte (pluie stockée) (Falkenmark, 2006). Usage : partir de l'hydrologie du sol avant de conclure à une « carence » ou d'appliquer une recette.
Cards en dialogue (15)
- Approfondi par
- Voir aussi (14)
-
- Mode d’application : surface vs incorporation (profondeur) change le diagnostic
- Infiltration lente / engorgement (profil)
- Cycle de l'eau : potentiel hydrique, flux, résilience biologique
- Hydrique & redox → stress / microzones → stratégies
- Battance / croûte / ruissellement (surface)
- Hydrophobie / infiltration hétérogène (spots secs)
- Racines superficielles / enracinement bloqué
- Sodicité et dispersion argileuse : SAR, ESP et effondrement de la conductivité hydraulique
- Réserve utile
- Efficience d'utilisation de l'eau (WUE) : le prix du carbone en eau
- Récolte de l'eau de ruissellement : capter le runoff pour régénérer les sols dégradés
- Autoroutes fongiques : dispersion bactérienne le long du réseau mycélien
- Remontée hydraulique : l'eau remontée par les racines, assurance-sécheresse du sol vivant
- Conductivité hydraulique / loi de Darcy : la vitesse de l'eau, attribut biologique du sol
Socio-économique : travail, filières, risques et dépendances
C'est pour cela qu'une bonne idée ne se diffuse pas toujours.
Souvent, le système en place se verrouille lui-même : machines, semences, circuits de vente et subventions ont été construits autour du modèle dominant, si bien que continuer paraît plus rationnel que changer — on parle de verrouillage sociotechnique.
Cela explique un paradoxe : l'agroécologie démontre une robustesse documentée, avec des écarts de rendement selon le contexte mais se répand lentement. Comparer deux systèmes exige de regarder au-delà du rendement : coûts cachés, dépendances et barrières qui freinent ou accélèrent la transition — sans idéologie.
Science
Cadre : une pratique n'est jamais seulement biophysique — son adoption dépend de la main-d'œuvre, des équipements, des filières, du capital, des risques et de la réglementation. Surtout, le système dominant s'auto-entretient par verrouillage sociotechnique (lock-in, fiche #38) : économies d'échelle, dépendance de sentier, filières calibrées pour l'industriel — un régime écologiquement inefficient reste rationnel pour l'acteur isolé. D'où le paradoxe : l'agroécologie démontre une robustesse documentée (avec des écarts de rendement contextuels) mais diffuse lentement. Comparer deux systèmes exige d'intégrer ces coûts et dépendances cachés (dont l'énergie, card #1), pas seulement le rendement. Usage : juger une transition sur ses barrières systémiques et ses leviers, sans idéologie.
Cards en dialogue (9)
- Voir aussi (8)
-
- ACS : les 3 piliers (non-labour, couverture permanente, rotation diversifiée)
- Transition : chronoséquence 4 phases et indicateurs de suivi
- Souveraineté azote-fertilisation : l'autonomie nationale face à la dépendance Haber-Bosch
- Coût réel de l'énergie fossile et 'esclaves énergétiques'
- Densité nutritionnelle alimentaire (sol → assiette)
- EROI : retour énergétique des systèmes agricoles (énergie utile / énergie investie)
- Autonomie et low-tech : réduire la dépendance aux intrants et technologies externes
- Métabolisme sociétal : régimes minier vs circulaire
Profil sol sableux : plafond MAOM bas, marge structurale maximale, métastabilité biologique
L'avantage, c'est que chaque tonne de matière organique apportée y produit un gain bien plus visible qu'ailleurs, car on part de presque zéro.
Mais rien n'y dure sans entretien : le sable ne se structure pas tout seul. Il lui faut des ciments extérieurs — oxydes de fer et d'aluminium, calcium — et un renouvellement régulier de matière organique. Sans cela, le système reste « sous perfusion ».
La bonne nouvelle est biologique : sur une base quasi nulle, l'effet « éponge » du vivant saute aux yeux. Autour d'une racine dans du sable, un léger noircissement apparaît — de la matière organique naissante, microbes morts et colles microbiennes.
Science
Sol sableux : faible CEC et faible réserve utile ; aération forte ; plafond MAOM bas en absolu mais stock initial très éloigné du plafond → bénéfice marginal maximal par tonne de C apportée. Priming effect sur le C stable structurellement limité (peu de C stable à amorcer ; le priming sur les apports frais reste possible).
Compatibilités majeures (à différence de l'ancienne formulation "apports fractionnés") :
- Chantier de reconstruction massif en incorporation 0-30 cm validé (Mode d'application — cas Cagnolle, Marseille, MSV/VdT 50-400 t MS/ha)
- Légumineuses nodulées en couverture immédiate pour esquiver la faim d'azote
- Faim d'azote comme outil de sélection contre adventices nitrophiles r-stratégistes
Régime métastable (point critique) :
- k₂ élevé (paramètre de minéralisation de l'humus du modèle Hénin-Dupuis/AMG : Hénin & Dupuis, 1945 ; Andriulo et al., 1999 ; Levavasseur et al., 2020) impose une ration d'entretien élevée (terme
ration du sol) - Sans marnage pour relever durablement le plafond MAOM (chantier minéral structurant), le système reste sous perfusion
- Équation Hénin-Dupuis : stock_eq = (apport × k1) / k2 (Hénin & Dupuis, 1945) — la ration annuelle d'entretien croît avec k₂ : nettement plus élevée sur sableux que sur un limon équivalent
- Effet éponge biologique (EPS, hyphes, biopores) particulièrement visible car ligne de base quasi nulle
Alternative moderne au marnage — basalte
- Basalte broyé (~6,7 t/ha à l'essai) : C organique rapporté jusqu'à +69-135 % dans les 20 premiers cm dans des essais isolés (Richardson, 2024) — non généralisable en l'état
- Séquestration 2-4 t CO2/ha sous forme de carbonates stables (Kelland et al., 2020)
- Augmente la stabilité des agrégats grossiers (+15 à +25 % ; Richardson, 2024) et la MAOM (+22 %, essai en pot à 50 t/ha ; Buss et al., 2023)
- Technologie émission négative GIEC (enhanced weathering)
- Plus accessible que le marnage traditionnel (pas besoin de gisement local de marne)
apport Shelake 2026 : l'expérience pédagogique sable+microbes+plante illustre visuellement le principe métastable du sableux — le noircissement rhizosphérique = nécromasse microbienne + EPS + matière organique adsorbée = MAOM naissante à l'œil nu. La symbiose mycorhizienne précède les racines (~450 Ma — Shelake et al., 2026 — vs 416-360 Ma) : levier d'inoculation biologique avant cultures exigeantes.
Cards en dialogue (14)
- Approfondi par
- Voir aussi (12)
-
- Mode d’application : surface vs incorporation (profondeur) change le diagnostic
- Couverts végétaux : design, biomasse et services rendus
- Amendements minéraux structurants : levier minéral vs levier organique
- Enhanced Rock Weathering (ERW) : altération minérale accélérée
- Profil sol 'franc' (loam) : effets intermédiaires, sensibilité au travail du sol
- MO–argile → transition stœchiométrique → stratégies microbiennes
- Cycle du carbone : de la photosynthèse à la MAOM
- Cycle de l'eau : potentiel hydrique, flux, résilience biologique
- Biochar : architecte de sol (habitat, CEC, C stable)
- Soil Continuum Model (SCM) : fin du paradigme de l'humification, necromasse microbienne et fractions fonctionnelles MAOM/POM
- Texture du sol
- Porosité
Profil sol argileux : potentiel élevé mais risques redox si enfouissement et excès d'eau
C'est, parmi les sols minéraux, un très grand stockeur de carbone.
Son point faible, c'est l'eau en excès. Enfouir de la matière organique fraîche dans une argile gorgée d'eau, c'est manquer d'oxygène : l'azote part en gaz, du fer et du manganèse deviennent toxiques. Et si le calcium manque face au sodium — ou, à un degré moindre et débattu, au magnésium — les argiles se dispersent : c'est le piège de la sodicité (l'excès de sodium).
Les bons réflexes : apporter la matière organique en surface (paillage, couverts) plutôt que l'enterrer, garder un couvert permanent, et miser sur le gypse (sulfate de calcium) plutôt que le chaulage pour amender sans alcaliniser.
Science
Sol argileux : potentiel d'agrégation très élevé grâce aux colloïdes chargés (smectite, illite, kaolinite) et aux ponts cationiques (Ca²⁺, Mg²⁺, Al³⁺). CEC élevée (20-40 cmol/kg — gamme indicative de manuel), forte réserve utile (150-250 mm/m — gamme indicative de manuel, borne haute dépendante de la porosité structurale), capacité tampon redox et nutritionnelle puissante. Potentiel de stockage C important (MAOM protégée par micro-agrégats).
Risques typiques
- Compaction et réduction profonde si enfouissement de MO fraîche en excès d'eau → anoxie → pertes N (N₂O), toxicités Fe²⁺/Mn²⁺.
- Dispersion des argiles si ratio Ca/Mg trop faible ou excès Na (sols sodiques). Le Mg²⁺ avec sa sphère d'hydratation plus épaisse (rayon ionique 0,072 nm vs 0,099 nm Ca²⁺ (Shannon CN=6)) tend à disperser les feuillets — effet net en conditions de champ débattu (souvent faible à modéré, dépendant de la minéralogie et du SAR).
- Battance possible en surface sans couvert (croûte de dégradation).
- Retrait-gonflement : fissures en été, gonflement en hiver → stress racinaire.
Leviers d'amendement
- Priorité : floculation + drainage. Gypse (CaSO₄·2H₂O) : soluble, le Ca migre en profondeur, améliore la conductivité hydraulique sans élever le pH (Prakash, 2023 ; Besen et al., 2021). Adapté aux sols compactés ou sodiques.
- Chaulage calcique (CaCO₃) sur sols acides uniquement.
- Diagnostic impératif : ratio Ca/Mg et « Charge Dispersive Nette » (Na + Mg + K) avant tout apport.
- Éviter magnésien (dolomie) si déjà excès Mg.
Pratiques recommandées
- Apports de MO en surface (mulch, couverts), pas d'enfouissement massif (évite anoxie).
- Couverture permanente → protège structure, nourrit biofilms/EPS → stabilise les macroagrégats.
- ACS + racines tap root (radis daïkon, crucifères) → création de biopores (porosité biologique ; effet limité et transitoire sur la densité apparente).
- Travail du sol limité : l'argile répond mal au passage mécanique hors conditions d'humidité optimales (état plastique à éviter).
plafond MAOM élevé en absolu mais difficulté à l'atteindre sans biologie active + stabilité redox. Cf redox central, amendements, cas calcaire.
Cards en dialogue (7)
- Approfondi par
Profil sol limoneux : battance/érosion, priorité couverture et biofilms de surface
Une pluie sur sol nu peut y former une croûte imperméable — la battance, son talon d'Achille — qui provoque ruissellement, érosion et asphyxie de surface.
Contrairement à l'argile, le limon porte peu de charges électriques permanentes : sa fertilité et sa tenue dépendent presque entièrement de la matière organique. Sans elle, il n'a plus de colle.
D'où la priorité : garder un limon couvert en permanence — couverture, paillage, racines vivantes toute l'année — et jamais de travail du sol en conditions humides. Bien conduit, il gagne pourtant de la matière organique vite, car il en dépend totalement.
Science
Sol limoneux : texture intermédiaire (limons 2-50 µm dominants), structure fragile, cohésion apparente trompeuse. CEC modérée (10-20 cmol/kg), réserve utile correcte (150-200 mm/m) mais très dépendante de la MO. Sol « piège » : facile à travailler en surface mais structurellement vulnérable.
Risques typiques
- Battance : risque majeur. Sous impact de la pluie sur sol nu, les particules fines migrent et forment une croûte imperméable en surface → ruissellement, érosion, anoxie de surface (Algayer et al., 2014).
- Érosion hydrique dominante en Europe tempérée (limons lœssiques du bassin parisien, grandes plaines).
- Glaise : fermeture capillaire → remontées d'eau médiocres.
- Peu de charges permanentes → dépend fortement de la MO pour CEC et agrégation.
Leviers structurants
- Priorité absolue : couverture permanente. Un limon ne doit jamais être nu (les couverts végétaux soutiennent simultanément multiples fonctions écosystémiques — méta-analyse mondiale : Liu et al., 2025 ; dynamique de stabilité structurale : Algayer et al., 2014).
- Mulch + biomasse racinaire permanente → protège contre la battance + nourrit biofilms de surface (EPS bactériens, protéines fongiques de type glomaline — mélange hétérogène au statut débattu).
- Roulage-crimpage des couverts → mulch stabilisant sans enfouissement.
- Apports organiques fractionnés (pas besoin de chantier massif contrairement au sableux — le limon retient mieux).
- Complexe organo-minéral : le pontage cationique Ca²⁺-argile-MO est le levier majeur de stabilisation (cycle du carbone).
Pratiques recommandées
- ACS intégrale : non-labour + couverture permanente + rotation diversifiée.
- Diversifier les systèmes racinaires (graminées + légumineuses + crucifères) pour structure verticale.
- Amendement calcique modéré si pH < 6,5.
- Pas de travail en conditions humides (état plastique/ruine de structure).
fragilité structurale = opportunité biologique : un limon bien conduit (ACS) peut afficher des gains MO rapides (via nécromasse microbienne et biofilms plutôt que la glomaline seule) car la dépendance à la MO est totale. Cf contraste avec sableux, ACS.
Cards en dialogue (8)
- Approfondi par
- Voir aussi (5)
Profil sol calcaire/argilo-calcaire : calcium structurant, risques de blocages P/oligo
C'est un sol « qui tient la route ».
Son problème est inverse de celui de l'acide : ce n'est pas la fertilité qui manque, mais l'accès aux nutriments. Quand le pH dépasse 7,5, le calcium verrouille le phosphore ; le fer, le manganèse, le bore et le zinc deviennent moins disponibles.
Les erreurs à éviter sont les remèdes de l'acide : pas de chaulage (il aggraverait le blocage), pas de marnage (inutile). Les bons leviers : le gypse (du soufre et du calcium sans toucher au pH), la matière organique fraîche qui acidifie un peu la zone racinaire, et les couverts capables d'aller chercher ce qui est verrouillé.
Science
Sol calcaire / argilo-calcaire : calcium structurant (floculation), porosité durable, stabilité organo-minérale robuste. Plafond MAOM élevé, stabilité par la minéralogie.
Risques de blocages
- Phosphore : blocage par Ca en sol calcaire actif (pH > 7,5) — mécanisme symétrique à Fe/Al en sol acide
- Bore, Zinc, Fer, Manganèse : biodisponibilité réduite par pH élevé et effet calcaire actif (le soufre — SO₄²⁻ anion mobile — n'est pas bloqué par le calcaire)
- Impact sur métabolismes et symbioses (fixation azotée Co-dépendante (via cobalamine B12), PSB, mycorhizes)
Amendements à ne pas appliquer
- Chaulage contre-productif (augmenterait encore le pH et aggraverait les blocages)
- Marnage sans intérêt (la CEC minérale est déjà suffisante)
Leviers appropriés
- Gypse agricole (CaSO₄) : apporte S sans effet pH, corrige Mg/K si ratio Ca:Mg déséquilibré
- Soufre élémentaire (S⁰) en localisation racinaire pour acidification micro-locale contre blocages P
- Chélates de micro-éléments (foliaire ou radiculaire)
- Matière organique fraîche pour stimulation phosphatase microbienne et acidification rhizosphérique
- Couverts végétaux mobilisateurs (légumineuses, crucifères Brassicaceae à acides organiques)
Vigilance ratio Ca/Mg (Shirolkar et al. 2020) :
- Rayon ionique Mg (0,072 nm) vs Ca (0,099 nm) en coordination 6 (Shannon, 1976) → charge du Mg plus concentrée, sphère d'hydratation relativement plus volumineuse
- Mg en excès est nettement moins floculant que le Ca (hiérarchie lyotropique Na > K > Mg > Ca) — le Na restant le principal dispersant
- Un ratio Ca/Mg trop faible peut dégrader la conductivité hydraulique même si pH correct (évidence mitigée, dépendante du type d'argile)
- Diagnostic avancé : Charge Dispersive Nette (CDN, Rengasamy et al., 2016) intègre Na+Mg+K
apport : 85 % des plantes terrestres forment aujourd'hui des mycorhizes (Brundrett & Tedersoo, 2018 — 85,5 % mycorhizés tous types : ~72 % arbusculaires + 2 % ectomycorhizes + 1,5 % éricoïdes + 10 % orchidées ; signal initialement capté via Shelake 2026). Sur sol calcaire, les blocages P/Fe/Mn/Bo n'empêchent pas le continuum endophyte — mais le levier reste sur Mg/S/Bo/Zn via gypse/chélates.
Cards en dialogue (11)
- Approfondi par
- Voir aussi (9)
-
- Amendements minéraux structurants : levier minéral vs levier organique
- Cobalt, vitamine B12 et fixation biologique de l'azote : la chaîne oligoélémentaire oubliée
- Calcaire actif : protocole et interprétation pour sols calcaires
- BCSR vs SLAN : doctrine équilibre cationique et limites du système Albrecht
- Voie de symbiose commune (CSSP) : SYMRK, CCaMK, CYCLOPS comme modules universels conservés
- Voies aérobie (cob) et anaérobie (cbi) de biosynthèse de la vitamine B12 : architecture évolutive divergente
- Carbonates pédogéniques – cadre intégré
- Quand amender la fraction minérale d'un sol ? : arbre de décision
- Triade Fe/Mo/Co pour la nitrogénase : stoechiométrie micronutritionnelle de la fixation biologique de l'azote
Profil sol hydromorphe/organique : redox bas, émissions, gestion de l'eau centrale
C'est pour cela qu'il accumule la matière organique : sans oxygène, les microbes ne la décomposent presque plus. Ces sols comptent parmi les plus gros réservoirs de carbone de la planète.
Mais ce trésor est piégé : dès qu'on draine, l'air revient, la décomposition redémarre et le carbone part en gaz à effet de serre. En zone saturée s'ajoutent méthane et protoxyde d'azote, et le fer ou le manganèse réduits peuvent intoxiquer les racines.
La clé n'est donc pas l'apport, c'est l'eau. Sur tourbière, mieux vaut des cultures adaptées à la nappe haute que le drainage. Et l'on évite d'y enfouir de la matière organique fraîche : elle nourrirait les émetteurs de méthane au lieu d'enrichir le sol.
Science
Sol hydromorphe ou organique : régime redox bas dominant (nappe permanente ou fréquente, tourbes, pseudogley, gley). Forte accumulation MO sous anoxie (tourbes : matière organique dominante). Horizons réduits visibles (couleurs bleu-vert, taches ocres aux battements). Cycle du carbone atypique : stockage massif mais instable si drainé.
Risques typiques et enjeux climatiques
- Émissions GES majeures : N₂O (dénitrification), CH₄ (méthanogenèse) en zones saturées.
- Toxicités Fe²⁺, Mn²⁺ (réduits, donc solubles, phytotoxiques). Cf redox-ladder et pH ferreux.
- Drainage irréversible → minéralisation accélérée → perte C majeure et largement irréversible en quelques décennies sur tourbes drainées (Leifeld & Menichetti, 2018 — 80,8 Gt C cumulés attendus des tourbes drainées mondiales). Effet "éponge à carbone déballée".
- Tassement sévère en conditions humides.
- Apports de MO fraîche = aggravation (substrat pour méthanogènes).
Leviers et pratiques
- Gestion de l'eau est centrale — plus importante que les apports.
- pas d'enfouissement de MO réduite (compost frais, matière organique non stabilisée).
- Paludiculture sur tourbes (cultures adaptées à nappe haute : roseau, saule, myrtilles) plutôt que drainage.
- Drainage contrôlé et modéré pour cultures si nécessaire ; maintenir une nappe haute saisonnière.
- Apports sous forme d'amendements minéraux structurants (calcium, basalte) plutôt que MO : stabilise les complexes organo-minéraux sans alimenter les méthanogènes.
- Continuité racinaire : cultures à racines profondes qui pompent l'eau en surface, réoxygènent partiellement (Husson 2012).
Diagnostic
- Eh mesuré + rH2 : zones franchement anaérobies si rH2 < 12 (Husson, 2012).
- Couleurs de profil (Munsell) et taches redox : carte directe du régime hydrique.
- Classes d'hydromorphie selon durée de saturation annuelle.
paradoxe climatique : sol à forte valeur carbone stockée mais émetteur net si mal géré. Orientation actuelle = préservation > exploitation. Cf redox central, rH2/capacité, N₂O.
Cards en dialogue (18)
- Approfondi par
-
- Types de sols et comportements différenciés
- Bactéries ferro-réductrices : Geobacter, Shewanella et la respiration dissimilatoire du fer
- Couplages biogéochimiques Fe-P-S-N sous alternance redox : vivianite, NDFO et gouvernance des nutriments
- Toxicité ferreuse en sols hydromorphes : stress oxydatif, mobilité Cd/As et stratégies AWD
- Films IRIS et imagerie redox 2D : cartographier les microzones réductrices au-delà des électrodes ponctuelles
- Couleur du sol : code Munsell et lecture chromatique du profil
- Voir aussi (12)
-
- Redox central : gradients, microzones et 'redox ladder'
- Cycle de l'azote : fixation, minéralisation, nitrification, pertes
- rH2, capacité redox et poising capacity : au-delà de l'Eh ponctuel
- Mémoire redox et noyaux de réduction persistants : la dimension temporelle des microzones anoxiques
- Bascule paradigme microzones anoxiques : demande biologique vs géométrie de l'agrégat
- Asphyxie / anaérobie locale (odeurs, horizons réduits)
- Infiltration lente / engorgement (profil)
- Quand amender la fraction minérale d'un sol ? : arbre de décision
- Archées : troisième domaine écologiquement distinct dans le sol
- Couplage Méthane-Fer-Soufre archéen : oxydation anaérobie du méthane (AOM) et puits CH4 globaux
- N₂O : émissions agricoles, mécanismes et mitigation
- Riz noyé : la racine fabrique sa microzone oxydée (ROL, plaque ferrique)
Profil sol 'franc' (loam) : effets intermédiaires, sensibilité au travail du sol
Mais son point fort cache un piège : parce qu'il encaisse beaucoup (labour, engrais, passages), les signes de dégradation n'apparaissent que tard. Un loam se compacte en silence sous la couche travaillée, et sa fertilité, jugée « acquise », est sous-alimentée en matière organique.
Le réflexe juste est de préserver sa biologie — elle fait la différence entre un loam régénéré et un loam épuisé. Travail réduit, couvert permanent, apports organiques réguliers, rotation diversifiée. Les tests simples de structure (bêche, infiltration, vers de terre) sont les meilleurs détecteurs précoces.
Science
Sol franc (loam) : équilibre texturel (≈ 40 % sables, 40 % limons, 20 % argiles). Souvent considéré comme « idéal » car combine les propriétés favorables de chaque fraction : CEC correcte (gamme indicative de manuel : 15-25 cmol/kg), réserve utile élevée (180-220 mm/m — gamme indicative de manuel), drainage naturel équilibré, agrégation facile. Plafond MO atteignable élevé. Terres de référence pour l'agronomie classique (blé, maïs, vigne).
Points forts
- Répond bien à tous les apports (organiques ou minéraux), tous les modes d'application.
- Compromis agrégation / porosité / drainage / réserve utile.
- Comportement redox tamponné (bonne capacité).
- Agrobiologie performante : diversité microbienne élevée, biofilms actifs, mycorhizes prospères.
Risques et sensibilité
- Paradoxe de SA versatilité : le sol franc tolère beaucoup (labour, engrais chimiques) avant de « craquer » → les signaux de dégradation apparaissent tard → dégradation souvent invisible avant seuil critique.
- Sensibilité au travail du sol : structures biologiques (macroagrégats, biofilms, hyphes mycorhiziennes) cassées par le passage mécanique. Un loam dégradé perd sa « bonté » en quelques années de labour intensif.
- Compaction progressive invisible (horizons sous-labour).
- Fertilité perçue comme « acquise » → sous-entretien chronique des apports organiques.
Leviers et pratiques
- Préserver la biologie plutôt que « gérer » — c'est elle qui fait la différence entre un loam dégradé et un loam régénéré.
- ACS adaptée : travail réduit/nul, couverture permanente, rotation diversifiée.
- Apports MO réguliers mais modérés (pas de chantier de reconstruction massif requis sauf cas dégradé avancé).
- Couverts multi-espèces → diversité racinaire → alimentation continue des communautés microbiennes.
- Amendements minéraux ciblés sur diagnostic (Ca/Mg, oligo-éléments, silicium via basalte pour résistance stress).
signal DE dégradation précoce : tests de structure (VESS, bêche, slake test), présence/absence lombricienne, vitesse d'infiltration. Un loam qui se compacte est un loam qui pleure longtemps avant de crier. Cf diagnostic terrain intégré, ACS.
Cards en dialogue (5)
- Approfondit
Mode d’application : surface vs incorporation (profondeur) change le diagnostic
En surface, on imite la forêt : la litière nourrit les vers et les champignons, le sol se construit lentement mais sans risque d'asphyxie. Enfouir, c'est travailler vite : la matière se stabilise rapidement, mais seulement si le sol reste aéré — sinon il bascule en fermentation, avec odeurs de soufre et racines noires.
Enfouir exige donc de décompacter d'abord, de bien drainer et d'accepter une faim d'azote d'un à deux ans avant le retour de la fertilité. Sur sol argileux et humide, drainage d'abord, enfouissement ensuite.
Science
Cadre : par défaut, beaucoup de raisonnements supposent des apports en surface (mulch/compost de surface). Si incorporation/enfouissement, le redox, la cinétique et les risques (anoxie, faim d'azote, pertes) changent radicalement. Toute analyse doit déclarer la profondeur d'application.
Deux voies distinctes
- Surface (aérobie, Eh 300-500 mV) : stabilisation lente (de la MO), mimétisme forestier (litière → faune → incorporation biotique). Champignons lignivores, préservation de la macroporosité biologique. Recommandation par défaut.
- Incorporation (mixtion minéral/organique) : stabilisation rapide (de la MO) SI conditions aérobies maintenues. Le mélange intime à l'échelle du cm stabilise les agrégats par action du mycélium saprophyte (rayon d'action ~1-2 cm). Technique d'intrant massif (50-400 t MS/ha) documentée par le réseau MSV / Ver de Terre Production sur 10 ans.
Conditions de succès de l'incorporation
- Décompaction préalable du sol
- Bon drainage (pas d'hydromorphie — sinon bascule anaérobie)
- Maintien de l'humidité (irrigation si nécessaire)
- Chaleur accélère la reprise biologique
- Mélange à l'échelle du centimètre
- Accepter 18-24 mois de faim d'azote → retour fertilité + vers de terre
Dimension redox (eh/ph)
L'incorporation change le contexte redox. Eh > 200 mV = aérobie → stabilisation OK. Eh < 200 mV = anaérobie → fermentation → production H₂S, Fe²⁺/Mn²⁺ toxiques, émissions N₂O/CH₄.
Signaux terrain anaérobie : odeurs de soufre, horizons bleutés/gris, racines noires.
En sol argileux/hydromorphe, l'enfouissement de MO fraîche peut basculer en anaérobie : drainage d'abord, incorporation ensuite.
Cas documentés
- Talus de Marseille : sol très dégradé → +7-9 pts MO en 12-18 mois (retours de terrain du réseau des MSV) (50+ cm BRF, broyeur à marteau, chaleur + irrigation).
- Ferme de Cagnolle (B. Le Baube, Dordogne) : 1.4% → 9% MO en 10 ans par agrorecyclerie.
- Réseau MSV : BRF mélangé au sol → agrégats stables à 120 jours dans l'eau. Sans mélange, le sol fond à travers la grille.
Cards en dialogue (17)
- À lire d’abord
- Voir aussi (13)
-
- Transition : chronoséquence 4 phases et indicateurs de suivi
- Faim d'azote comme outil agronomique : déprise adventice et sélection de cortège
- Redox central : gradients, microzones et 'redox ladder'
- Eau facteur limitant : potentiel, continuité hydraulique, diffusion des gaz
- Profil sol sableux : plafond MAOM bas, marge structurale maximale, métastabilité biologique
- Amendements organiques : compostage aérobie thermophile vs fermentations vs autres voies
- Excès de C très fermentescible (odeurs, chauffe, instabilités)
- Labour
- Ration du sol
- Biocontrôle
- Agroforesterie
- Légumineuses
- Mère de vinaigre
Amendements organiques : compostage aérobie thermophile vs fermentations vs autres voies
Le choix change tout ce que vous obtiendrez.
Le compostage aérobie monte en température au point d'assainir, détruit les graines de mauvaises herbes et livre une matière stable, qui construit du carbone durable. La fermentation, elle, conserve l'essentiel de l'énergie dans un produit vivant, qui stimule la biologie tout de suite.
Choisir un procédé, c'est régler un curseur entre nourrir la vie maintenant (stimulation) et bâtir un sol stable pour des années (stabilisation). Quel que soit le chemin, tout converge finalement vers la même matière organique ancrée aux minéraux.
Science
Cadre : comparer les amendements organiques par (matière × procédé × état × usage), jamais par leur nom commercial. Des procédés distincts n'ont ni les mêmes processus ni les mêmes effets — redox, pertes de masse, hygiénisation, stimulation vs stabilisation :
- Compostage aérobie thermophile : montée à 55-70 °C (Peng, 2023 ; Jiang, 2023) (hygiénisation, destruction des graines d'adventices), pertes gazeuses de C et de N, produit mûr stabilisé riche en composés récalcitrants.
- Pile statique / compost de surface : aération et perturbation moindres, minéralisation plus lente, conservation d'une fraction labile stimulante.
- Compost réducteur et voies fermentées (bokashi, lactofermentation) : anaérobiose ménagée, acidification, conservation de l'énergie et d'un inoculum vivant — registre stimulation/suppressivité plutôt que stabilisation.
Tous ces apports se positionnent sur l'axe stimulation ↔ stabilisation de la matière organique, arbitré par la stœchiométrie C/N et le régime redox du procédé.
Devenir commun : qu'elles soient aérobies ou anaérobies, grossières ou fines, fraîches ou pyrolysées, ces voies convergent vers la nécromasse microbienne, puis la matière organique associée aux minéraux (MAOM) — l'état stabilisé du continuum organo-minéral. Choisir un procédé, c'est régler le curseur entre nourrir la biologie maintenant (stimulation) et construire du carbone stable (stabilisation).
Cards en dialogue (18)
- Contredit
- À lire d’abord
- Approfondi par
- Voir aussi (14)
-
- Mode d’application : surface vs incorporation (profondeur) change le diagnostic
- Excès de C très fermentescible (odeurs, chauffe, instabilités)
- Doctrines fermentaires KNF vs JADAM : matrice des oppositions de Cho Han Kyu et Cho Youngsang
- Le ratio C/N du paillage pilote le ratio Fungi/Bacteria du sol
- Extraits microbiens aérobies : thé de compost oxygéné (AACT) et lombrithé
- Labour
- Ration du sol
- Biocontrôle
- Biomasse microbienne
- Agroforesterie
- Légumineuses
- Santé du sol
- Mère de vinaigre
- Conservation-transfert : stocker sans perte, laisser le sol transformer
Stratégies microbiennes : r/K et Y-A-S (rendement, acquisition, stress) le long de la succession
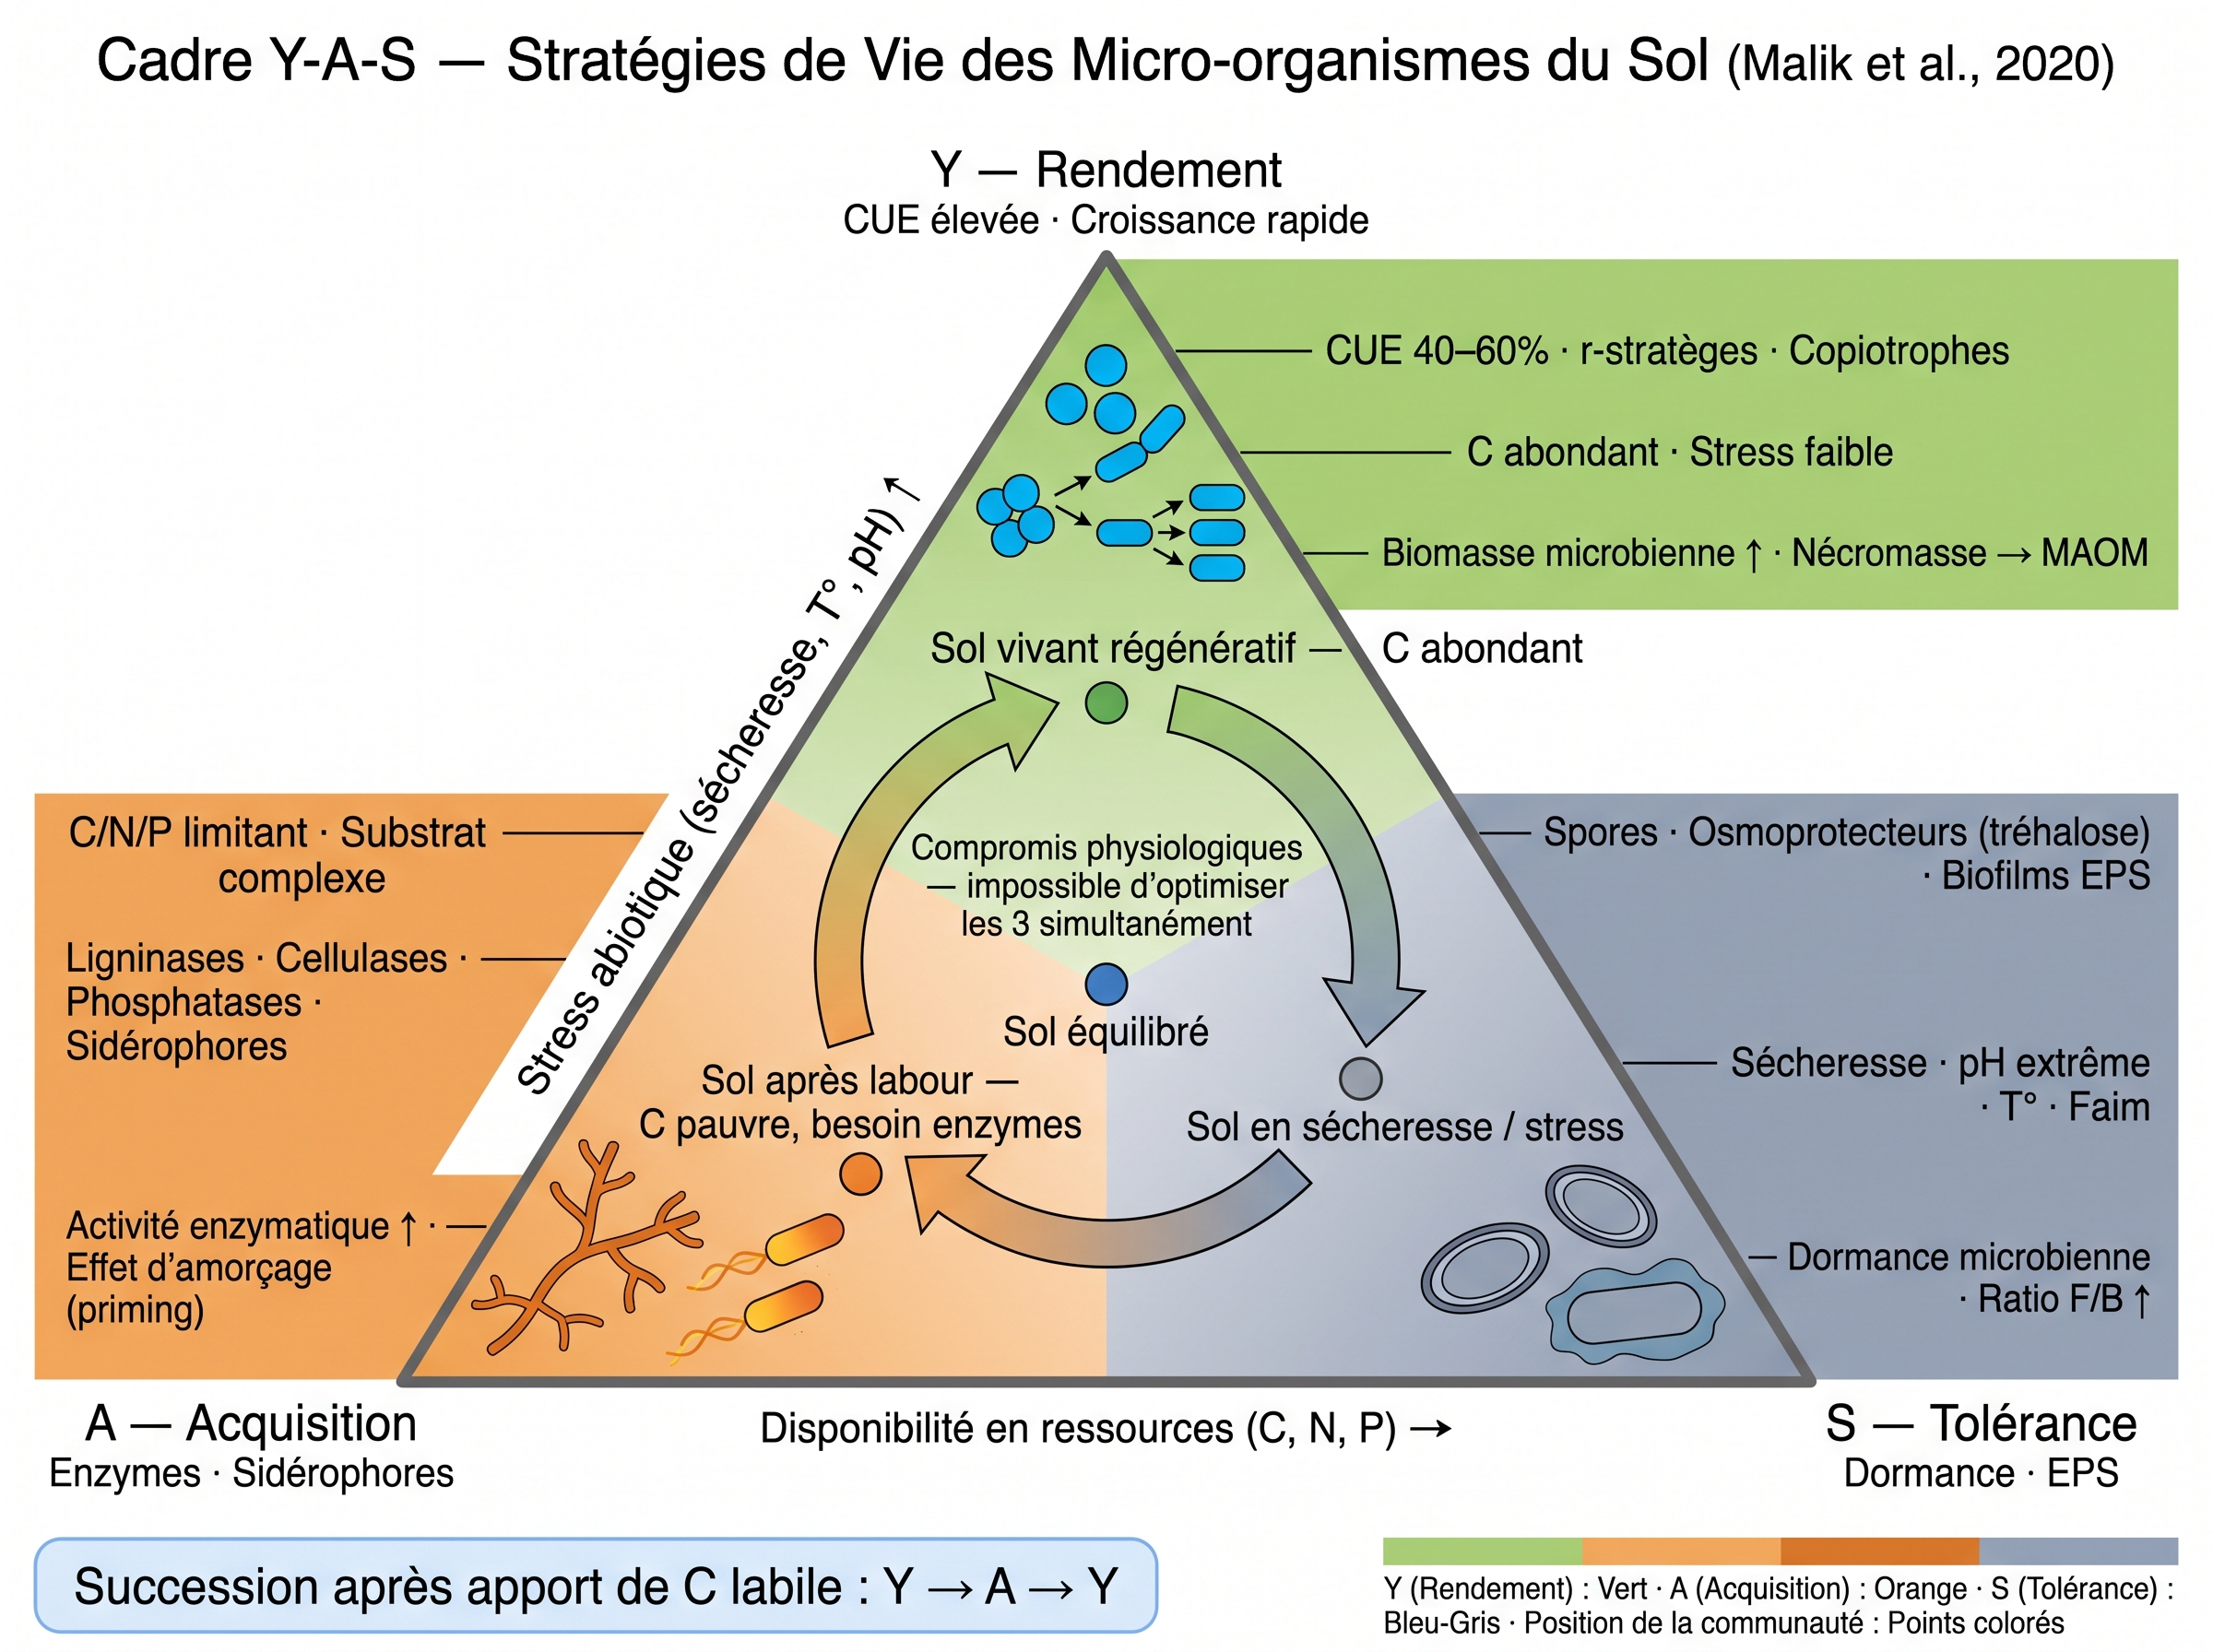
Les écologues en distinguent deux. Les microbes « r », pionniers, se multiplient très vite et adorent les sols remués, riches en matières faciles à digérer. Les microbes « K », économes et stables, dominent les sols couverts et structurés, proches de leur équilibre naturel. Un modèle plus fin — le triangle rendement–acquisition–stress — affine ce tableau et se confirme par l'analyse génétique. Conclusion : un apport fermentescible nourrit les pionniers, un sol couvert sélectionne les économes. La même recette ne donne donc pas le même effet partout.
Illustration : Fig. card 19-A · Stratégies Y-A-S…
Science
Cadre : interpréter les effets des apports selon les stratégies écologiques des microbes dominants (fiche #202) : r (copiotrophes, croissance rapide, favorisés par les sols perturbés/riches en intrants — typiques des systèmes à apports labiles fréquents) vs K (oligotrophes, efficients, stables, propres au climax) ; et le triangle Y-A-S (Rendement/Acquisition/Stress, Malik) qui raffine la lecture, désormais validé par marqueurs génomiques (He, 2025). Les stratégies se lisent dans le génome : le nombre de copies de l'opéron ARN ribosomique (rrn), marqueur d'histoire de vie, est plus élevé dans les sols cultivés — une enquête sur 153 sites (84 cultures, 69 sols vierges) montre que l'agriculture sélectionne des communautés à traits r, propices à la croissance rapide (He, 2025). La physiologie microbienne, quant à elle, est décisive pour projeter le carbone du sol : le stock résulte d'un équilibre entre décomposition de la matière organique et stabilisation du carbone assimilé, équilibre que les stratégies fondées sur les traits (Y-A-S) aident à anticiper face aux changements de conditions (Malik, 2020). La succession r→K accompagne la trajectoire sol nu → climax : un apport fermentescible nourrit les r, un sol couvert et structuré sélectionne les K. Usage : ne pas plaquer une « recette » hors contexte — même geste, effet différent selon la guilde et le stade (voir card #131, récupération vs extraction).
Cards en dialogue (10)
- Approfondi par
- Voir aussi (7)
-
- Évolution écologique du sol : sol nu → climax, stratégies microbiennes r/K et Y-A-S (cadre diagnostique)
- Faim d'azote comme outil agronomique : déprise adventice et sélection de cortège
- Résistance pré- vs post-infectionnelle aux nématodes : paradigme dual du choix variétal et des rotations
- AOA, AOB et comammox : les trois guildes nitrifiantes, partage de niche et implications agronomiques
- Immunité nutritionnelle : forme d'azote (NH₄⁺/NO₃⁻) → protéosynthèse → signalisation JA-SA
- Extraits microbiens aérobies : thé de compost oxygéné (AACT) et lombrithé
- Résilience
Lombriciens : catégories écologiques, drilosphère, turricules, biopores et interactions racines
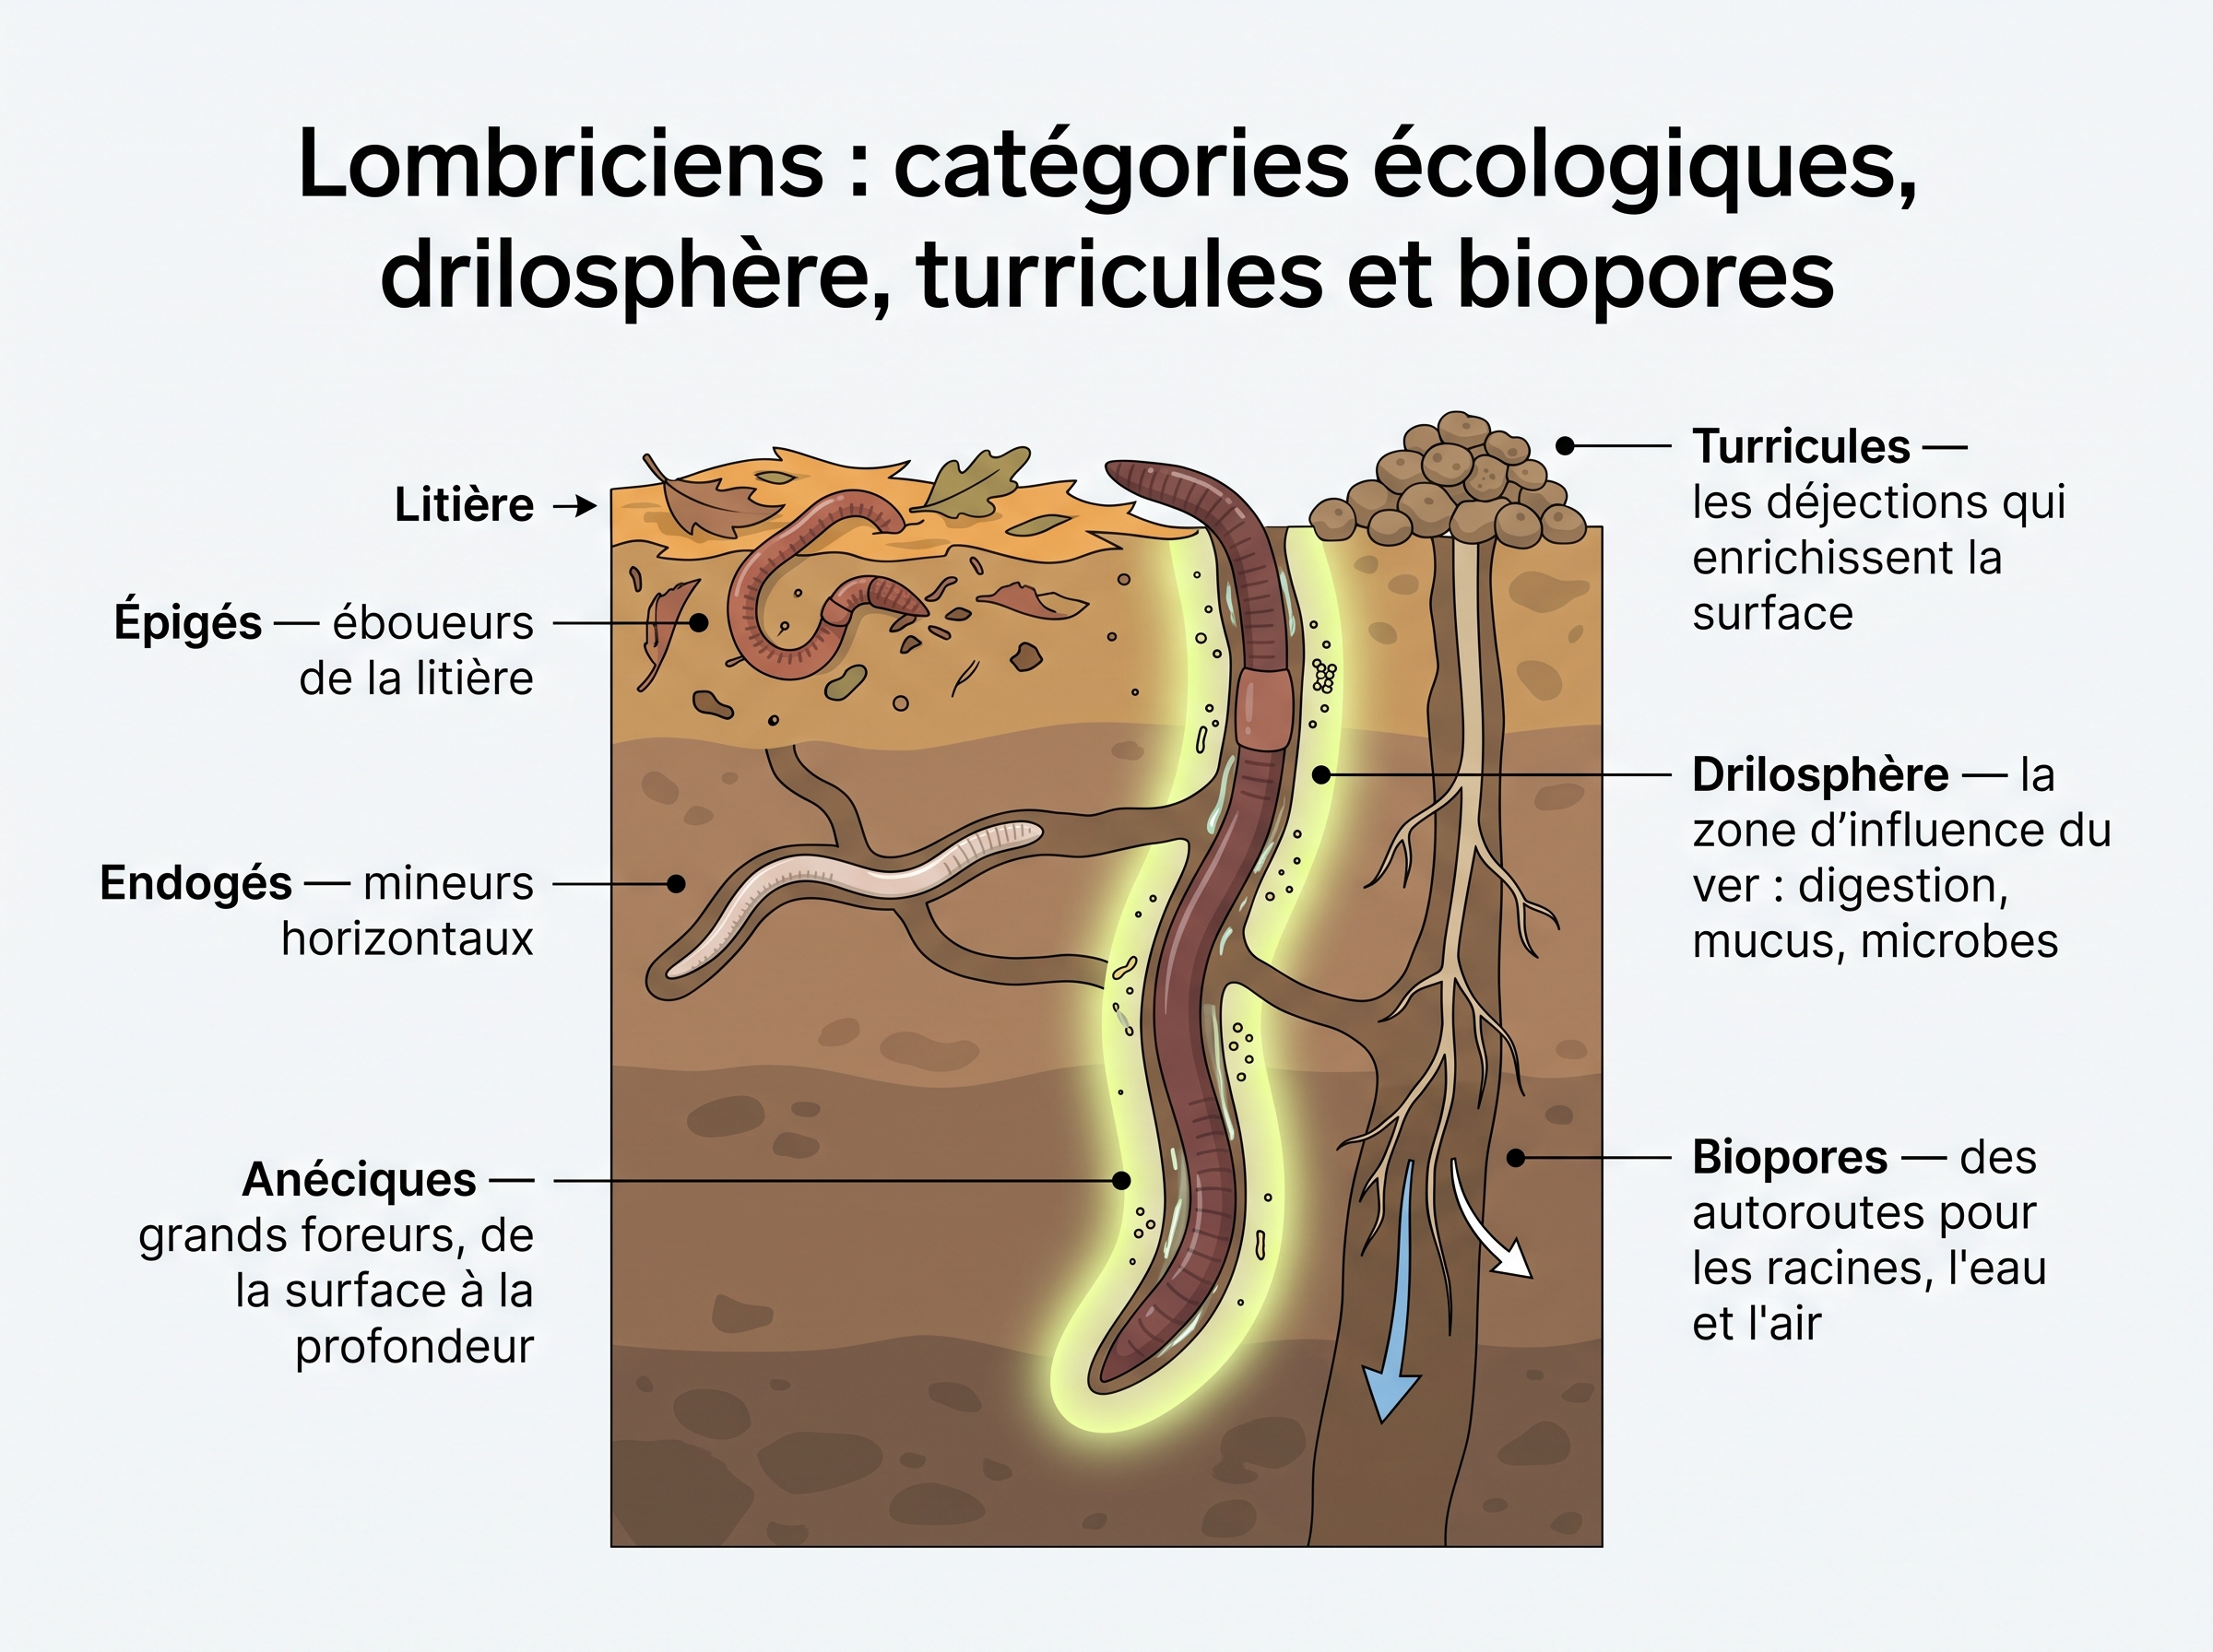
Autour de chaque ver se forme une zone d'influence, la « drilosphère », où digestion, mucus et microbes travaillent ensemble : le ver brasse le sol, ses déjections — les turricules — enrichissent la surface, et ses galeries deviennent des autoroutes pour les racines, l'eau et l'air.
Arrêter de labourer fait bondir ces populations, mais elles ne reviennent pas à la même vitesse : les foreurs profonds, les plus précieux pour la structure, sont les plus lents à se réinstaller — comptez des années, pas des saisons.
Illustration : Fig. card 21-A · Lombriciens : catégories écologiques, drilosphère, turricules, biopores et interactions racines…
Science
Cadre : structurer l’analyse des vers de terre par catégories (épigés/endogés/anéciques) et par fonctions. Relier digestion (mucus/microbiote), ingénierie (drilosphère, bioturbation, turricules, biopores) et interactions avec racines (chemins préférentiels, aération locale). Évite l’abus 'lombricompostage' : le vermicompostage concerne surtout des vers épigés.
Apports récents :
- Le triangle de Bouché (1977) reste opérationnel mais a été statistiquement redéfini par Bottinelli et al. (2020), confirmant la robustesse des 3 catégories. Capowiez et al. (2024) proposent en complément 6 groupes fonctionnels par comportement de bioturbation (intense tunnelers, burrowers, shallow/deep bioturbators, litter dwellers, intermediates).
- Méta-analyses récentes (Briones & Schmidt, 2017 ; Betancur-Corredor et al., 2024) : non-labour vs labour conventionnel = +137% abondance, +196% biomasse. Les anéciques sont les plus sensibles ; ordre de récupération endogés (2-5 ans) → épigés (3-7 ans) → anéciques (7-15 ans).
- Effet contexte-dépendant sur le bilan C (Irshad & Frouz, 2024) : sol pauvre en C → priming/minéralisation ; sol riche → soutien à la séquestration. Les anéciques contribuent au MAOM pluri-décennal via galeries profondes + nécromasse microbienne (Angst et al., 2022, 2024) — sous-estimé par les modèles AMG/RothC classiques.
- Vulnérabilité climatique Q₁₀ (Zhao et al., 2025) : sous réchauffement, le bioréacteur drilosphérique peut devenir source nette de CO₂ — piste suivie opérationnellement par le réseau MSV (voir le cycle du carbone).
Cards en dialogue (25)
- Voir aussi (25)
-
- Compaction / semelle / faible porosité
- Nématodes : guildes trophiques, indice de Bongers et diagnostic
- Mésofaune : collemboles et acariens, régulateurs des micro-habitats
- Glomaline : glycoprotéine fongique et stockage C profond
- Évolution des plantes et construction du sol : racines, mycorhizes, rhizosphère, boucles plante–microbiome
- Structure du sol (agrégats/EPS) → habitats → stabilité/résilience
- Cycle du carbone : de la photosynthèse à la MAOM
- Endophytes ubiquitaires et potentiel pathogène latent
- Le tube digestif comme bioréacteur anaérobie : principe convergent du fermenteur intestinal (ver, ruminant, humain)
- Résistance systémique induite
- Holobionte
- Exsudats racinaires
- Résistance systémique acquise
- Antibiorésistance
- Microbiome intestinal
- Flavonoïdes
- Porosité
- Trichoderma
- Suppressivité
- Éthylène
- Métabolites secondaires
- Symbiose
- Diversité microbienne
- Vermifiltration
- Haies et bocage : infrastructure multifonctionnelle du sol vivant
Évolution du vivant : monde anaérobie → photosynthèse → oxygénation → respiration (cadre redox)
Cette histoire se lit dans nos propres cellules : des bactéries ont été avalées puis apprivoisées pour devenir nos mitochondries, qui respirent, et les chloroplastes des plantes, qui captent la lumière. Le phénomène n'est pas terminé : on observe encore, de nos jours, une algue en train d'intégrer une bactérie fixatrice d'azote comme nouvel organite. La vie continue d'inventer. Raisonner en trajectoire, c'est ne pas exiger de preuves pour des acquis déjà bien établis.
Science
Objectif : replacer les mécanismes microbiogéochimiques dans une trajectoire temporelle (« histoire du vivant »), utilisable en diagnostic et en comparaison de systèmes.
Idée centrale : la biosphère démarre majoritairement anaérobie ; l'arrivée de la photosynthèse oxygénique modifie les gradients (O₂/Eh) et ouvre les métabolismes aérobies.
Chronologie des endosymbioses majeures (Shelake 2026) : mitochondrie ~1,5-2 Ga (α-protéobactérie, datation débattue), chloroplaste ~1-1,9 Ga (cyanobactérie, datation débattue), nitroplaste ~100 Ma (UCYN-A dans Braarudosphaera bigelowii, génome 1,44 Mb). L'organellogenèse n'est pas finie : le nitroplaste est en endosymbiose active aujourd'hui.
Usage éditorial : ne pas exiger de « preuves » pour des concepts fondamentaux déjà admis, et raisonner en trajectoire.
Cards en dialogue (9)
- Approfondit
- Voir aussi (6)
-
- Temporalité, irréversibilités et entropie des pratiques humaines
- Évolution des plantes et construction du sol : racines, mycorhizes, rhizosphère, boucles plante–microbiome
- Histoire des sols : désastres et réussites (Croissant fertile, Nil, Terra Preta, Milpa)
- PNSB (Purple Non-Sulfur Bacteria) : Rhodopseudomonas et la biofertilisation photosynthétique multi-fonctionnelle
- Récepteurs ancestraux et détournement évolutif (exaptation) : KAI2, le cas-type des Orobanchacées
- Archées Asgard et origine eucaryote : la lignée eucaryote prend ses racines dans le domaine archéen
Évolution des plantes et construction du sol : racines, mycorhizes, rhizosphère, boucles plante–microbiome
Le constat est solidement établi : les premiers partenariats mycorhiziens, où un champignon nourrit une plante, sont apparus avant les vraies racines, le champignon jouant alors le rôle de racine de substitution. Les racines proprement dites ne sont venues qu'ensuite. De cette alliance est née la rhizosphère, la zone vivante qui entoure les racines, puis les réseaux alimentaires et la structure grumeleuse du sol. Cette construction aide à comparer prairie, forêt et couverts sans analogies trompeuses.
Science
Objectif : relier l'évolution des plantes (et de leurs interfaces) à la formation et à l'organisation du sol.
Pivot : racines + exsudats + mycorhizes → rhizosphère → réseaux trophiques → structure et agrégation.
Quantification évolutive (Shelake 2026) : premières plantes terrestres ~470 Ma, spores de type AMF ~460 Ma, Rhynie chert à rhizomes mycorhizés ~407 Ma (Strullu-Derrien et al., 2019) ; les vraies racines émergent entre 416 et 360 Ma — donc après la symbiose mycorhizienne. Les relations symbiotiques sont considérées comme cruciales dans l'adaptation initiale des plantes à la vie terrestre (absorption des nutriments), peut-être via le développement graduel des vraies racines.
Usage : comparer des systèmes (prairie / forêt / couverts) sans analogies bancales, en explicitant les mécanismes (flux de carbone, redox local, réseaux mycorhiziens).
Cards en dialogue (10)
- Ouvre sur
- Voir aussi (7)
-
- Lombriciens : catégories écologiques, drilosphère, turricules, biopores et interactions racines
- Couverts végétaux : design, biomasse et services rendus
- Évolution du vivant : monde anaérobie → photosynthèse → oxygénation → respiration (cadre redox)
- Continuum sol-plante-humain : le fil rouge du corpus
- M genes : la plante orchestre son microbiome
- Strigolactones : signal à triple fonction (architecture, mycorhize, parasitisme)
- Pédogenèse et CLORPT : les cinq facteurs de formation des sols
Évolution écologique du sol : sol nu → climax, stratégies microbiennes r/K et Y-A-S (cadre diagnostique)
En chemin, les stratégies des microbes changent : les pionniers à croissance rapide cèdent la place à des communautés plus économes, selon les ressources, l'eau, l'oxygène et la couverture du sol. Autre découverte : la frontière entre ami et ennemi n'est pas fixe. Une même bactérie peut passer d'antagoniste à alliée selon le contexte — on parle de continuum plastique. Diagnostiquer un sol, c'est donc se demander où il se situe sur cette trajectoire, et relier chaque pratique — couvert, paillage, compost — au mécanisme qu'elle active.
Science
Objectif : caler les diagnostics et comparaisons sur une trajectoire écologique plutôt que sur des recettes.
Axe : sol nu → stades pionniers → systèmes structurés → climax. Les stratégies microbiennes (r/K, Y-A-S) changent avec les ressources, le stress, le redox, l'eau, la couverture et la continuité racinaire.
Le continuum ami-ennemi plastique ajoute une dimension dynamique : P. protegens bascule d'antagoniste à mutualiste en six cycles sur Arabidopsis (Li, 2021).
Le couple pH-Eh (redox) fournit une grille unifiante : les plantes évoluent dans un spectre Eh-pH propre et maintiennent leur homéostasie, qui conditionne leur défense — l'ensemble des stress se traduit en stress oxydatif (Husson, 2021). Le diagramme Eh-pH cartographie les niches pathogènes : nécrotrophes (zone acide/oxydée), biotrophes (oxydée), bactéries (intermédiaire), virus (phloème). Un sol suppressif maintient la plante en zone acide/réduite, optimum énergétique où aucune niche ne s'ouvre ; un sol dégradé laisse la plante oxydée, niches ouvertes, et impose les voies de défense SAR (acide salicylique) ou ISR (acide jasmonique) — coûteuses en énergie — avec antagonisme SA/JA (Husson, 2024). Mesure terrain : pH + Eh, l'écart-type servant d'indicateur de capacité tampon.
Usage : relier les pratiques (couvert, paillis, non-labour, compost/fermentation) aux mécanismes (flux C, agrégation, redox) et aux indicateurs de dynamique de la matière organique.
Cards en dialogue (9)
- Voir aussi (7)
-
- Redox central : gradients, microzones et 'redox ladder'
- Structure du sol (agrégats/EPS) → habitats → stabilité/résilience
- Couverts végétaux : design, biomasse et services rendus
- Cycle du carbone : de la photosynthèse à la MAOM
- Stratégies microbiennes : r/K et Y-A-S (rendement, acquisition, stress) le long de la succession
- Technologies paysannes ancestrales : fermentation, couplage et aménagements
- Croûtes biologiques du sol (biocrusts) : la peau vivante du sol pionnier
Carbonates pédogéniques – cadre intégré
Il faut distinguer deux sortes de calcaire : celui hérité de la roche-mère, et celui que le sol fabrique lui-même, selon le gaz carbonique respiré, l'eau et l'acidité. Le chemin le plus étonnant est biologique : certains arbres produisent des cristaux d'oxalate de calcium, que des bactéries transforment en calcaire autour des racines. Ce calcaire peut rester stable extrêmement longtemps. L'enjeu : une nouvelle voie de piégeage durable du carbone, différente de l'humus, vérifiable par des signatures chimiques pour d'éventuels crédits carbone — piste encore prospective.
Science
Cadre intégré des carbonates pédogéniques, distinguant les carbonates lithogéniques (hérités de la roche-mère) des carbonates pédogéniques secondaires reprécipités in situ, et articulant leurs dimensions thermodynamique, cinétique, biologique et hydrologique.
Contrôles : formation et dissolution du CaCO₃ pédogène dépendent du CO₂ biologique (la respiration rhizosphérique et microbienne fixe la pression partielle qui gouverne l'équilibre carbonate), de l'eau (les fronts d'humectation-dessiccation déplacent les zones de précipitation/dissolution) et du pH.
Voie biologique — pompe oxalate-carbonate : des arbres oxalogènes (Iroko, Brosimum) produisent des cristaux d'oxalate de calcium (whewellite, weddellite — formes mono- et di-hydratées produites par végétaux et champignons selon les conditions) ; des bactéries oxalotrophes (Cupriavidus, Oxalobacter) métabolisent l'oxalate, alcalinisent localement la rhizosphère (pH 5,1 → 7-9) et déclenchent la précipitation de calcite secondaire stable 10⁵–10⁶ ans.
Enjeu : une voie de séquestration de carbone inorganique pérenne, distincte de l'humification organique et de l'altération géochimique des silicates (ERW), vérifiable par les isotopes agrégés (Δ47) pour la certification de crédits carbone à comptabilité minérale longue — piste prospective, sans validation à grande échelle à ce jour.
Cards en dialogue (10)
- Voir aussi (9)
-
- Profil sol calcaire/argilo-calcaire : calcium structurant, risques de blocages P/oligo
- Cycle du carbone : de la photosynthèse à la MAOM
- Enhanced Rock Weathering (ERW) : altération minérale accélérée
- Agroforesterie biominérale tropicale : design des systèmes oxalogènes pour séquestration C pérenne
- MRV crédits carbone biominéraux : certification de la séquestration C inorganique pérenne
- Glomaline : glycoprotéine fongique et stockage C profond
- Méthanogènes
- Biodisponibilité
- Méthanogenèse
MO–argile → transition stœchiométrique → stratégies microbiennes
De ce mélange dépend la qualité du carbone disponible, et de cette qualité dépendent les stratégies des microbes qui s'y installent.
Il existe des points de bascule : à certains seuils d'azote ou de phosphore, la vie microbienne change brutalement de régime — certaines communautés prospèrent quand la nourriture est rare et stable, d'autres quand elle est abondante. C'est un changement d'écosystème, pas une simple variation.
Cette carte sert d'outil de lecture : repérer où se situe un sol sur cette trajectoire, c'est anticiper quel type de vie il abrite et vers quoi il peut basculer.
Science
Carte passerelle : trajectoire écologique + MO (SOC) + taux d'argile → disponibilité et qualité du carbone + transitions stœchiométriques (C:N:P) → bascules de stratégies microbiennes (r/K, copio/oligotrophes, Y-A-S). Outil d'audit et piste de recherche.
Le moteur est stœchiométrique : les communautés décomposantes prospèrent sur des matières organiques qui ne rencontrent que rarement leurs besoins élémentaires. Ce déséquilibre stœchiométrique entre communautés et substrats décroît du bois au feuillage puis à la terre de surface et de profondeur ; les micro-organismes y répondent par plusieurs voies, notamment en ajustant leur composition de biomasse vers celle de leur ressource (Mooshammer, 2014). Les ratios écoenzymatiques reflètent alors les équilibres entre composition élémentaire de la biomasse microbienne, matière organique détritique et efficacités d'assimilation et de croissance (Sinsabaugh, 2009). Les points de bascule microbiens sont des bascules stœchiométriques : dans la symbiose mycorhizienne à arbuscules, l'échange de nutriments — transfert de phosphore et d'azote du champignon vers l'hôte — dessine des seuils où le coût en carbone du mutualisme peut dépasser le bénéfice nutritionnel (Wipf, 2019), le long d'un continuum mutualisme-parasitisme (Johnson et al., 1997). La transition MO-argile et la transition mutualisme-parasitisme relèvent du même ordre conceptuel — des changements de régime à seuils.
Cards en dialogue (10)
- Ouvre sur
- Approfondit
- Approfondi par
- Voir aussi (6)
-
- Profil sol sableux : plafond MAOM bas, marge structurale maximale, métastabilité biologique
- Eutrophisation et zones mortes : du double effet azote-phosphore à l'hypoxie
- Quand amender la fraction minérale d'un sol ? : arbre de décision
- Seuils nutritionnels et bascule mutualisme-parasitisme (H1 Shelake 2026)
- rH2, capacité redox et poising capacity : au-delà de l'Eh ponctuel
- Le ratio C/N du paillage pilote le ratio Fungi/Bacteria du sol
Hydrique & redox → stress / microzones → stratégies
Quand l'eau sature un agrégat, l'oxygène diffuse 10 000 fois moins vite : des microzones privées d'oxygène apparaissent, même en sol drainé.
Ces microzones sont des usines chimiques : pertes d'azote en gaz à effet de serre (N₂O), fer et manganèse transformés, refuge d'opportunistes. À chaque alternance sec/humide, le vivant change de stratégie : dormance et spores, pic d'activité à la réhumectation. Matière organique et oxydes de fer/manganèse forment les tampons naturels.
Inutile de vouloir éviter ces microzones : le levier est de piloter leur fréquence — sol aéré, drainage, pas de matière organique fraîche enfouie en sol détrempé. Ce régime hydrique stresse aussi la culture ; en champ, les stress se combinent.
Science
Passerelle : régime hydrique (sécheresse / réhumectation) × potentiel redox — le couple qui gouverne l'état microbien du sol. Quand l'eau sature un agrégat, la diffusion de l'O₂ chute d'un facteur ~10⁴ en phase aqueuse (constante physique classique ; rôle des microsites anoxiques : Keiluweit et al., 2017) : il se forme des microsites anoxiques (déséquilibre offre/demande en oxygène), même dans un sol globalement drainé — l'hydromorphie peut être ponctuelle, pas seulement zonale.
Ces microsites sont des hotspots biogéochimiques : dénitrification (pertes N₂O), réductions Fe/Mn, mobilisations de toxicités — mais aussi niches d'opportunistes. La cascade redox suit la thermodynamique (NO₃⁻ → Mn⁴⁺ → Fe³⁺ → SO₄²⁻ → CO₂) : le régime hydrique écrit la partition électronique, et donc le cortège microbien actif.
Réponses du vivant aux alternances :
- Déplacements de stratégies Y-A-S (cadre émergent, transposition aux microbes débattue — non ancré à ce jour ; l'effet Birch lui est bien établi) : les stressés (S) cèdent la place aux opportunistes (Y) à la réhumectation (pulse carbone type effet Birch) ;
- Dormance et spores comme refuges ; biofilms/EPS comme tampon hydrique ;
- Syntrophies redox : couplages métaboliques dans les gradients (fermentation ↔ respirations alternatives) ;
- Poising capacity du sol : matière organique et oxydes Fe/Mn comme tampons redox naturels.
Pour l'agronome : le levier n'est pas d'éviter les microsites (impossible) mais de piloter leur fréquence — structure aérée (agrégats stables), drainage des excès, non-enfouissement de MO fraîche en excès d'eau (risque anoxie profonde sur argileux).
Cards en dialogue (12)
- Approfondi par
- Voir aussi (10)
-
- Redox central : gradients, microzones et 'redox ladder'
- Eau facteur limitant : potentiel, continuité hydraulique, diffusion des gaz
- Effet Birch : pulse de minéralisation à la réhumectation des sols secs
- Racines superficielles / enracinement bloqué
- Cycle de l'eau : potentiel hydrique, flux, résilience biologique
- Cry-for-help : recrutement stress-induit du microbiome
- Triangle des maladies végétales × extrêmes climatiques : cadre diagnostique renouvelé
- Eh terrain : sondes redox, gradient mV/cm et méthode in situ
- Diagramme Eh-pH (Pourbaix) : domaines de stabilité et spéciation redox des éléments
- Sécheresse structurelle : de l'aléa au régime
Azote (formes, pertes) → stœchiométrie → stratégies microbiennes
La forme qui domine n'est pas neutre : elle décide quelle stratégie microbienne s'installe — investir pour capter l'azote rare, ou consommer l'azote abondant. L'azote est donc une aiguille qui oriente tout l'écosystème du sol.
Comprendre cette passerelle, c'est relier le cycle de l'azote aux stratégies des microbes : de là découlent les choix de fertilisation et leurs conséquences.
Science
Passerelle : formes de l'azote, minéralisation/immobilisation, nitrification/dénitrification, pertes (N₂O) → bascules de limitation et d'investissement A/Y/S. Nœud de navigation reliant le cycle de l'azote aux stratégies microbiennes.
La nitrification aérobie est portée par un cortège diversifié — bactéries et archées oxydant l'ammoniac (AOB/AOA), bactéries oxydant le nitrite, comammox — actif d'un sol acide au lac sodé (Ni, 2023) ; la disponibilité de l'ammonium et le pH en contrôlent la contribution (Wen, 2023). La dénitrification et ses émissions de N₂O dépendent de l'étendue des zones anoxiques (diffusion de l'O₂, demande respiratoire) : les centres anaérobies n'apparaissent que dans les gros agrégats (rayon ≥ 10 mm), les petits (rayon ≤ 6 mm) restant oxiques (Sexstone, 1985 ; Rohe, 2021). Le protoxyde d'azote, gaz à effet de serre destructeur d'ozone, a crû de près de 25 % (270 → 336 ppb) entre 1750 et 2022, contribuant à 6,4 % du forçage radiatif (Tian, 2024). La minéralisation des résidus suit le rapport C:N (brassicacées, légumineuses), pas pour les graminées (Vogeler, 2021). La fixation biologique (BNF) par les diazotrophes fournit une voie durable d'entrée de l'azote (Bradyrhizobium, Azospirillum) (Lima, 2024 ; Telles, 2023). Le réseau trophique module le cycle : les nématodes bactérivores stimulent l'ammonification, même en sol acide (Na, 2025). Limitation et investissement basculent avec la stœchiométrie et les stratégies microbiennes (Sinsabaugh, 2009 ; Mooshammer, 2014 ; Malik, 2020 ; He, 2025).
Cards en dialogue (11)
- Voir aussi (10)
-
- ‘Faim d’azote’ après apport carboné (immobilisation)
- Cycle de l'azote : fixation, minéralisation, nitrification, pertes
- Faim d'azote comme outil agronomique : déprise adventice et sélection de cortège
- Eutrophisation et zones mortes : du double effet azote-phosphore à l'hypoxie
- Racines superficielles / enracinement bloqué
- Stœchiométrie CNPS et modèle AMG
- Archées : troisième domaine écologiquement distinct dans le sol
- Immunité nutritionnelle : forme d'azote (NH₄⁺/NO₃⁻) → protéosynthèse → signalisation JA-SA
- N₂O : émissions agricoles, mécanismes et mitigation
- Séquence des formes d'azote : du nitrate à l'azote organique le long du gradient de carbone
Structure du sol (agrégats/EPS) → habitats → stabilité/résilience
Ce gel fait plus que coller : il retient les nutriments, concentre la nourriture, et les microbes en biofilm travaillent plus efficacement que leurs cousins isolés. La structure du sol n'est donc pas qu'un squelette : c'est un habitat qui rend la vie plus productive.
De cette architecture dépend la résilience : un sol aux agrégats bâtis par le vivant encaisse mieux les chocs, de l'eau comme de la sécheresse.
Science
Passerelle : structure, agrégats, EPS/biofilms, porosité → habitats et protection → stabilité/résilience, trajectoires microbiennes.
Biofilms rhizosphériques — activité métabolique
- Les biofilms bactériens en rhizosphère ne sont pas que des structures de protection : ils présentent une activité métabolique significativement supérieure aux formes planctoniques.
- Production d'ammoniac, d'auxines et activité nitrogénase nettement accrues chez Pseudomonas, Bacillus sous forme biofilm (Backer, 2018).
- La matrice d'EPS agit comme échangeur anionique/cationique → concentration locale des nutriments (Zhang, 2024).
- Cf Quorum sensing pour le mécanisme de coordination intercellulaire.
Le biofilm est la forme de vie la plus répandue et la plus adaptative : système biologique dynamique qui répond aux changements environnementaux, il constitue une stratégie de survie clé dans les conditions extrêmes — températures extrêmes, forte radiation, pH acide ou alcalin, pollution aux métaux lourds, forte salinité (Parrilli, 2022). Les substances polymériques extracellulaires (EPS), polymères de haut poids moléculaire, portent l'intégrité structurale des biofilms et en déterminent les propriétés physico-chimiques : elles créent un environnement favorable aux réactions interfaciales et au piégeage des nutriments autour des cellules, tout en formant une zone tampon contre les stress (Zhang, 2024). Dans le sol, leurs propriétés d'adhésion, d'hygroscopicité et de complexation contribuent à la santé du milieu.
Cards en dialogue (18)
- Approfondi par
- Voir aussi (13)
-
- Lombriciens : catégories écologiques, drilosphère, turricules, biopores et interactions racines
- Profil sol limoneux : battance/érosion, priorité couverture et biofilms de surface
- Évolution écologique du sol : sol nu → climax, stratégies microbiennes r/K et Y-A-S (cadre diagnostique)
- Hydrophobie / infiltration hétérogène (spots secs)
- Cycle de l'eau : potentiel hydrique, flux, résilience biologique
- Mésofaune : collemboles et acariens, régulateurs des micro-habitats
- Quorum sensing dans la rhizosphère : communication bactérienne, perception végétale, biofilms
- Cycle du potassium : minéraux primaires, KSB et biodisponibilité dans les sols vivants
- Soil Continuum Model (SCM) : fin du paradigme de l'humification, necromasse microbienne et fractions fonctionnelles MAOM/POM
- Sodicité et dispersion argileuse : SAR, ESP et effondrement de la conductivité hydraulique
- Texture du sol
- Agrégation
- Biofilms microbiens : architecture EPS et théâtre des cycles
Compaction / semelle / faible porosité
Les galeries de vers et canaux de racines s'écroulent, l'eau stagne, l'oxygène ne se renouvelle plus — l'asphyxie guette même là où le sol semble sain. La semelle de labour, couche tassée vers 25-30 cm, en est la forme chronique.
La racine ne bute pas sur un mur : elle détecte la compaction (via l'éthylène) et la contourne. La solution durable est vivante : vers de terre et racines pivotantes comme le radis fourrager recréent des galeries stables. Le sous-soleuse ne fait qu'un trou temporaire — la semelle se reforme si la vie ne prend pas le relais. Une semelle qui persiste signale des passages mal gérés : le sol garde la mémoire des passages.
Science
Diagnostic terrain : compaction, semelle de labour, limitation racinaire, infiltration faible.
Objectif : comprendre pourquoi un sol qui semble poreux en moyenne fonctionne comme un bloc — et comment la biologie reconstruit l'architecture.
Mécanisme : la compaction détruit la connectivité du réseau poral, pas seulement son volume. Les macropores (galeries, canaux racinaires) sont écrasés → la tortuosité augmente → la filtration ralentit → l'O₂ ne se renouvelle plus → anoxie locale même en sol apparemment poreux. La semelle de labour (généralement entre 20 et 30 cm de profondeur, interface Ap/Bt) est la forme chronique. Les racines ne s'arrêtent pas par simple force physique : elles détectent la compaction via l'accumulation d'éthylène (Pandey et al., 2021) — c'est un signal, pas un mur.
Parade élégante : la bioturbation (vers anéciques, racines pivotantes comme radis fourrager ou chicorée) recrée des biopores stables et connectés. Effet cumulatif vs effet mécanique ponctuel du sous-soleuse (la semelle se reforme si la biologie ne prend pas le relais). Le VESS (score Sq) identifie les couches restrictives pour un travail du sol localisé, pas systématique.
Inversion : la semelle persistante est un capteur de trafic — elle signale une gestion inadaptée (surcharge, mauvais calendrier). Le sol garde la mémoire des passages.
Cards en dialogue (11)
- Approfondit
- Voir aussi (8)
-
- Infiltration lente / engorgement (profil)
- Profil sol 'franc' (loam) : effets intermédiaires, sensibilité au travail du sol
- Lombriciens : catégories écologiques, drilosphère, turricules, biopores et interactions racines
- Hydrophobie / infiltration hétérogène (spots secs)
- Stabilité d’agrégats faible / désagrégation rapide
- Diagnostic terrain intégré : du profil bêché au tableau de bord biologique
- Porosité
- Éthylène
Asphyxie / anaérobie locale (odeurs, horizons réduits)
Privés d'air, les microbes passent à des carburants de secours : le nitrate d'abord, puis la rouille, puis le soufre. La rouille dissoute colore le sol en gris, et le soufre lui donne son odeur d'œuf pourri. Et quand la rouille se dissout, elle relâche le phosphore qu'elle retenait.
Ces foyers d'asphyxie ne sont pas un défaut à éliminer : ils vivent en petites poches au sein d'un sol globalement aéré, et servent même de puits de carbone. L'objectif n'est pas de les supprimer, mais d'en maîtriser la géométrie.
Science
Diagnostic terrain : signaux redox/anoxie — odeurs (H₂S, œuf pourri), horizons gris/bleu, mouchetures, racines stressées.
Objectif : comprendre que l'odeur n'est pas le problème mais le signal d'un basculement thermodynamique profond.
Mécanisme : l'asphyxie n'est pas un simple « manque d'air » : c'est l'activation d'une cascade redox. Les microbes exploitent les accepteurs d'électrons selon une hiérarchie de rendement énergétique : O₂ → NO₃⁻ → Mn → Fe³⁺ → SO₄²⁻ → CO₂. Quand l'O₂ s'épuise (saturation, compaction), la séquence s'enclenche vers des voies de plus en plus pauvres. Le passage du seuil Fe³⁺ dissout les oxyhydroxydes et libère Fe²⁺ et le P adsorbé — d'où les odeurs, les couleurs réduites et les fuites de phosphore. Sous anoxie, ce relargage est dominé par la dissolution réductive des oxydes de fer (Gu et al., 2019) et gouverné par le rapport molaire Fe:P du sol : plus il est bas, plus le phosphore libéré gagne les eaux (Forsmann & Kjaergaard, 2014). À l'inverse, un excès de fer réduit peut re-fixer le P en vivianite, minéral de stœchiométrie Fe:P 3:2 — un référentiel MINÉRAL, distinct de celui du sol (Rothe et al., 2016). Décisif : ces microsites anoxiques coexistent au sein d'une matrice globalement aérobie.
Parade élégante : piloter la poising capacity (effet tampon redox) : un sol bien structuré (agrégats stables, macropores connectés) amortit les basculements. Le semis direct tend à préserver l'étagement redox ; le labour homogénéise — avec des fuites N₂O variables selon climat, drainage et cycle N (relation non monotone).
Inversion : les microsites anoxiques sont des puits de carbone et le siège de la dénitrification. L'objectif n'est pas d'éliminer l'anoxie mais d'en contrôler la géométrie.
Cards en dialogue (9)
- Approfondi par
- Voir aussi (7)
-
- Redox central : gradients, microzones et 'redox ladder'
- Profil sol hydromorphe/organique : redox bas, émissions, gestion de l'eau centrale
- Excès de C très fermentescible (odeurs, chauffe, instabilités)
- Racines superficielles / enracinement bloqué
- Bactéries ferro-réductrices : Geobacter, Shewanella et la respiration dissimilatoire du fer
- Effet Birch : pulse de minéralisation à la réhumectation des sols secs
- Diagramme Eh-pH (Pourbaix) : domaines de stabilité et spéciation redox des éléments
Battance / croûte / ruissellement (surface)
Les gouttes frappent, brisent les mottes de surface, et les argiles colmatent les pores.
Cette croûte de battance est d'abord un phénomène physique, mais sa cause profonde est biologique : un sol dont les mottes sont cimentées par la matière organique et les champignons résiste à l'impact des gouttes. Un sol nu et fragile se scelle.
La parade tient en un mot : couvrir. Un couvert permanent intercepte l'énergie des gouttes avant qu'elles ne frappent, et les champignons recollent les mottes. La battance est en réalité une alarme gratuite sur la santé de la surface.
Science
Diagnostic terrain : croûte de surface, ruissellement, éclaboussures, infiltration de surface faible.
Objectif : comprendre pourquoi l'eau ne rentre pas — ce n'est pas un excès d'eau mais un scellement de surface.
Mécanisme : la battance est un phénomène de surface, purement physique à l'amorce. L'énergie cinétique des gouttes désagrège les agrégats de l'horizon Ap → les argiles dispersées colmatent les pores → formation d'une croûte de battance qui scelle la porosité. Le ruissellement qui s'ensuit est la conséquence du scellement, pas un excès d'eau. Le déterminant proximal est la stabilité structurale des agrégats de surface — elle-même pilotée en amont par la quantité et la qualité de la MO (cimentation biologique : polysaccharides, protéines fongiques de type glomaline — GRSP, statut débattu ; équilibre cationique : Ca²⁺ floculant vs Na⁺ dispersant).
Parade élégante : la couverture permanente agit à deux niveaux : (a) la canopée intercepte l'énergie cinétique des gouttes avant qu'elles n'atteignent le sol, (b) les hyphes mycorhiziens enrobent et cimentent les macroagrégats (> 250 µm) — via le réseau physique et les protéines de type glomaline (rôle propre de la glomaline débattu). Le gypse (CaSO₄) complète en restaurant la floculation.
Inversion : la battance est une alarme gratuite sur l'instabilité des agrégats de surface — un signal sur l'état de l'holobionte de surface, pas seulement une nuisance hydraulique.
Cards en dialogue (8)
- Voir aussi (7)
-
- Eau facteur limitant : potentiel, continuité hydraulique, diffusion des gaz
- Infiltration lente / engorgement (profil)
- Hydrophobie / infiltration hétérogène (spots secs)
- Stabilité d’agrégats faible / désagrégation rapide
- Cycle de l'eau : potentiel hydrique, flux, résilience biologique
- Sodicité et dispersion argileuse : SAR, ESP et effondrement de la conductivité hydraulique
- Récolte de l'eau de ruissellement : capter le runoff pour régénérer les sols dégradés
Infiltration lente / engorgement (profil)
Chaque cause a sa parade — et se tromper de cause, c'est se tromper de remède.
La plus réparable est le tassement : quand les gros pores s'effondrent, l'eau ne circule plus. La solution n'est pas la machine, ce sont les êtres vivants — vers de terre, racines profondes, champignons — qui re-creusent des galeries durables.
Et l'argile qui draine mal est aussi celle qui retient le mieux l'eau et les nutriments : son défaut est la face cachée d'une qualité. D'où l'importance de bien diagnostiquer avant d'agir.
Science
Diagnostic terrain : infiltration lente, engorgement, stagnation de l'eau.
Objectif : la première question n'est pas quoi faire mais pourquoi l'eau stagne — trois goulots à départager.
Mécanisme : trois causes non exclusives, aux parades radicalement différentes :
- Hydraulique : nappe superficielle ou horizon imperméable : le profil est saturé, il n'y a plus d'espace poral.
- Structural : la compaction effondre le réseau macroporeux (> 75 µm) ; la conductivité hydraulique saturée (Ksat) s'effondre de plusieurs ordres de grandeur.
- Textural : une argile lourde inhérente au matériau parental draine intrinsèquement lentement.
Parade élégante : pour la cause structurale (la plus pilotable), les biopores vivants — vers anéciques, racines pivotantes, hyphes fongiques — restaurent le Ksat sans intervention mécanique. Effet cumulatif. Les couverts augmentent la macroporosité (+24 % mesurés vs sol nu ; Haruna et al., 2018) et +1 % de COS = +3 mm d'eau disponible pour 100 mm de sol (relation COS→eau disponible : Hudson, 1994).
Inversion : l'argile qui « draine mal » est aussi celle qui stocke le mieux eau et CEC. Le défaut est la face cachée d'une qualité — d'où l'importance du diagnostic différentiel avant toute action.
Cards en dialogue (10)
- Approfondi par
- Voir aussi (9)
-
- Profil sol hydromorphe/organique : redox bas, émissions, gestion de l'eau centrale
- Compaction / semelle / faible porosité
- Hydrophobie / infiltration hétérogène (spots secs)
- Quand amender la fraction minérale d'un sol ? : arbre de décision
- Eau facteur limitant : potentiel, continuité hydraulique, diffusion des gaz
- Profil sol argileux : potentiel élevé mais risques redox si enfouissement et excès d'eau
- Battance / croûte / ruissellement (surface)
- Cycle de l'eau : potentiel hydrique, flux, résilience biologique
- Effet Birch : pulse de minéralisation à la réhumectation des sols secs
Hydrophobie / infiltration hétérogène (spots secs)
Ce n'est pas forcément un mal — c'est la signature d'un sol dont les mottes sont enrobées de substances imperméables.
Ce vernis a un double visage : il protège les mottes contre l'éclatement sous la pluie, mais il repousse aussi l'eau. Après une sécheresse, il s'accentue, et l'eau de pluie contourne la terre par les fissures au lieu de la recharger. Sur les sols sableux, le même mécanisme devient une vraie maladie.
Les champignons du sol font les deux à la fois : ils fabriquent ce vernis, mais leurs filaments canalisent l'eau en profondeur. Garder un couvert permanent, c'est entretenir ce réseau qui fait entrer l'eau malgré la barrière.
Science
Diagnostic terrain : zones qui refusent l'eau, infiltration patchy (taches sèches au milieu de zones humides).
Objectif : distinguer l'hydrophobie biologique (paradoxale) du scellement abiotique (battance).
Mécanisme : l'hydrophobie apparaît quand des revêtements organiques hydrophobes (GRSP/glomaline, lipides, cires) rendent les surfaces des agrégats répulsives à l'eau — l'eau perle au lieu de mouiller. Mécanisme paradoxal : ces mêmes revêtements protègent les agrégats contre le slaking — un sol peut donc être simultanément hydrophobe et structurellement stable. La battance (impact des gouttes sur sol nu limoneux) produit le même symptôme de « refus » mais par scellement abiotique.
Volet post-sécheresse (SWR induite) : la dessiccation intense amplifie l'hydrophobie — au séchage, les groupements hydrophobes des molécules organiques s'orientent vers l'extérieur des surfaces minérales. Conséquences en chaîne : réhumectation lente (le temps de mouillage passe de secondes à minutes/heures — mesurable au Water Drop Penetration Time) → l'eau de pluie contourne la matrice par les flux préférentiels (fissures, galeries) au lieu de la recharger → ruissellement de surface et recharge retardée en début de saison humide. Extrême : après incendie, la SWR devient sévère (volatilisation des cires et re-condensation en profondeur) → érosion catastrophique des versants brûlés. Parade préventive : ne jamais laisser un sol vivant atteindre la dessiccation complète — couverture et continuité mycorhizienne maintiennent l'humidité de surface et les voies d'infiltration.
Parade élégante : les mycorhizes produisent la glomaline qui enrobe les agrégats. L'architecture hyphale canalise l'eau le long des hyphes, contournant l'hydrophobicité de surface. La couverture permanente nourrit le réseau mycorhizien en continu.
Inversion : le « refus d'eau » peut être la signature d'un sol sain — un sol dont les agrégats sont enrobés et protégés. Un sol qui perle n'est pas forcément malade ; c'est peut-être un sol si bien enrobé qu'il en devient hydrophobe.
Mécanisme — effet lipidique microbien et dominance fongique
Mécanisme — l'effet lipidique microbien et la dominance fongique. Les revêtements hydrophobes sont d'origine microbienne avant tout : hydrophobines (→ terme #4408, protéines cystéine-riches des champignons filamenteux, auto-assemblées en couches amphipathiques — Rillig, 2005), GRSP/glomaline (§1), lipides et cires à longue chaîne (acides gras, sels d'acides gras divalents — Graber et al., 2009), membranes d'actinomycètes. Preuve expérimentale de la dominance fongique : les biocides fongiques suppriment la répulsivité induite en sol cultivé, pas les antibiotiques bactériens (Feeney et al., 2006). L'usage des terres module directement les profils fonctionnels du métabolisme lipidique microbien — l'intensification enrichit la communauté en voies de synthèse de lipides hydrophobes (Chai et al., 2024 #1000466). Boucle de rétroaction avec le ratio F/B (→ terme #50) : un sol séché voit la dominance fongique s'installer (les réseaux mycéliens résistent mieux à la dessiccation que les bactéries — Bapiri et al., 2010 #1000465) → plus d'hyphes et d'enrobages → hydrophobie auto-entretenue tant que le remouillage n'a pas relancé le pulse bactérien (effet Birch → terme #333 ; Li et al., 2024 #10732).
Facteur texture — la spécificité des sols sableux
Facteur texture — pourquoi les sables sont en première ligne. La surface spécifique fait la différence : un sable (~0,01-0,1 m²/g) n'offre qu'une poignée de sites d'adsorption par grain — un film lipidique nanométrique suffit à hydrophober la particule entière. Sur un sol argileux (jusqu'à plusieurs centaines de m²/g pour les smectites), les mêmes enrobages sont dilués et laissent d'immenses surfaces hydrophiles exposées. Conséquence pratique : la SWR sévère est quasi-exclusivement un problème de sols sableux et sablo-limoneux (sables cultivés néerlandais et australiens, greens de golf, dunes, sols forestiers incendiés), avec un seuil critique d'humidité en deçà duquel la répulsivité s'installe (Hewelke et al., 2024). C'est la texture qui fait basculer la signature (§1, inversion) en pathologie : sur texture équilibrée, l'hydrophobie légère témoigne d'un enrobage biologique sain ; sur sable, le même mécanisme produit spots secs persistants, ruissellement et recharge retardée. Correction texturale de fond : argilage des sables (→ terme #5042, incorporation de 1-5 % d'argile, effet durable à l'échelle décennale), éventuellement combiné au compost qui restaure la diversité fonctionnelle rhizosphérique sous stress hydrique (Mickan et al., 2017).
Remédiation — casser la barrière sans détruire les réseaux
Remédiation — casser la barrière sans détruire les réseaux. Gradient d'intervention, du moins au plus invasif : (1) Prévention (§1 : couverture permanente, continuité mycorhizienne, ne jamais laisser le sol atteindre la dessiccation complète) ; (2) Biologique : biosurfactants microbiens — surfactine de Bacillus subtilis, rhamnolipides — biodégradables et compatibles avec le réseau fongique car non fongicides (Karamchandani et al., 2022 #5011 ; revue des stratégies : Müller & Deurer, 2011) ; (3) Texturale : argilage (§3) ; (4) Matière organique : composts et biochars mouillables (Davis et al., 2024 ; Müller & Deurer, 2011) — prudence : selon leur nature et leur fraîcheur, certains biochars sont au contraire hydrophobes. Prudence sur les wetting agents synthétiques : efficaces en turf mais effets sur le microbiome mal documentés (Song et al., 2019). En amont, les techniques water harvesting (→ fiche #281, zaï #5036, demi-lunes #5037) interceptent le ruissellement consécutif à la SWR.
⚠ Hypothèse auteur — non sourcé. Le lactoferment / LiFoFer (→ terme #109) comme agent de remouillage par triple action concomitante : (i) correction rH2 double — le ferment abaisse Eh (métabolisme réducteur → terme #382) et pH (acide lactique), donc les deux termes de rH2 = 33,8·Eh + 2·pH (→ terme #1027), créant le microenvironnement légèrement réduit et acide favorable à la dégradation des lipides/cires ; (ii) biosurfactants faibles des lactobacilles et saponines végétales des ferments ; (iii) pulse bactérien copiotrophe dégradant les enrobages (effet Birch exploité comme levier). Les LAB étant peu antifongiques (certaines souches produisent néanmoins des métabolites antifongiques), les réseaux hyphaux sont plutôt préservés — et avec eux les autoroutes de redispersion bactérienne au remouillage. Statut : angle mort de la littérature — non testé formellement (≠ vérifié) ; la pratique voisine la plus documentée est le Mouillant JADAM (→ terme #560).
Cards en dialogue (7)
- Voir aussi (6)
-
- Eau facteur limitant : potentiel, continuité hydraulique, diffusion des gaz
- Structure du sol (agrégats/EPS) → habitats → stabilité/résilience
- Compaction / semelle / faible porosité
- Battance / croûte / ruissellement (surface)
- Infiltration lente / engorgement (profil)
- Cycle de l'eau : potentiel hydrique, flux, résilience biologique
‘Faim d’azote’ après apport carboné (immobilisation)
Les microbes se jettent sur ce carbone et accaparent tout l'azote disponible, affamant la culture.
C'est la faim d'azote : un déséquilibre entre carbone et azote. La parade classique est de compléter en azote, ou d'apporter une matière déjà mûre. La parade élégante est de semer des légumineuses, qui fabriquent leur propre azote et n'ont rien à disputer.
Mieux : on peut retourner cette faim en outil. Sur un sol riche en carbone, les mauvaises herbes gourmandes en azote peinent à lever, tandis que les légumineuses autonomes prospèrent — on installe le cortège qu'on veut.
Science
Diagnostic terrain : jaunissement post-apport C, ralentissement croissance. Objectif : stœchiométrie, immobilisation microbienne N minéral, C labile.
mécanisme : apport C haut C/N → microbes copiotrophes immobilisent N minéral → compétition directe avec la plante → carence N apparente sans déficit réel.
parade classique — stœchiométrie Kirkby 100 C : 8 N : 2 P : 1,5 S :
- Compléter l'apport C avec N minéral au bon ratio
- Ou compost pré-décomposé C/N < 20
parade élégante — légumineuses nodulées :
- Les plantes fixatrices sont indifférentes à la carence N minérale
- Rhizobium/Bradyrhizobium fixent N₂ atmosphérique → plante N-autonome
- Pas besoin d'apport N minéral externe
- Pré-requis : inoculation rhizobium si sol vierge de la symbiose
Inversion — faim d'azote comme outil agronomique
La faim d'azote peut être utilisée comme levier de sélection végétale, pas seulement subie comme symptôme. Sur un chantier haut C/N (BRF, broyat, paille longue) avec couvert légumineux inoculé :
- Adventices nitrophiles r-stratégistes (chénopode, amarante, morelle, mouron, digitaire, sétaire, renouée) : germination retardée, levée faible, croissance retardée pendant plusieurs semaines à quelques mois (dépend C/N réel, quantité apportée et climat ; plus long si paille longue, plus court si BRF)
- Légumineuses N-autonomes : peu sensibles une fois la nodulation établie (jeunes plantules <2-4 semaines vulnérables en sol froid/acide), croissance normale, effet canopée compétitive
- Résultat : cortège végétal installé au lieu de cortège subi
Voir Card "Faim d'azote comme outil agronomique" pour le mécanisme détaillé et les conditions de validité.
Confirmation du cadre de faim d'azote : il existe des seuils N/P au-delà desquels les symbioses N-fixatrices sont désactivées (concept établi ; effet inhibiteur de l'azote starter sur la nodulation : Baddour et al., 2021). Les légumineuses nodulées restent l'esquive élégante (contournement des contraintes évolutives).
Cards en dialogue (10)
- Ouvre sur
- Voir aussi (6)
-
- Continuum ami-ennemi microbien : plasticité rapide des statuts
- Azote (formes, pertes) → stœchiométrie → stratégies microbiennes
- Racines superficielles / enracinement bloqué
- Diagnostic terrain intégré : du profil bêché au tableau de bord biologique
- Transition : chronoséquence 4 phases et indicateurs de suivi
- Séquence des formes d'azote : du nitrate à l'azote organique le long du gradient de carbone
Excès de C très fermentescible (odeurs, chauffe, instabilités)
Les microbes prolifèrent si vite sur ce carbone sucré qu'ils consomment l'oxygène plus vite qu'il n'arrive.
Le sol devient alors localement sans air, et la cascade des carburants de secours s'enclenche, produisant des gaz malodorants et de la chaleur. C'est une fermentation qui part dans tous les sens, signe d'un excès de carbone très fermentescible.
La parade est de maîtriser cette fermentation au lieu de la subir : la stabiliser en voie lactique, ou la tamponner. Et ces foyers sans air ne sont pas qu'un défaut : bien pilotés, ils épurent les nitrates.
Science
Diagnostic terrain : odeurs (NH₃, H₂S), chauffe, instabilités post-apports de matière organique labile.
Objectif : lire les signaux sensoriels — odeurs et chaleur ne sont pas des pannes mais des signaux d'une biologie qui s'emballe.
Mécanisme : l'excès de C fermentescible déclenche une course entre la demande microbienne en O₂ et son approvisionnement par diffusion. Le carbone labile (sucres, broyat fin) nourrit une prolifération copiotrophe dont la respiration consomme l'O₂ plus vite qu'il ne diffuse → microsites anoxiques même en sol globalement aéré. À l'intérieur, la cascade redox s'engage (O₂ → NO₃⁻ → Fe → SO₄²⁻ → CO₂), produisant des gaz réduits (H₂S « œuf pourri », CH₄, N₂O) à l'origine des odeurs. La chaleur est la signature exothermique de l'oxydation intense.
Parade élégante : la fermentation lactique (bokashi) stabilise le carbone sans perte ni odeurs — voie anaérobie maîtrisée. Le biochar tamponne l'effet pulse. Préventivement : ajuster le C/N initial (25-30:1 ; Bernal et al., 2009) et l'Espace d'Air Libre (FAS ~30-50 % ; Bernal et al., 2017).
Inversion : les microsites anoxiques ne sont pas qu'un défaut — ils sont des refuges évolutifs et le moteur de la dénitrification. Bien pilotés, ils épurent les nitrates.
Cards en dialogue (7)
Sol ‘inerte’ / faible activité apparente
Plus de vers ni de petites bêtes pour mélanger et agréger, plus de carbone frais pour réveiller les microbes : le cycle est gelé.
Attention au faux diagnostic : la sécheresse ou le froid peuvent faire taire temporairement un sol pourtant vivant. Le silence qui dure, lui, signe une trajectoire dégradée.
On ne sème pas la vie, on la nourrit : couverture permanente, racines vivantes, matière organique de qualité. Ajouter des microbes par pulvérisation sans leur donner d'habitat, c'est les condamner à mourir.
Science
Diagnostic terrain : faible faune visible, agrégats pauvres, racines superficielles — sol « silencieux ».
Objectif : éviter le faux diagnostic (saison, sécheresse, Q₁₀) et cibler les drivers du silence.
Mécanisme : un sol « inerte » n'est pas un sol sans vie, c'est un sol au réseau trophique effondré. Deux moteurs s'effondrent simultanément : (a) régulation descendante absente — sans macrofaune (vers) et mésofaune (collemboles, acariens), la macro/méso-agrégation s'effondre (bioturbation, turricules, régulation fongique) → les agrégats perdent leurs agents de liaison → ils deviennent « pauvres » — la stabilisation nécromasse→MAOM étant microbienne-minérale (Microbial Carbon Pump), seulement affectée indirectement ; (b) régulation ascendante tarie — sans pulse de carbone labile (exsudats racinaires, résidus frais), les microbes copiotrophes restent dormants → pas d'effet priming → cycle gelé. Le Q₁₀ (poïkilothermie) et la sécheresse peuvent masquer temporairement une activité réelle.
Parade élégante : on ne sème pas la vie, on la nourrit. Restaurer l'habitat et le flux trophique : couverture permanente + racines vivantes + MO de qualité. Les inoculations microbiennes (compost tea, KNF) échouent sans habitat — la vie ajoutée meurt si le réseau trophique ne la recycle pas.
Inversion : le silence biologique comme message — un sol muet est un signal de trajectoire dégradée, pas un vide. Distinguer le silence passager (Q₁₀, sécheresse) du silence structurel (réseau effondré).
Cards en dialogue (4)
Racines superficielles / enracinement bloqué
Trois barrières possibles — le tassement, l'acidité, ou l'inégalité des nutriments.
Le tassement, la racine le sent avant de le heurter : elle détecte le sol compact par un signal hormonal. L'acidité, elle, libère un aluminium toxique qui fige la pointe en moins d'une heure — la racine s'arrête net. Et quand les nutriments sont concentrés en surface, la plante n'a aucune raison de descendre.
Le profil racinaire est donc un outil de diagnostic : la profondeur atteinte révèle quelle barrière bloque, et à quel niveau. Décompacter par des plantes à racines profondes, chauler en profondeur : les parades se choisissent au diagnostic.
Science
Diagnostic terrain : racines en surface, enracinement peu profond, déviation morphologique.
Objectif : identifier laquelle des trois barrières (mécanique, chimique, trophique) bloque l'enracinement.
Mécanisme : l'enracinement bloqué n'est pas qu'une question de force mécanique. Trois barrières convergent :
- Barrière mécanique (compaction) : les racines détectent la compaction via l'accumulation d'éthylène — c'est un signal hormonal, pas un mur. La racine « sent » le sol compact avant d'être bloquée.
- Barrière chimique (Al³⁺) : en sol acide (pH < 5,5), l'aluminium devient soluble et toxique dès quelques µM en solution (Anderson et al., 2023), inhibant l'élongation en moins d'une heure. Le gène Stop1 active les transporteurs ALMT1 qui exsudent du malate pour chélater l'Al³⁺.
- Barrière trophique (stratification) : en semis direct, les nutriments se concentrent en surface → la plante adapte sa morphologie et n'explore pas en profondeur.
Parade élégante : le chaulage profond (0,45 m) précipite l'Al³⁺ et relève le pH de > 1 unité en 2 mois, combiné aux couverts pivots (luzerne, tournesol, betterave) pour un décompactage biologique durable (biopores persistants plusieurs années, sans être permanents). La synergie mécano-biologique stabilise les gains.
Inversion : la profondeur atteinte par les racines cartographie la barrière — le profil racinaire est un outil de diagnostic qui indique laquelle des trois barrières bloque et à quelle profondeur.
Cards en dialogue (7)
- Approfondi par
- Voir aussi (6)
-
- Eau facteur limitant : potentiel, continuité hydraulique, diffusion des gaz
- Hydrique & redox → stress / microzones → stratégies
- Azote (formes, pertes) → stœchiométrie → stratégies microbiennes
- Asphyxie / anaérobie locale (odeurs, horizons réduits)
- ‘Faim d’azote’ après apport carboné (immobilisation)
- Sol ‘inerte’ / faible activité apparente
Stabilité d’agrégats faible / désagrégation rapide
Le sol se défait à la première pluie, et sa structure part en poussière.
Trois colles tiennent une motte : les gels et filaments des microbes, le calcium qui fait pont, et l'architecture bâtie par le vivant. Selon la façon dont la motte éclate — en nuage, en morceaux, en angle — on devine quelle colle manque.
Les couverts permanents à racines vivantes produisent ces colles en continu et entretiennent le réseau de champignons qui entremêle les mottes. L'éclatement n'est pas qu'un symptôme : c'est un test de diagnostic gratuit.
Science
Diagnostic terrain : slaking — agrégats qui se défont rapidement à l'humectation, structure instable.
Objectif : identifier quelle « colle » manque (biologique, chimique, physique) — le slaking lui-même classe la cause.
Mécanisme : le slaking est l'éclatement rapide d'un agrégat sec immergé : l'eau pénètre par capillarité, l'air comprimé à l'intérieur exerce une pression qui désagrège. Ce phénomène révèle l'absence de trois catégories d'agents de liaison :
- Biologiques (EPS + protéines fongiques de type glomaline — GRSP, statut débattu — + hyphes) : les exopolysaccharides microbiens (fraction mineure mais structurante du COT — Zhang et al., 2024) forment des hydrogels qui cimentent les microagrégats ; les hyphes mycorhiziens enchevêtrent les microagrégats en macroagrégats.
- Chimiques (Ca²⁺ + MO) : le calcium assure le pontage cationique entre argiles et MO ; le Na⁺ disperse les feuillets et effondre la structure.
- Physiques (structure hiérarchique) : le labour détruit les macroagrégats (−21 % de MWD vs semis direct — Sithole et al., 2019).
Parade élégante : les couverts permanents à racines vivantes produisent en continu l'EPS et entretiennent le réseau mycorhizien. La synergie semis direct + couverts (NT+CC) amplifie la stabilité au-delà du semis direct seul.
Inversion : le slaking est un test de diagnostic gratuit — l'éclatement lui-même classe la cause : éclatement rapide = liaison biologique absente ; dispersion turbide = cause sodique (Na⁺) ; fragmentation angulaire = cause mécanique (labour).
Cards en dialogue (6)
CEP : double identité entomopathogène/endophyte et CBC
Semés sur les graines, ils colonisent les racines comme des alliés : ils transfèrent à la plante l'azote des insectes qu'ils parasitent dans le sol, et libèrent des minéraux comme le phosphore, le fer ou le zinc en les rendant absorbables. Ils défendent aussi la plante contre d'autres agresseurs, en produisant des armes chimiques ou en l'aidant à armer ses propres défenses.
Ce double visage n'est pas une bizarrerie : c'est un cas particulier d'une règle plus générale — tout endophyte garde un potentiel latent qui bascule selon le contexte.
Science
Transfert N insecte→plante. CBC vs inondation spores. Indicateur santé sols.
apport Shelake 2026 : CEP est un cas particulier d'un régime général — le continuum endophyte ubiquitaire. Tous les endophytes retiennent un potentiel pathogène latent lié au métabolisme secondaire : BGC sesquiterpène C. tofieldiae switch (Hiruma 2023), BGC botrydial désactivé transforme pathogène→bénéfique (Ujimatsu 2025). 'Beneficial plant–fungal associations may have come with the trade-off of potentially allowing phytopathogens to enter plant cells' (Shelake, l. 713-716).
Diversité taxonomique
- Au-delà de Beauveria et Metarhizium, le sol abrite Isaria, Cordyceps, Nomuraea, Entomophthora et Akanthomyces (anciennement Lecanicillium) (Fite 2023, Vivekanandhan 2024).
Transfert direct d'azote insecte→plante via le mycélium
- Prouvé par marquage isotopique ¹⁵N : Metarhizium robertsii et Beauveria bassiana agissent comme des conduits, transférant l'azote issu des insectes parasités vers les tissus de plantes colonisées (soja, blé, haricot) (Behie et Bidochka, 2012).
- Implication conceptuelle : les CEP ne sont pas "seulement" des biocontrôleurs — ce sont des intégrateurs trophiques qui recyclent la biomasse animale vers la biomasse végétale dans le sol.
- Solubilisation élargie : au-delà de l'azote, les CEP augmentent la biodisponibilité du phosphore, du fer, du potassium et du zinc par minéralisation (Bamisile 2021) → endophyte + solubilisateur + biocontrôleur = triple fonction.
Modes d'action contre les pathogènes du sol
- Antibiose : production de métabolites secondaires.
- Parasitisme direct des champignons/bactéries pathogènes.
- Induction d'une résistance systémique (ISR) chez l'hôte végétal (Yadav 2025).
- Innocuité : faible impact sur les organismes non-cibles → préservation de la biodiversité fonctionnelle vs traitements chimiques (Vivekanandhan 2024).
Innovations de formulation et d'application
- Microencapsulation et nano-vecteurs : amélioration précision de livraison + viabilité des spores face aux stress environnementaux (Yadav 2025).
- Microparticules sensibles au pH : libération ciblée dans la rhizosphère.
- Émulsions de Pickering : encapsulation de conidies dans huile-dans-eau stabilisée par nanoparticules de silice → meilleure adhésion + protection des propagules (Birnbaum et al., 2021).
- Traitement semences / granulés de semis : favorise l'établissement endophyte durable en maintenant les spores à proximité des jeunes racines.
Facteurs abiotiques et transmission
- Persistance/efficacité corrélées à l'humidité du sol, à la température et au pH ; hors plages optimales → inhibition de la germination des spores (Jaronski, 2009).
- Modes de transmission dans les populations d'insectes du sol : horizontale (inter-individu), verticale (inter-générations), vecteurs passifs (Touré 2018).
Implications pratiques
- Les CEP sont des composants polyvalents d'un système régénératif : biocontrôle ciblé + fertilité (transfert N) + stimulation végétale.
- Cf Endophytes ubiquitaires et potentiel pathogène latent, Continuum ami-ennemi microbien.
Cards en dialogue (24)
- Approfondit
- Approfondi par
- Voir aussi (19)
-
- Thermotolérance microbienne : 7 mécanismes
- Continuum sol-plante-humain : le fil rouge du corpus
- Biostimulation indigène KNF/JADAM et thermodynamique redox
- Éliciteurs biologiques exogènes : chitosane et oligogalacturonides (priming PTI/SAR)
- Microorganismes prédateurs indigènes (IPMO) : la capture ciblée par appât insecte
- Triangle des maladies végétales × extrêmes climatiques : cadre diagnostique renouvelé
- Mycobiome intestinal et axe gut-brain fongique : le 3ᵉ domaine oublié de la santé humaine
- Gestion systémique des nématodes à galles : rotations, cultures-pièges et régulation trophique
- Boucle microbienne du sol : protozoaires, paradoxe fonctionnel et minéralisation pilotée
- Autodissémination et push-pull insectes : ingénierie comportementale et amplification CEP
- Code des histones et marques permissives/répressives : architecture épigénétique de la mémoire immunitaire végétale
- Holobionte
- Résistance systémique acquise
- Antibiorésistance
- Flavonoïdes
- Suppressivité
- Éthylène
- Métabolites secondaires
- Le cycle endophytique : une continuité, pas un compartiment
Thermotolérance microbienne : 7 mécanismes
Certains sont portés par les microbes, d'autres par la plante ou leur alliance — l'ensemble forme un système de survie à plusieurs étages.
Les microbes aident la plante à calmer son stress en réduisant son signal d'alerte, retiennent l'eau dans leurs gels, et stabilisent leurs propres protéines sous la chaleur. La plante, elle, redistribue l'eau la nuit vers la surface sèche, et la matière organique amortit les pics de température.
Mais la réponse n'est pas symétrique : un coup de chaud modéré peut muscler le système, au-delà d'un seuil il le casse. Et tout le monde n'a pas la même tolérance — les microbes encaissent en moyenne une gamme plus large que la plante.
Science
À l'échelle de l'holobionte (microbe + plante + champignon), plusieurs mécanismes protègent le compartiment biologique du sol face à la chaleur — qui co-survient presque toujours avec le déficit hydrique. Les porteurs diffèrent : malgré le titre « microbienne », trois mécanismes relèvent de la plante ou de la symbiose.
Portés par les microbes :
- ACC désaminase : des rhizobactéries (PGPR) clivent l'ACC, précurseur de l'éthylène : elles abaissent le pic d'éthylène de stress de la plante et préservent l'enracinement sous canicule (levier indirect) ;
- exopolysaccharides (EPS) : la matrice de biofilm, hygroscopique, retient l'eau et tamponne dessiccation et pics thermiques, tout en cimentant les agrégats ;
- osmolytes / solutés compatibles (bétaïnes, polyols) — accumulés sans perturber les protéines, ils stabilisent membranes et enzymes et détoxifient les ROS (cœur de l'osmotolérance, qui recoupe la thermotolérance — Dastogeer et al., 2022 ; Eswaran et al., 2024) ;
- protéines de choc thermique (HSP) : chaperons qui préviennent l'agrégation des protéines dénaturées (chez la plante, le facteur de transcription HSFA2 en pilote l'induction et la mémoire thermique — Lämke et al., 2016).
Portés par le système sol-plante :
- redistribution hydraulique : l'eau remonte la nuit du sol profond vers la surface sèche, via racines et hyphes mycorhiziens, réhumectant l'horizon microbien ;
- matière organique tampon : la MO accroît la réserve hydrique et l'inertie thermique du sol, écrêtant les pics de température (effet de système, non moléculaire) ;
- redirection trophique : flexibilité de la source de carbone : renfort de la voie symbiotique/hétérotrophe quand la photosynthèse est inhibée par la chaleur (le terme « mixotrophie » au sens strict s'applique surtout aux protistes, rares en sol).
Asymétrie thermique : la réponse du vivant à la chaleur n'est pas symétrique — un réchauffement modéré peut renforcer le système (priming, mémoire thermique, antifragilité), tandis qu'au-delà d'un seuil les dommages deviennent irréversibles ; et la sensibilité diffère entre compartiments (gamme de thermotolérance plus large chez les microbes en moyenne — communautés néanmoins sensibles au-delà de ~40 °C — que chez la plante ; différentiel de gamme et de cinétique, non binaire) comme entre jour et nuit.
Cards en dialogue (10)
- Approfondit
- Approfondi par
- Voir aussi (6)
-
- Couverts végétaux : design, biomasse et services rendus
- CEP : double identité entomopathogène/endophyte et CBC
- Fenton-like et radicaux hydroxyles dans les sols : oxydation abiotique de la MAOM et flux CO₂ non microbien
- Interaction chaleur × sécheresse : quand un plus un dépasse deux
- Rhizosheath : la gaine racinaire, trait holobiontique de la tolérance à la sécheresse
- Ozone troposphérique × microbiome du sol : un stress qui descend dans la rhizosphère
Stœchiométrie CNPS et modèle AMG
L'humus stable a une composition presque fixe en ces éléments ; pour fixer durablement une tonne de carbone, le sol doit retenir, en proportions précises, de l'azote, du phosphore et du soufre. S'il en manque un seul, le carbone apporté est respiré au lieu d'être stocké : apporter l'élément manquant, le plus souvent l'azote, peut donc augmenter le stockage. Mais un apport de carbone peut aussi stimuler la dégradation du carbone ancien, voire en déstocker. C'est ce que les outils de bilan humique, calibrés sur des essais longs, tentent de prévoir pour l'initiative « 4 pour 1000 » ; l'incertitude sur la part stable pèse encore.
Illustration : Fig. card 45-A · Stœchiométrie CNPS et modèle AMG…
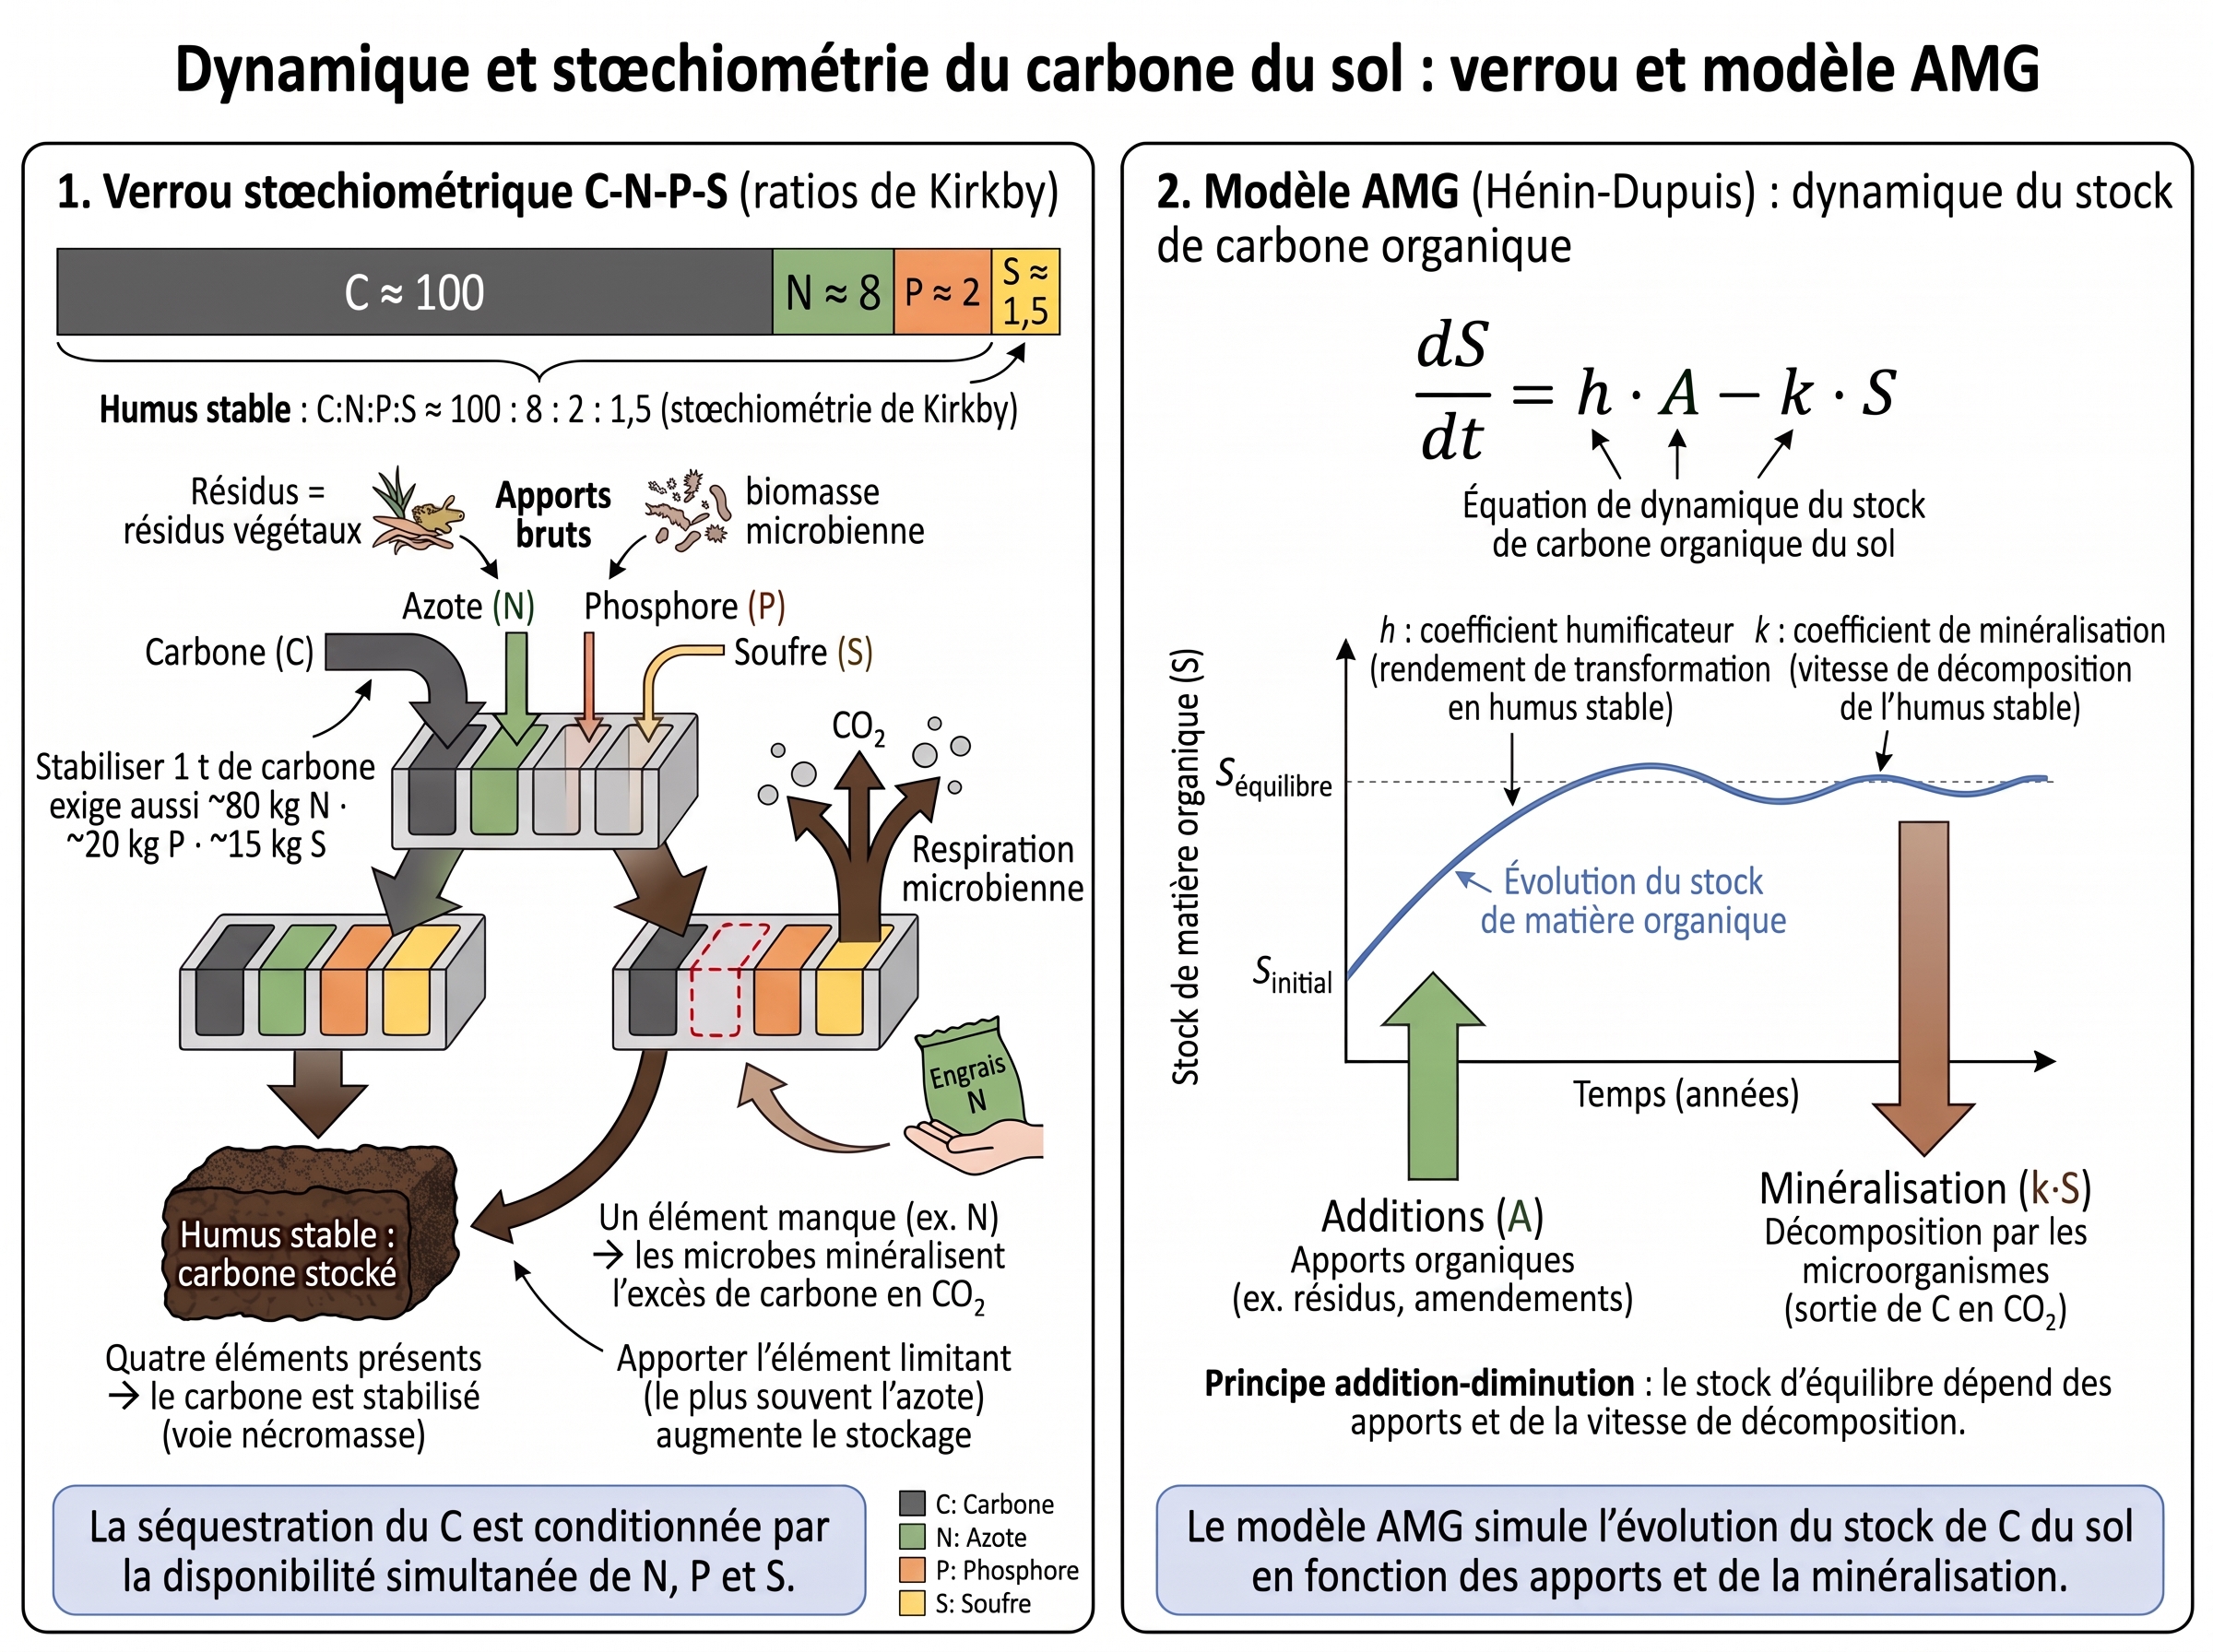
Science
Stœchiométrie de Kirkby : l'humus stable présente une signature élémentaire quasi invariante, un ratio massique C:N:P:S ≈ 100 : 8 : 2 : 1,5 (Kirkby 2011-2016). Conséquence : pour stabiliser durablement (voie nécromasse) 1 t de carbone, le sol doit fixer simultanément ~80 kg N, ~20 kg P et ~15 kg S. Si l'un manque, la stabilisation organo-minérale (voie nécromasse) est bloquée et les microbes minéralisent l'excès de carbone en CO₂ au lieu de le stabiliser — apporter l'élément limitant (le plus souvent N) peut donc augmenter la séquestration de C. À ne pas confondre avec la stœchiométrie de la MO globale (~186:13:1) ni avec celle de la biomasse microbienne (~60:7:1).
Modèle AMG (Andriulo et al., 1999) : modèle français de bilan humique (vocabulaire humique classique conservé comme noms propres — paramètres et méthode du modèle AMG ; cf. card #98 pour le cadre SCM). La matière organique s'y répartit en un compartiment actif (minéralisable, gouverné par le coefficient d'humification k1 et le coefficient de minéralisation k2) et un compartiment stable ; les implémentations récentes (SIMEOS-AMG) ajoutent un compartiment de matière fraîche (trois compartiments). Calibré sur des essais de longue durée — précision de l'ordre de ~3 t C/ha sur 30 ans (Levavasseur 2020).
Effet d'amorçage (priming) : contrepoint au levier Kirkby — un apport de carbone labile peut stimuler la minéralisation du carbone ancien et relativiser les gains de stockage. Apporter du carbone ne suffit pas, et peut même déstocker.
4 pour 1000 : initiative lancée à la COP21 visant +4 ‰/an de carbone organique des sols ; l'AMG en est l'outil de modélisation, mais l'incertitude sur la fraction stable pèse sur les prévisions à long terme. Sur le plan mécaniste, le cadre nécromasse → MAOM/POM dépasse l'AMG, qui reste l'outil de calcul opérationnel mais approximatif.
Cards en dialogue (20)
- À lire d’abord
- Approfondi par
- Voir aussi (14)
-
- Azote (formes, pertes) → stœchiométrie → stratégies microbiennes
- Cycle de l'azote : fixation, minéralisation, nitrification, pertes
- Cycle du carbone : de la photosynthèse à la MAOM
- Seuils nutritionnels et bascule mutualisme-parasitisme (H1 Shelake 2026)
- Biomarqueurs fonctionnels du sol vivant : diagnostic par activités et ratios plutôt que par stocks
- Couplages biogéochimiques Fe-P-S-N sous alternance redox : vivianite, NDFO et gouvernance des nutriments
- Cobalt, vitamine B12 et fixation biologique de l'azote : la chaîne oligoélémentaire oubliée
- Mémoire microbienne paléoclimatique (20 000 ans)
- BCSR vs SLAN : doctrine équilibre cationique et limites du système Albrecht
- Soufre : co-limitation N:S, acides aminés soufrés et antagonisme S-Se : pendant S du continuum sol-aliment-santé
- Saturation du MAOM et plafond de séquestration : la limite du stockage organo-minéral
- Carbon Use Efficiency (CUE) microbienne : l'arbitrage stockage / respiration
- Biodisponibilité
- Méthanogenèse
Biostimulation indigène KNF/JADAM et thermodynamique redox
Fermenter à l'abri de l'air conserve l'énergie du substrat au lieu de la brûler en chaleur, et préserve l'azote. L'hydrolysat de poisson libère des acides aminés qui nourrissent la plante et capturent des métaux comme le fer ou le zinc pour les rendre absorbables.
L'intérêt n'est pas la recette mais le mécanisme : ces préparations abaissent la tension d'oxygène du milieu et la corrigent, un peu comme on rééquilibre une pile. Comprendre cela, c'est pouvoir adapter chaque recette à son sol au lieu de la copier aveuglément.
Science
Les biostimulations « indigènes » (KNF de Cho Han Kyu, JADAM, LiFoFer…) reposent sur des mécanismes génériques que ces recettes ne font qu'illustrer — l'intérêt est le mécanisme, pas la recette.
Hydrolyse protéique anaérobie : le Fish Amino Acid (FAA) est un hydrolysat de poisson lacto-fermenté : des protéases (autolyse + microbiennes) libèrent peptides courts et acides aminés libres, l'anaérobiose préservant l'azote (volatilisation ammoniacale limitée). Triple fonction : nutritive (N organique directement assimilable), chélatrice (les acides aminés complexent surtout les métaux de transition Fe, Zn, Cu, Mn — plus faiblement Mg/Ca ; le bore et le molybdène, anioniques, ne sont pas chélatés ainsi), élicitatrice (oligopeptides à activité élicitrice hypothétique — non établis comme MAMPs). Les teneurs annoncées (azote de l'ordre de 1,4-2 %) sont indicatives et très variables selon la matière première.
Fermentation anaérobie (bokashi…) : elle conserve l'essentiel de l'énergie chimique du substrat (~90 %) dans les métabolites, là où le compostage aérobie la dissipe en chaleur ; le CO₂ dégagé est un indicateur indirect d'activité fermentaire pour les voies hétérofermentaires et les levures — la lactofermentation homofermentaire n'en produit pas. Un substrat à C/N élevé (de l'ordre de 25-30) reste proche du seuil d'immobilisation de l'azote.
Capacité redox : distinguer l'intensité (Eh, mV, instantané) de la réserve : la capacité redox / pouvoir tampon redox (poising capacity) est l'aptitude d'un milieu à résister aux variations d'Eh, maximale quand un couple (ex. Fe²⁺/Fe³⁺) coexiste à parts égales. Elle repose sur les pools oxydant (O₂, NO₃⁻, oxydes Mn/Fe, sulfates) et réducteur (Fe²⁺, sulfures et surtout matière organique labile). Les lacto-ferments abaissent l'Eh (consommation d'O₂ et accumulation de métabolites réducteurs — la production de thiols étant marginale) et corrigent le redox du milieu.
Diagramme Eh-pH (Pourbaix) : « boussole » de la spéciation : un point (Eh, pH) situe l'état du milieu et indique quelles espèces redox-sensibles (Fe, Mn, S, N) sont stables et biodisponibles (zone favorable à la biologie ≈ Eh 200-400 mV). À lire en écarts relatifs (l'électrode Pt donne un potentiel mixte hors équilibre) ; le rH2 (= Eh/29,5 + 2·pH) normalise du pH pour comparer les sols (sol sain ≈ 24-29).
Cards en dialogue (18)
- Approfondit
- Approfondi par
-
- Microorganismes prédateurs indigènes (IPMO) : la capture ciblée par appât insecte
- PNSB (Purple Non-Sulfur Bacteria) : Rhodopseudomonas et la biofertilisation photosynthétique multi-fonctionnelle
- Capture indigène vs inoculum standardisé : doctrine de l'origine du consortium microbien
- Doctrines fermentaires KNF vs JADAM : matrice des oppositions de Cho Han Kyu et Cho Youngsang
- Voir aussi (11)
-
- CEP : double identité entomopathogène/endophyte et CBC
- rH2, capacité redox et poising capacity : au-delà de l'Eh ponctuel
- Extraits d'algues marines : phycocolloïdes, bétaïnes et mimétiques phytohormonaux
- Synthetic Communities (SynComs) : ingénierie rationnelle de consortia microbiens pour l'agriculture régénérative
- Extraits microbiens aérobies : thé de compost oxygéné (AACT) et lombrithé
- Biostimulants microbiens vs non-microbiens : cadre fonctionnel de la biostimulation
- Labour
- Ration du sol
- Agroforesterie
- Mère de vinaigre
- Procédés doux et matrices complexes : la synergie plutôt que l'isolat
ACS : les 3 piliers (non-labour, couverture permanente, rotation diversifiée)
Ne pas labourer préserve la charpente du sol et les réseaux de champignons ; la couverture permanente nourrit la pompe à carbone ; la rotation diversifiée entretient la diversité des microbes et casse les cycles de maladies. Chaque pilier renforce les deux autres.
Des travaux récents lisent ces trois piliers comme des principes de design du vivant : préserver ce qui est ancien, nourrir en continu, diversifier pour durer. C'est une lecture stimulante, pas une équivalence démontrée.
Science
Card intégratrice de l'Agriculture de Conservation des Sols (ACS). Les trois piliers agissent en synergie :
- non-labour : préserve la structure et les réseaux mycorhiziens ;
- couverture permanente : protège la surface et alimente la pompe à carbone (continuité des exsudats, recrutement des keystones) ;
- rotation diversifiée : maintient la diversité microbienne, construit la redondance fonctionnelle et rompt les cycles de pathogènes.
Le cadre coévolutif récent (Shelake 2026) valide ces piliers : le non-labour préserve des voies mycorhiziennes anciennes (que la nodulation a réutilisées), la couverture entretient le recrutement microbien, la rotation bâtit la redondance. Les trois piliers se lisent comme les analogues agronomiques de plusieurs principes de design de ce cadre — lecture interprétative, non une équivalence démontrée.
Cards en dialogue (14)
- Approfondit
- Approfondi par
- Voir aussi (8)
-
- Continuum ami-ennemi microbien : plasticité rapide des statuts
- Socio-économique : travail, filières, risques et dépendances
- Profil sol 'franc' (loam) : effets intermédiaires, sensibilité au travail du sol
- Chantier de reconstruction d'un sol sableux structurellement vide : doctrine intégrée
- Seuils nutritionnels et bascule mutualisme-parasitisme (H1 Shelake 2026)
- Mémoire transgénérationnelle plante-microbiome
- Paradoxe du ruissellement en ACS : accumulation surface vs matrice diluée
- Gestion systémique des nématodes à galles : rotations, cultures-pièges et régulation trophique
Diagnostic terrain intégré : du profil bêché au tableau de bord biologique
Au premier niveau, on bêche, on touche, on sent : la structure, l'odeur, la façon dont l'eau s'infiltre. Au deuxième, on compte la vie : vers, nématodes, champignons. Au troisième, on lit l'ADN et on mesure l'oxygène.
Croiser ces trois niveaux, c'est situer son exploitation sur une trajectoire de santé du sol — et décider quoi faire ensuite, sans se payer le laboratoire quand la bêche suffit déjà à répondre.
Science
La démarche diagnostique se structure en trois niveaux, du plus accessible au plus instrumenté :
- Terrain : VESS, test bêche, infiltration, odeurs.
- Biologique : PLFA, Solvita, Baermann, Bongers.
- Avancé : métabarcoding, Eh, métagénomique.
L'arbre de décision croise ces indicateurs pour positionner l'exploitation sur la trajectoire de santé du sol (par analogie avec une chronoséquence).
L'évaluation visuelle du sol (VESS, test bêche) relève d'une démarche formalisée de diagnostic visuel de la structure (Guimarães, 2017), complétée côté physique par la conductivité hydraulique à saturation, révélatrice des distributions de pores (Dexter, 2009). Parmi les indicateurs biologiques, les indices fondés sur les nématodes (NBIs), calculés sur la classification colonisateur-persisteur, comptent parmi les plus employés par les écologues du sol : trente ans après le développement du Maturity Index, une revue de 672 études empiriques en milieu terrestre en évalue l'application, l'utilité et les directions futures, constatant des réponses dissemblables selon les contextes (Preez, 2022).
Cards en dialogue (19)
- Approfondit
- Approfondi par
-
- Types de sols et comportements différenciés
- Mésofaune : collemboles et acariens, régulateurs des micro-habitats
- Boucle microbienne du sol : protozoaires, paradoxe fonctionnel et minéralisation pilotée
- Brix réfractomètre : seuils opérationnels et interprétation agronomique
- Eh terrain : sondes redox, gradient mV/cm et méthode in situ
- Tests enzymatiques β-glucosidase / phosphatase / uréase : protocoles et seuils
- Lutte intégrée bio-mimétique 4 piliers : cadre stratégique unifié pour la gestion des bioagresseurs
- Voir aussi (10)
-
- Compaction / semelle / faible porosité
- ‘Faim d’azote’ après apport carboné (immobilisation)
- Biomarqueurs fonctionnels du sol vivant : diagnostic par activités et ratios plutôt que par stocks
- Profil sol 'franc' (loam) : effets intermédiaires, sensibilité au travail du sol
- Sol ‘inerte’ / faible activité apparente
- Nématodes : guildes trophiques, indice de Bongers et diagnostic
- Calibration régionale du diagnostic de santé du sol : SMAF/CASH/SHAPE et groupes de pairs
- Signature olfactive du sol vivant : COV microbiens (géosmine, pétrichor)
- IFT : Indice de Fréquence de Traitement : le compteur de dépendance chimique
- Le bon comparateur : multifonctionnalité vs monocritère
Fermentations appliquées : bokashi, EM, KNF, JADAM, LiFoFer
Leur point commun est thermodynamique : la fermentation conserve l'essentiel de l'énergie du substrat, là où le compostage la brûle en respirant. Elles diffèrent par la philosophie — capturer des microbes locaux ou acheter un mélange prêt — et par le coût, quasi nul pour certaines, élevé pour d'autres.
Une vigilance : ces intrants fermentés peuvent faire circuler des gènes de résistance aux antibiotiques. Un point à garder en tête, sans céder à la peur.
Science
Comparaison des cinq grands systèmes de fermentation à la ferme (bokashi, EM, KNF, JADAM, LiFoFer). Point commun : reproduire les conditions anaérobies des microsites de litière et des sédiments (la litière forestière étant majoritairement aérobie en forêt tempérée saine), sur une base thermodynamique partagée — la fermentation conserve l'essentiel de l'énergie chimique du substrat, là où le compostage aérobie la minéralise en CO₂ (respiration, la chaleur n'étant que le sous-produit de l'oxydation).
Différences : philosophie (KNF = capture indigène ; EM = consortium commercial d'Effective Microorganisms (Higa, 1991)), coût (JADAM ≈ 0, EM élevé), intrants. Le mode d'action des consortia demeure débattu : sur courgette en conditions contrôlées, EM et son extrait sans cellules améliorent tous deux la croissance et induisent des changements métabolomiques comparables, suggérant que l'effet biostimulant repose davantage sur les métabolites libérés que sur l'activité microbienne elle-même (Stojkov, 2025).
Vigilance : le sol constitue un réservoir et un foyer de propagation des gènes de résistance aux antibiotiques (ARG), dont l'abondance peut être modulée par le microbiome et les propriétés physicochimiques du sol (pH, humidité) (Han, 2022) ; le système sol-plante forme une voie de dissémination des ARG de l'environnement vers l'être humain, un risque à surveiller dans les intrants fermentés (Zhu, 2019).
Cards en dialogue (20)
- Contredit
- Approfondi par
-
- Microorganismes prédateurs indigènes (IPMO) : la capture ciblée par appât insecte
- PNSB (Purple Non-Sulfur Bacteria) : Rhodopseudomonas et la biofertilisation photosynthétique multi-fonctionnelle
- Capture indigène vs inoculum standardisé : doctrine de l'origine du consortium microbien
- Doctrines fermentaires KNF vs JADAM : matrice des oppositions de Cho Han Kyu et Cho Youngsang
- Voir aussi (13)
-
- Résistome et transfert horizontal : la face sombre du continuum
- Chélation organique et biostimulation foliaire : acides aminés, hydrolysats et mobilité des oligoéléments
- Gestion systémique des nématodes à galles : rotations, cultures-pièges et régulation trophique
- Successions microbiennes de la fermentation lactique : continuum sol -> récipient -> tube digestif
- Extraits microbiens aérobies : thé de compost oxygéné (AACT) et lombrithé
- Autonomie et low-tech : réduire la dépendance aux intrants et technologies externes
- Méthanogènes
- Anaérobiose
- ASD : désinfection anaérobie du sol par biofumigation
- Conservation-transfert : stocker sans perte, laisser le sol transformer
- L'agriculture permanente (King) : 4 000 ans de boucle fermée
- Procédés doux et matrices complexes : la synergie plutôt que l'isolat
- Antifragilité des préparations microbiennes paysannes
Couverts végétaux : design, biomasse et services rendus
Les services rendus s'accumulent : de l'azote capté dans l'air, une structure creusée par les racines, un piège à nitrates qui évite de perdre l'azote vers l'eau, un gîte pour les auxiliaires.
Mieux, certaines variétés paysannes de maïs nourrissent par leurs racines des bactéries qui leur rendent de l'azote — un recrutement que la domestication moderne a partiellement effacé. Semer un couvert, c'est réinviter ce partenariat.
Science
Conception des couverts végétaux multi-espèces : choix des espèces (légumineuses + graminées + crucifères), objectifs LAI > 3 et biomasse > 4 t MS/ha, C/N adapté. Services rendus : fixation du N₂, structuration, piège à nitrates, habitat pour les auxiliaires. Destruction par roulage-crimpage ou par le gel.
Un couvert multi-espèces fonctionne comme un consortium auto-assemblé (l'analogue in situ d'une SynCom) : keystones (légumineuses fixatrices) + redondance fonctionnelle (graminées, crucifères). Des landraces de maïs exsudent des glucides nourrissant des Burkholderia/Azospirillum fournisseurs d'azote (Van Deynze 2018) ; le microbiome du téosinte reste lié à son environnement ancestral (Barnes 2024). Ce recrutement est orchestré par des gènes d'assemblage du microbiote, érodés par la domestication et conservés par les landraces.
Cards en dialogue (17)
- Approfondi par
- Voir aussi (15)
-
- Évolution des plantes et construction du sol : racines, mycorhizes, rhizosphère, boucles plante–microbiome
- Cycle de l'eau : potentiel hydrique, flux, résilience biologique
- Continuum ami-ennemi microbien : plasticité rapide des statuts
- Le ratio C/N du paillage pilote le ratio Fungi/Bacteria du sol
- Profil sol sableux : plafond MAOM bas, marge structurale maximale, métastabilité biologique
- Profil sol limoneux : battance/érosion, priorité couverture et biofilms de surface
- Évolution écologique du sol : sol nu → climax, stratégies microbiennes r/K et Y-A-S (cadre diagnostique)
- Thermotolérance microbienne : 7 mécanismes
- Faim d'azote comme outil agronomique : déprise adventice et sélection de cortège
- Chantier de reconstruction d'un sol sableux structurellement vide : doctrine intégrée
- M genes : la plante orchestre son microbiome
- Mémoire transgénérationnelle plante-microbiome
- Cry-for-help : recrutement stress-induit du microbiome
- Extraits d'algues marines : phycocolloïdes, bétaïnes et mimétiques phytohormonaux
- Allélopathie : interférence biochimique végétale et leviers agronomiques (couverts, déprise, suppression)
Transition : chronoséquence 4 phases et indicateurs de suivi
D'abord le sevrage, quelques années fragiles ; puis la réorganisation, où le sol se restructure ; puis la maturation, où il devient capable de se défendre seul contre les maladies ; enfin la résilience, où il encaisse les coups. Les bornes sont indicatives : tout dépend du point de départ et du climat.
Pour se repérer, on suit quelques indicateurs simples qui montent en gamme au fil des phases : la structure, les vers, les nématodes, le carbone. Savoir où l'on est sur cette trajectoire évite de s'impatienter ou de renoncer trop tôt.
Science
La transition se lit comme une trajectoire en quatre phases — grille de lecture, par analogie avec une chronoséquence ; les bornes temporelles sont indicatives et contexte-dépendantes (la suppressivité peut émerger dès 3-5 ans ou au-delà de 20 ans selon point de départ, pédoclimat et pratiques) :
- Sevrage (0-3 ans) — risque de priming.
- Réorganisation (3-7 ans).
- Maturation (7-15 ans) — émergence de la suppressivité.
- Résilience (15+ ans) — antifragilité.
La suppressivité des maladies telluriques se construit dans la durée : des essais comparant amendements organiques fermentés, compostés ou frais, appliqués à court ou long terme en sols cultivés, relient la suppressivité à la nature et à la durée d'application de l'amendement (van der Sloot, 2024). Le suivi mobilise des indicateurs complémentaires : VESS (structure), PLFA (biomasse microbienne), ratio F/B, COS, et les indices nématologiques — fondés sur la classification colonisateur-persistant, utilisés depuis trente ans et évalués sur 672 études empiriques en milieux terrestres (Preez, 2022).
Cards en dialogue (13)
- Approfondit
- Voir aussi (10)
-
- ‘Faim d’azote’ après apport carboné (immobilisation)
- Coût réel de l'énergie fossile et 'esclaves énergétiques'
- Temporalité, irréversibilités et entropie des pratiques humaines
- Socio-économique : travail, filières, risques et dépendances
- Mode d’application : surface vs incorporation (profondeur) change le diagnostic
- Sol ‘inerte’ / faible activité apparente
- Chantier de reconstruction d'un sol sableux structurellement vide : doctrine intégrée
- Mémoire transgénérationnelle plante-microbiome
- Biomarqueurs fonctionnels du sol vivant : diagnostic par activités et ratios plutôt que par stocks
- Calibration régionale du diagnostic de santé du sol : SMAF/CASH/SHAPE et groupes de pairs
Cycle de l'azote : fixation, minéralisation, nitrification, pertes
La fixation ouvre le cycle : des bactéries diazotrophes, libres ou en symbiose avec les légumineuses, transforment l'azote de l'air (N₂) en ammoniac. La minéralisation suit : d'autres microbes décomposent la matière organique morte et libèrent l'azote en ammonium. La nitrification oxyde cet ammonium en nitrate, la forme la plus mobile — donc la plus facilement perdue.
L'azote se perd sans cesse : dénitrification (passage en gaz N₂ ou N₂O en sol saturé), lixiviation (lessivage du nitrate), volatilisation (fuite d'ammoniac). Enfin, une matière organique pauvre en azote est temporairement immobilisée par les microbes : un tampon qui retient l'azote.
Illustration : Fig. card 52-A · Cycle de l'azote : fixation, minéralisation, nitrification, pertes…
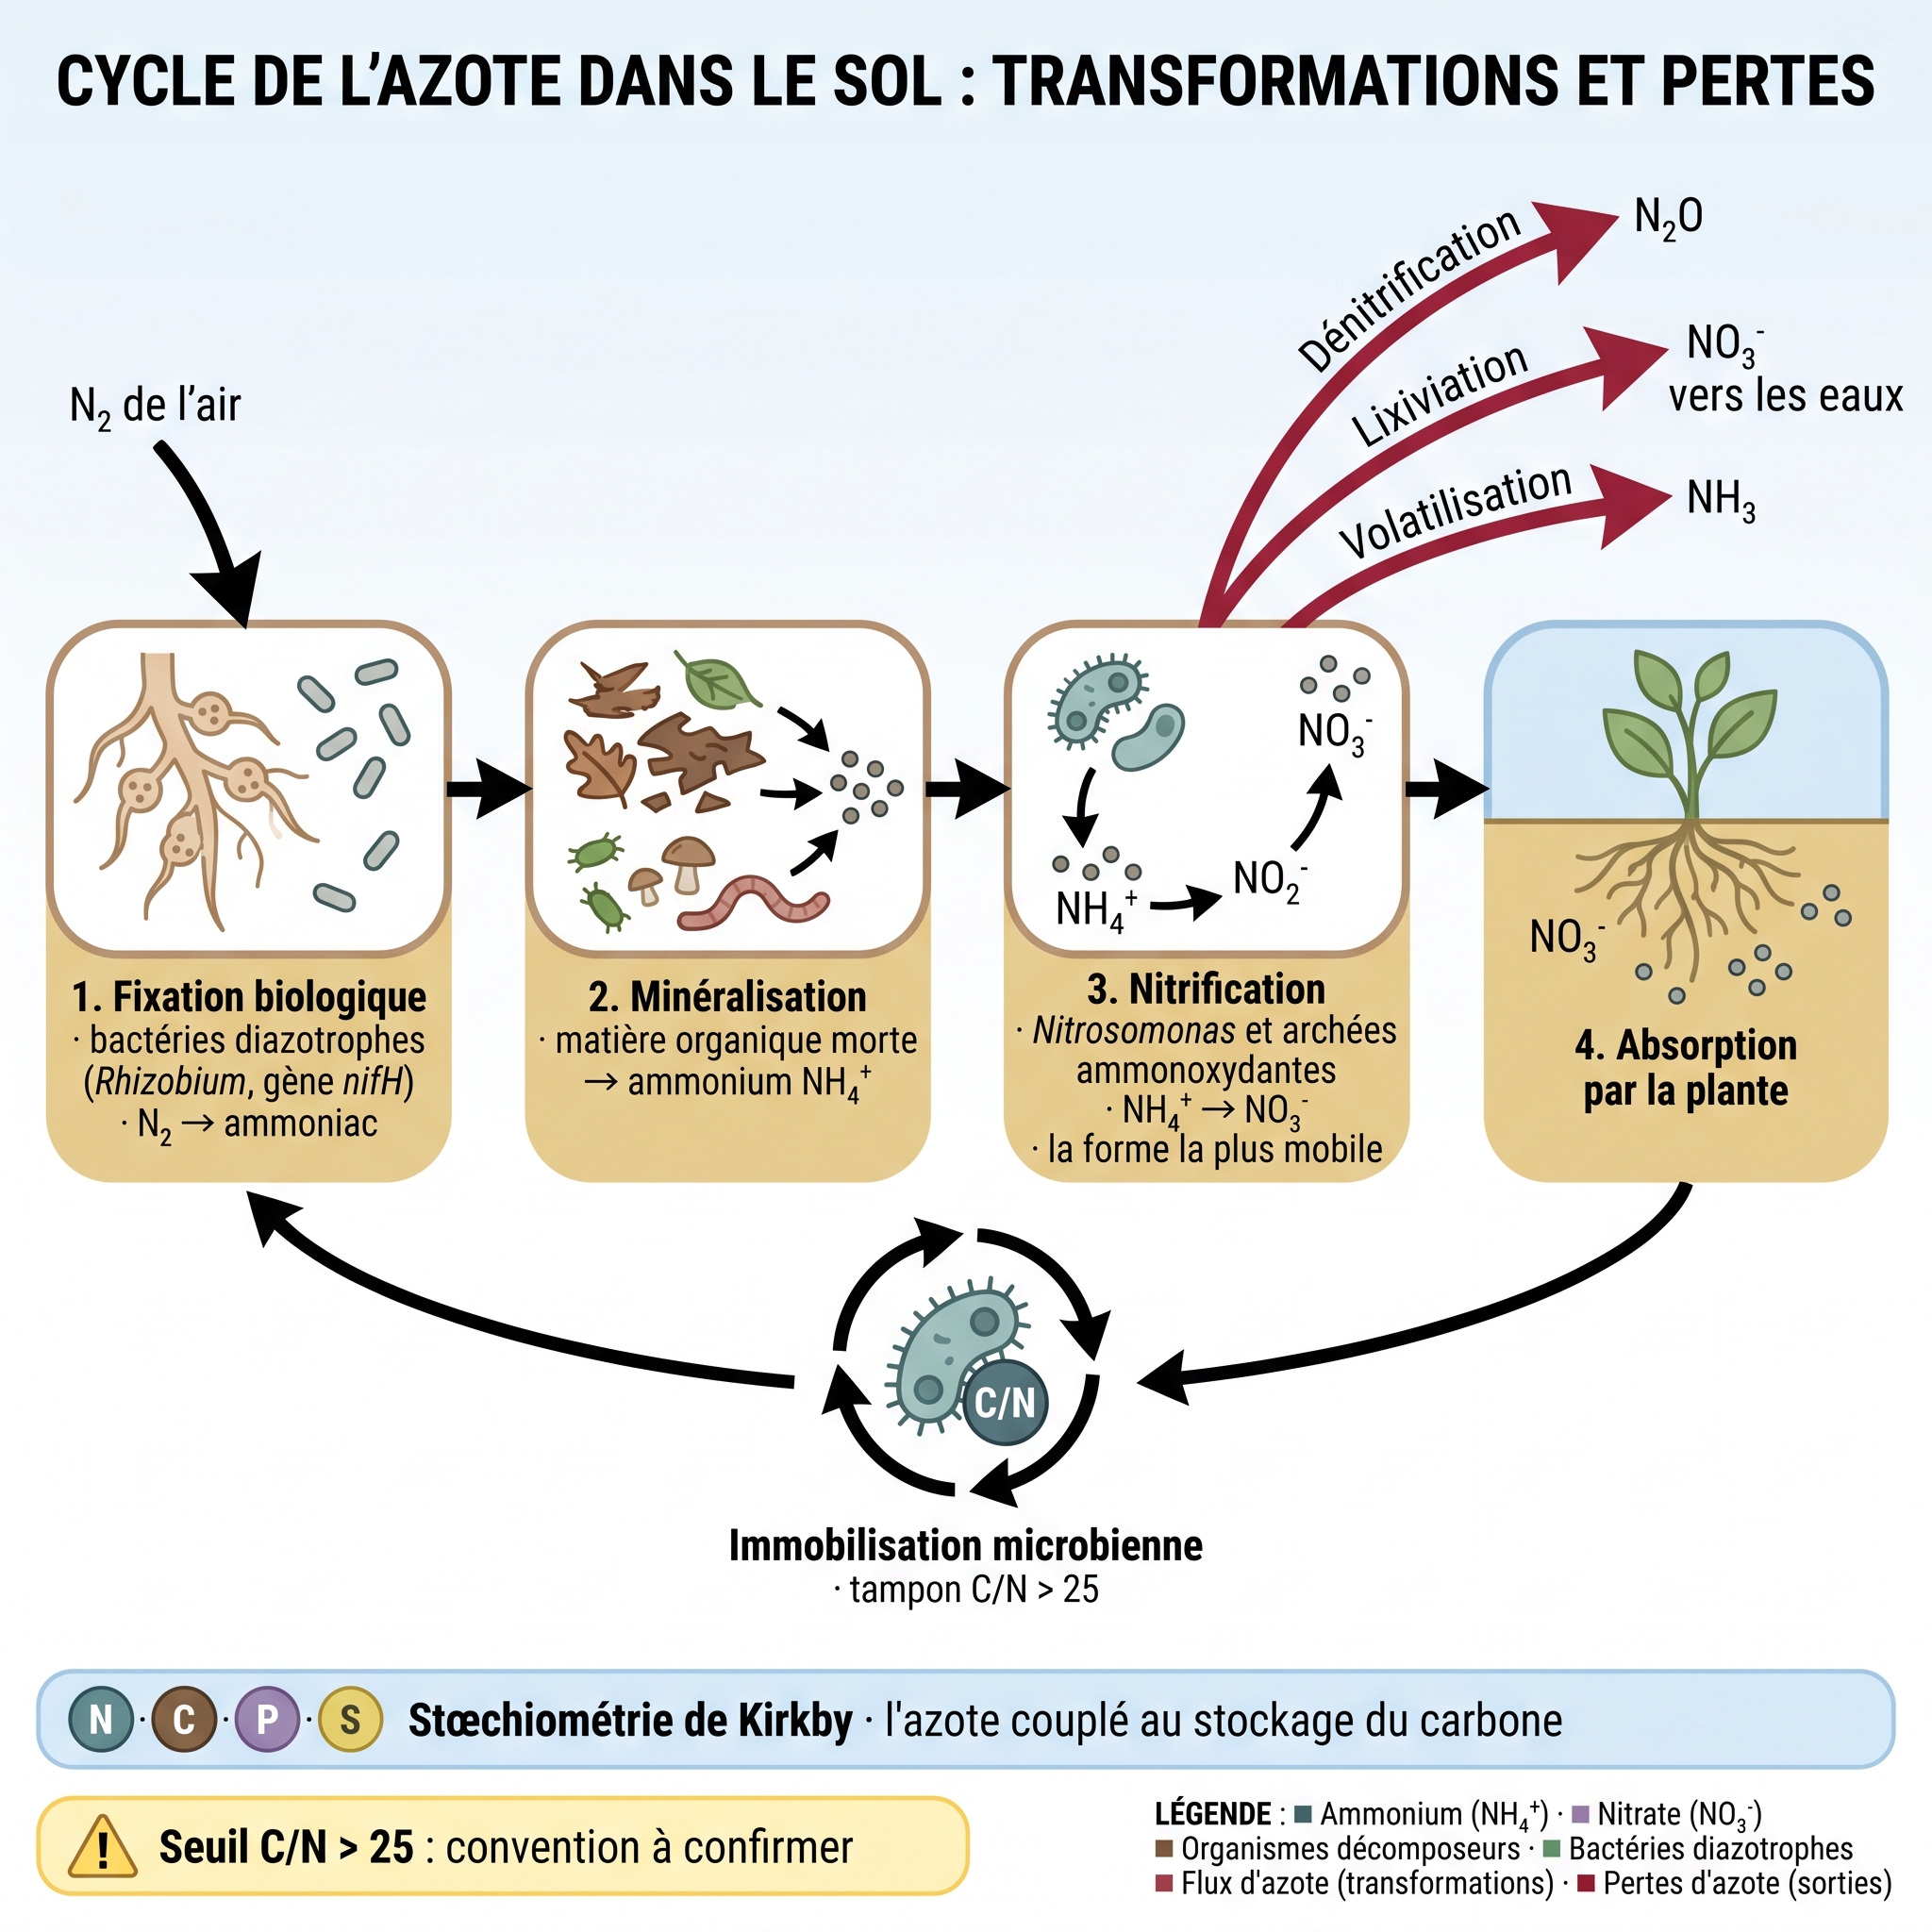
Science
Card intégrant les transformations de N : fixation biologique (BNF, Rhizobium, nifH) → ammonification → nitrification (AOA, Nitrosomonas) → absorption ou pertes (dénitrification N₂O, lixiviation NO₃⁻, volatilisation NH₃). L'immobilisation microbienne (au-delà d'un C/N d'environ 25-30, seuil conventionnel du turn-over de l'azote — Saadat et al., 2025) est un tampon clé. Stœchiométrie CNPS de Kirkby couple N au stockage C.
cas brésilien — souches SEMIA et modèle FBN à grande échelle :
- 4 souches officiellement homologuées par MAPA pour le soja : B. japonicum, B. diazoefficiens, B. elkanii (SEMIA 587) et B. elkanii (SEMIA 5019). Sélectionnées pour résilience aux sols tropicaux acides et compétition vs bactéries indigènes moins efficaces (Hafiz 2021, Rocha 2021, Santos 2019).
- FBN non-nodulante chez la canne à sucre : l'endophyte Gluconacetobacter diazotrophicus (découverte par Johanna Döbereiner) fournirait jusqu'à 60-80 % des besoins en N de certaines variétés (estimations historiques Boddey/Urquiaga, contestées — revues récentes plus prudentes, parfois <50 % : Thiebaut et al., 2022 ; Martins et al., 2020), rendant la production de bioéthanol énergétiquement viable (Boddey, 1995 ; Dent, 2018).
- Couplage N–P : dans le Cerrado, la disponibilité du P est un facteur limitant critique de la nodulation (fixation = très coûteuse en énergie). Une carence en P réduit directement nombre et poids des nodules. Le modèle brésilien repose sur un équilibre strict chaulage + apport P (Hungria & Vargas 2000 ; Fageria et al. 2011).
Cards en dialogue (25)
- À lire d’abord
- Approfondi par
-
- ‘Faim d’azote’ après apport carboné (immobilisation)
- Cobalt, vitamine B12 et fixation biologique de l'azote : la chaîne oligoélémentaire oubliée
- Boucle microbienne du sol : protozoaires, paradoxe fonctionnel et minéralisation pilotée
- Triade Fe/Mo/Co pour la nitrogénase : stoechiométrie micronutritionnelle de la fixation biologique de l'azote
- AOA, AOB et comammox : les trois guildes nitrifiantes, partage de niche et implications agronomiques
- Voir aussi (17)
-
- Modèle brésilien FBN soja : enseignements et limites d'une transition continentale réussie ET ambivalente
- Immunité nutritionnelle : forme d'azote (NH₄⁺/NO₃⁻) → protéosynthèse → signalisation JA-SA
- Profil sol hydromorphe/organique : redox bas, émissions, gestion de l'eau centrale
- Azote (formes, pertes) → stœchiométrie → stratégies microbiennes
- Stœchiométrie CNPS et modèle AMG
- Co-inoculation Bradyrhizobium + Azospirillum : synergie physiologique au-delà de la FBN
- Archées : troisième domaine écologiquement distinct dans le sol
- Cycle du potassium : minéraux primaires, KSB et biodisponibilité dans les sols vivants
- Couplages biogéochimiques Fe-P-S-N sous alternance redox : vivianite, NDFO et gouvernance des nutriments
- Diagnostic plante : pH et EC de sève foliaire/pétiolaire comme signatures nutritionnelles précoces
- PNSB (Purple Non-Sulfur Bacteria) : Rhodopseudomonas et la biofertilisation photosynthétique multi-fonctionnelle
- Effet Birch : pulse de minéralisation à la réhumectation des sols secs
- Effet d’amorçage
- Décomposition
- N₂O : émissions agricoles, mécanismes et mitigation
- BNI : quand la plante freine sa propre nitrification
- Conservation-transfert : stocker sans perte, laisser le sol transformer
Cycle du phosphore : fixation, solubilisation biologique, mycorhizes
Il se retrouve piégé sur les oxydes ou le calcaire. Des bactéries le libèrent par leurs acides, et surtout les champignons mycorhiziens, dont les filaments vont le chercher loin et le transportent aux racines. En sol calcaire, le calcium le bloque ; on le corrige en localisant le soufre ou en nourrissant ces bactéries de matière fraîche. Le phosphore est aussi la clé de la fixation biologique de l'azote : sans lui, les légumineuses font moins de nodules. Mieux : ces champignons attaquent aussi la roche, libérant des minéraux — mais cet effet reste modéré ; un apport de poussière de roche est bien plus efficace quand cette biologie est active.
Illustration : Fig. card 53-A · Cycle du phosphore : fixation, solubilisation biologique, mycorhizes…
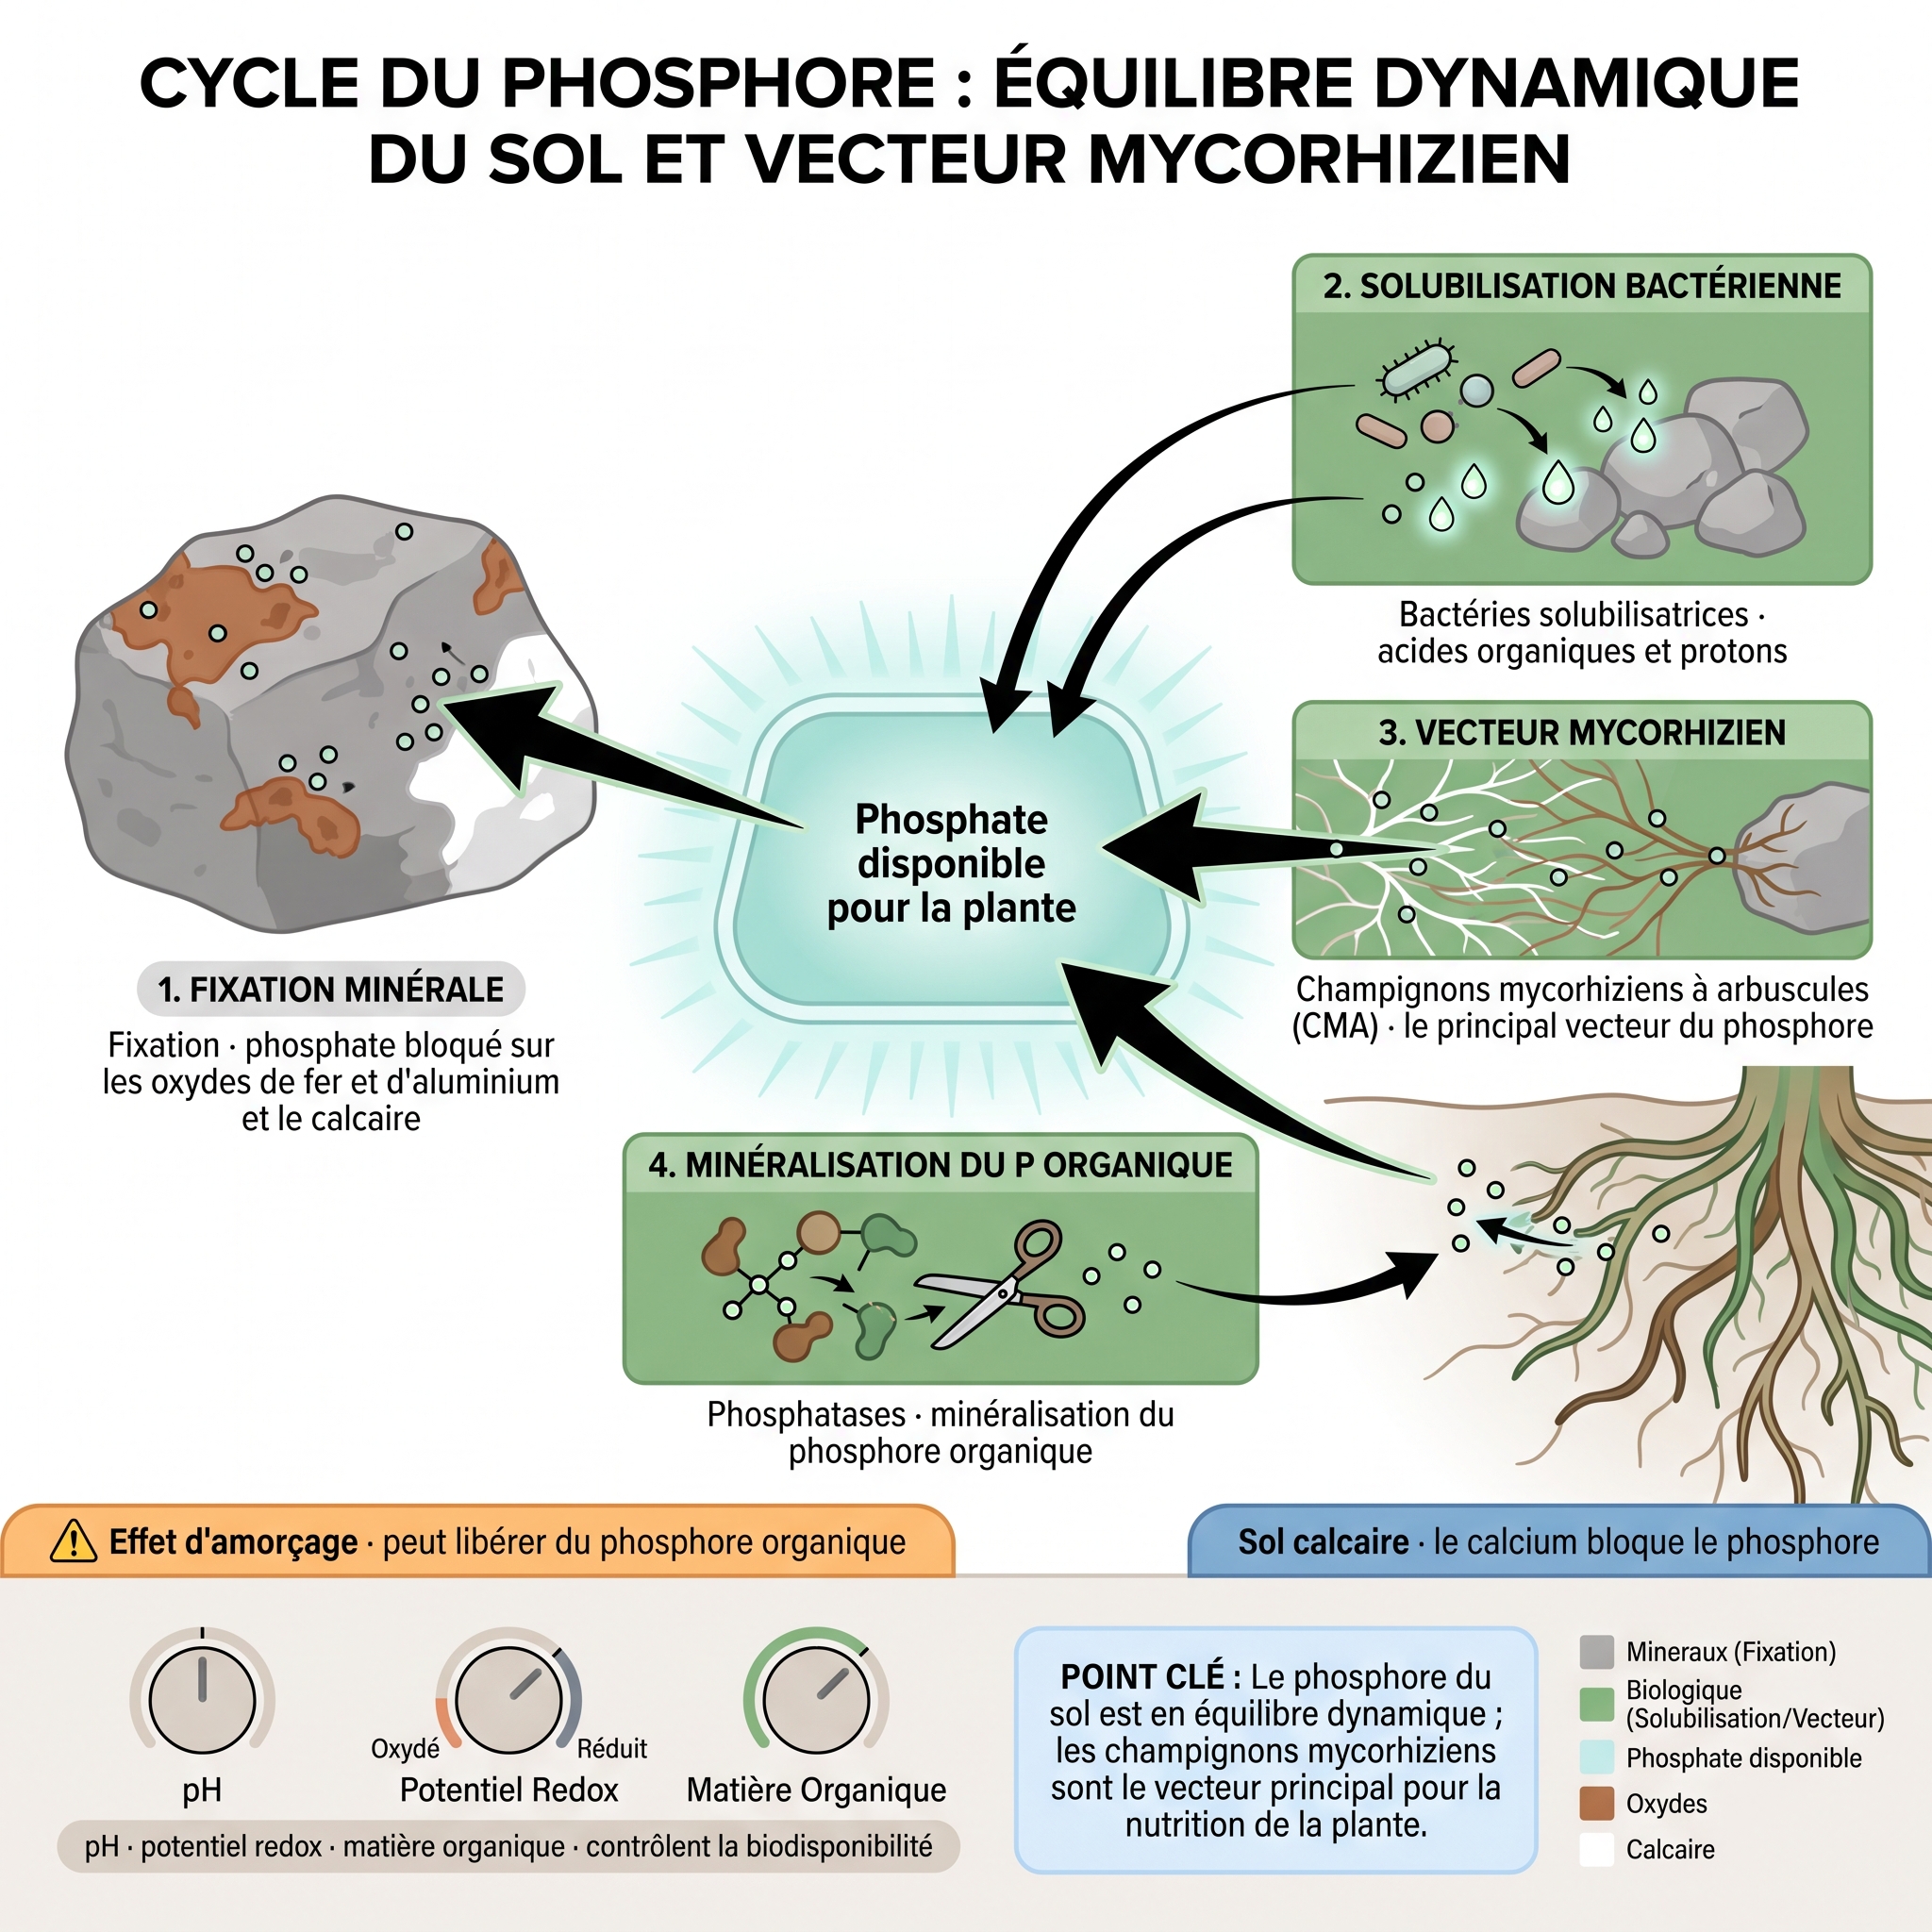
Science
Card structurant la dynamique du P : fixation sur oxydes Fe/Al ↔ solubilisation par PSB (acides organiques, protons) et CMA (hyphes), minéralisation du P organique par phosphatases. La mycorhize est le principal vecteur de P. pH, Eh et MO contrôlent la biodisponibilité. Le priming effect peut libérer du P organique.
Phosphate naturel et dissolution biologique
- Phosphorite, apatite : sources P à libération lente, solubilisation pH-dépendante (le guano, à fraction soluble notable, est plus rapidement disponible)
- CMA : principal vecteur de P, mais aussi acteurs de l'altération des silicates par acides organiques (Finlay et al., 2020)
- En sol calcaire : blocage P par Ca → correction par S0 en localisation racinaire ou stimulation PSB via MO fraiche
Couplage p ↔ fixation biologique n
- Le P est cofacteur limitant de la FBN symbiotique (Rhizobium, Bradyrhizobium) : la nodulation est un processus très coûteux en énergie. Carence P → moins de nodules, nodules plus légers, moins actifs (Zhong et al., 2022).
- Cas du Cerrado brésilien : sols acides à forte fixation P. Le modèle de succès FBN repose sur équilibre chaulage + apport P (correction localisée) pour maximiser l'efficience de la symbiose (Hungria & Vargas, 2000).
Altération biologique des silicates par les mycorhizes
- Les CMA (champignons mycorhiziens à arbuscules) ne sont pas que des transporteurs de P — ils contribuent aussi à l'altération des silicates par production d'acides organiques (oxalate, malate) — effet modéré, le rôle majeur étant documenté pour les ectomycorhizes (Jongmans et al., 1997 ; revue : Finlay et al., 2020 ; Wild et al., 2022).
- Implication : un amendement à base de poussière de roche (basalte, phonolite) voit son efficacité modulée par la biologie du sol — le rôle amplificateur des mycorhizes y est débattu, sans démonstration d'amplification systématique (Son et al., 2020 ; Vienne et al., 2022).
- Les hyphes et les protéines fongiques de type glomaline (GRSP — mélange hétérogène, statut débattu) favorisent l'agrégation du sol et la stabilisation du C organique → triple fonction des mycorhizes : transport P + altération roche + structure sol.
- Cf amendements minéraux et basalte.
Cards en dialogue (25)
- Approfondi par
- Voir aussi (21)
-
- Cycle du carbone : de la photosynthèse à la MAOM
- Seuils nutritionnels et bascule mutualisme-parasitisme (H1 Shelake 2026)
- Tests enzymatiques β-glucosidase / phosphatase / uréase : protocoles et seuils
- KSB et altération biologique des silicates : acidolyse, chélation et synergie AMF-bactéries
- Auxotrophie et co-évolution : le virage lipidique CMA-plante comme signature de symbiose obligatoire
- Paradoxe P-Zn et biofortification du zinc : pendant Zn du continuum sol-aliment-santé
- Amendements minéraux structurants : levier minéral vs levier organique
- Co-inoculation Bradyrhizobium + Azospirillum : synergie physiologique au-delà de la FBN
- Cycle du potassium : minéraux primaires, KSB et biodisponibilité dans les sols vivants
- Chélation organique et biostimulation foliaire : acides aminés, hydrolysats et mobilité des oligoéléments
- Diagnostic plante : pH et EC de sève foliaire/pétiolaire comme signatures nutritionnelles précoces
- Cobalt, vitamine B12 et fixation biologique de l'azote : la chaîne oligoélémentaire oubliée
- Boucle microbienne du sol : protozoaires, paradoxe fonctionnel et minéralisation pilotée
- Brix réfractomètre : seuils opérationnels et interprétation agronomique
- Densité nutritionnelle alimentaire (sol → assiette)
- Scavenging vs Mining : stratégies fongiques d'acquisition des nutriments dans le sol
- Adsorption
- Oxydes Fe/Al
- Mycorhize
- Legacy phosphorus : le trésor enfoui des sols agricoles
- Mycorhize éricoïde
Cycle du carbone : de la photosynthèse à la MAOM
Le parcours est précis : la plante fabrique des sucres, en libère une partie par ses racines, ce qui nourrit les microbes ; ceux-ci meurent et leurs restes se collent aux minéraux. Le calcium joue un rôle de colle entre minéraux et matière organique, et la poussière de roche basaltique augmente ce stock dans certains essais. Les vers de terre, en enfouissant, y participent — mais sous réchauffement, leur activité accrue peut accélérer la perte de carbone : le signe net, puits ou source, reste débattu. Le piège n'est donc pas inconditionnel, et demande un suivi de la température du sol.
Illustration : Fig. card 54-A · Cycle du carbone : de la photosynthèse à la MAOM…
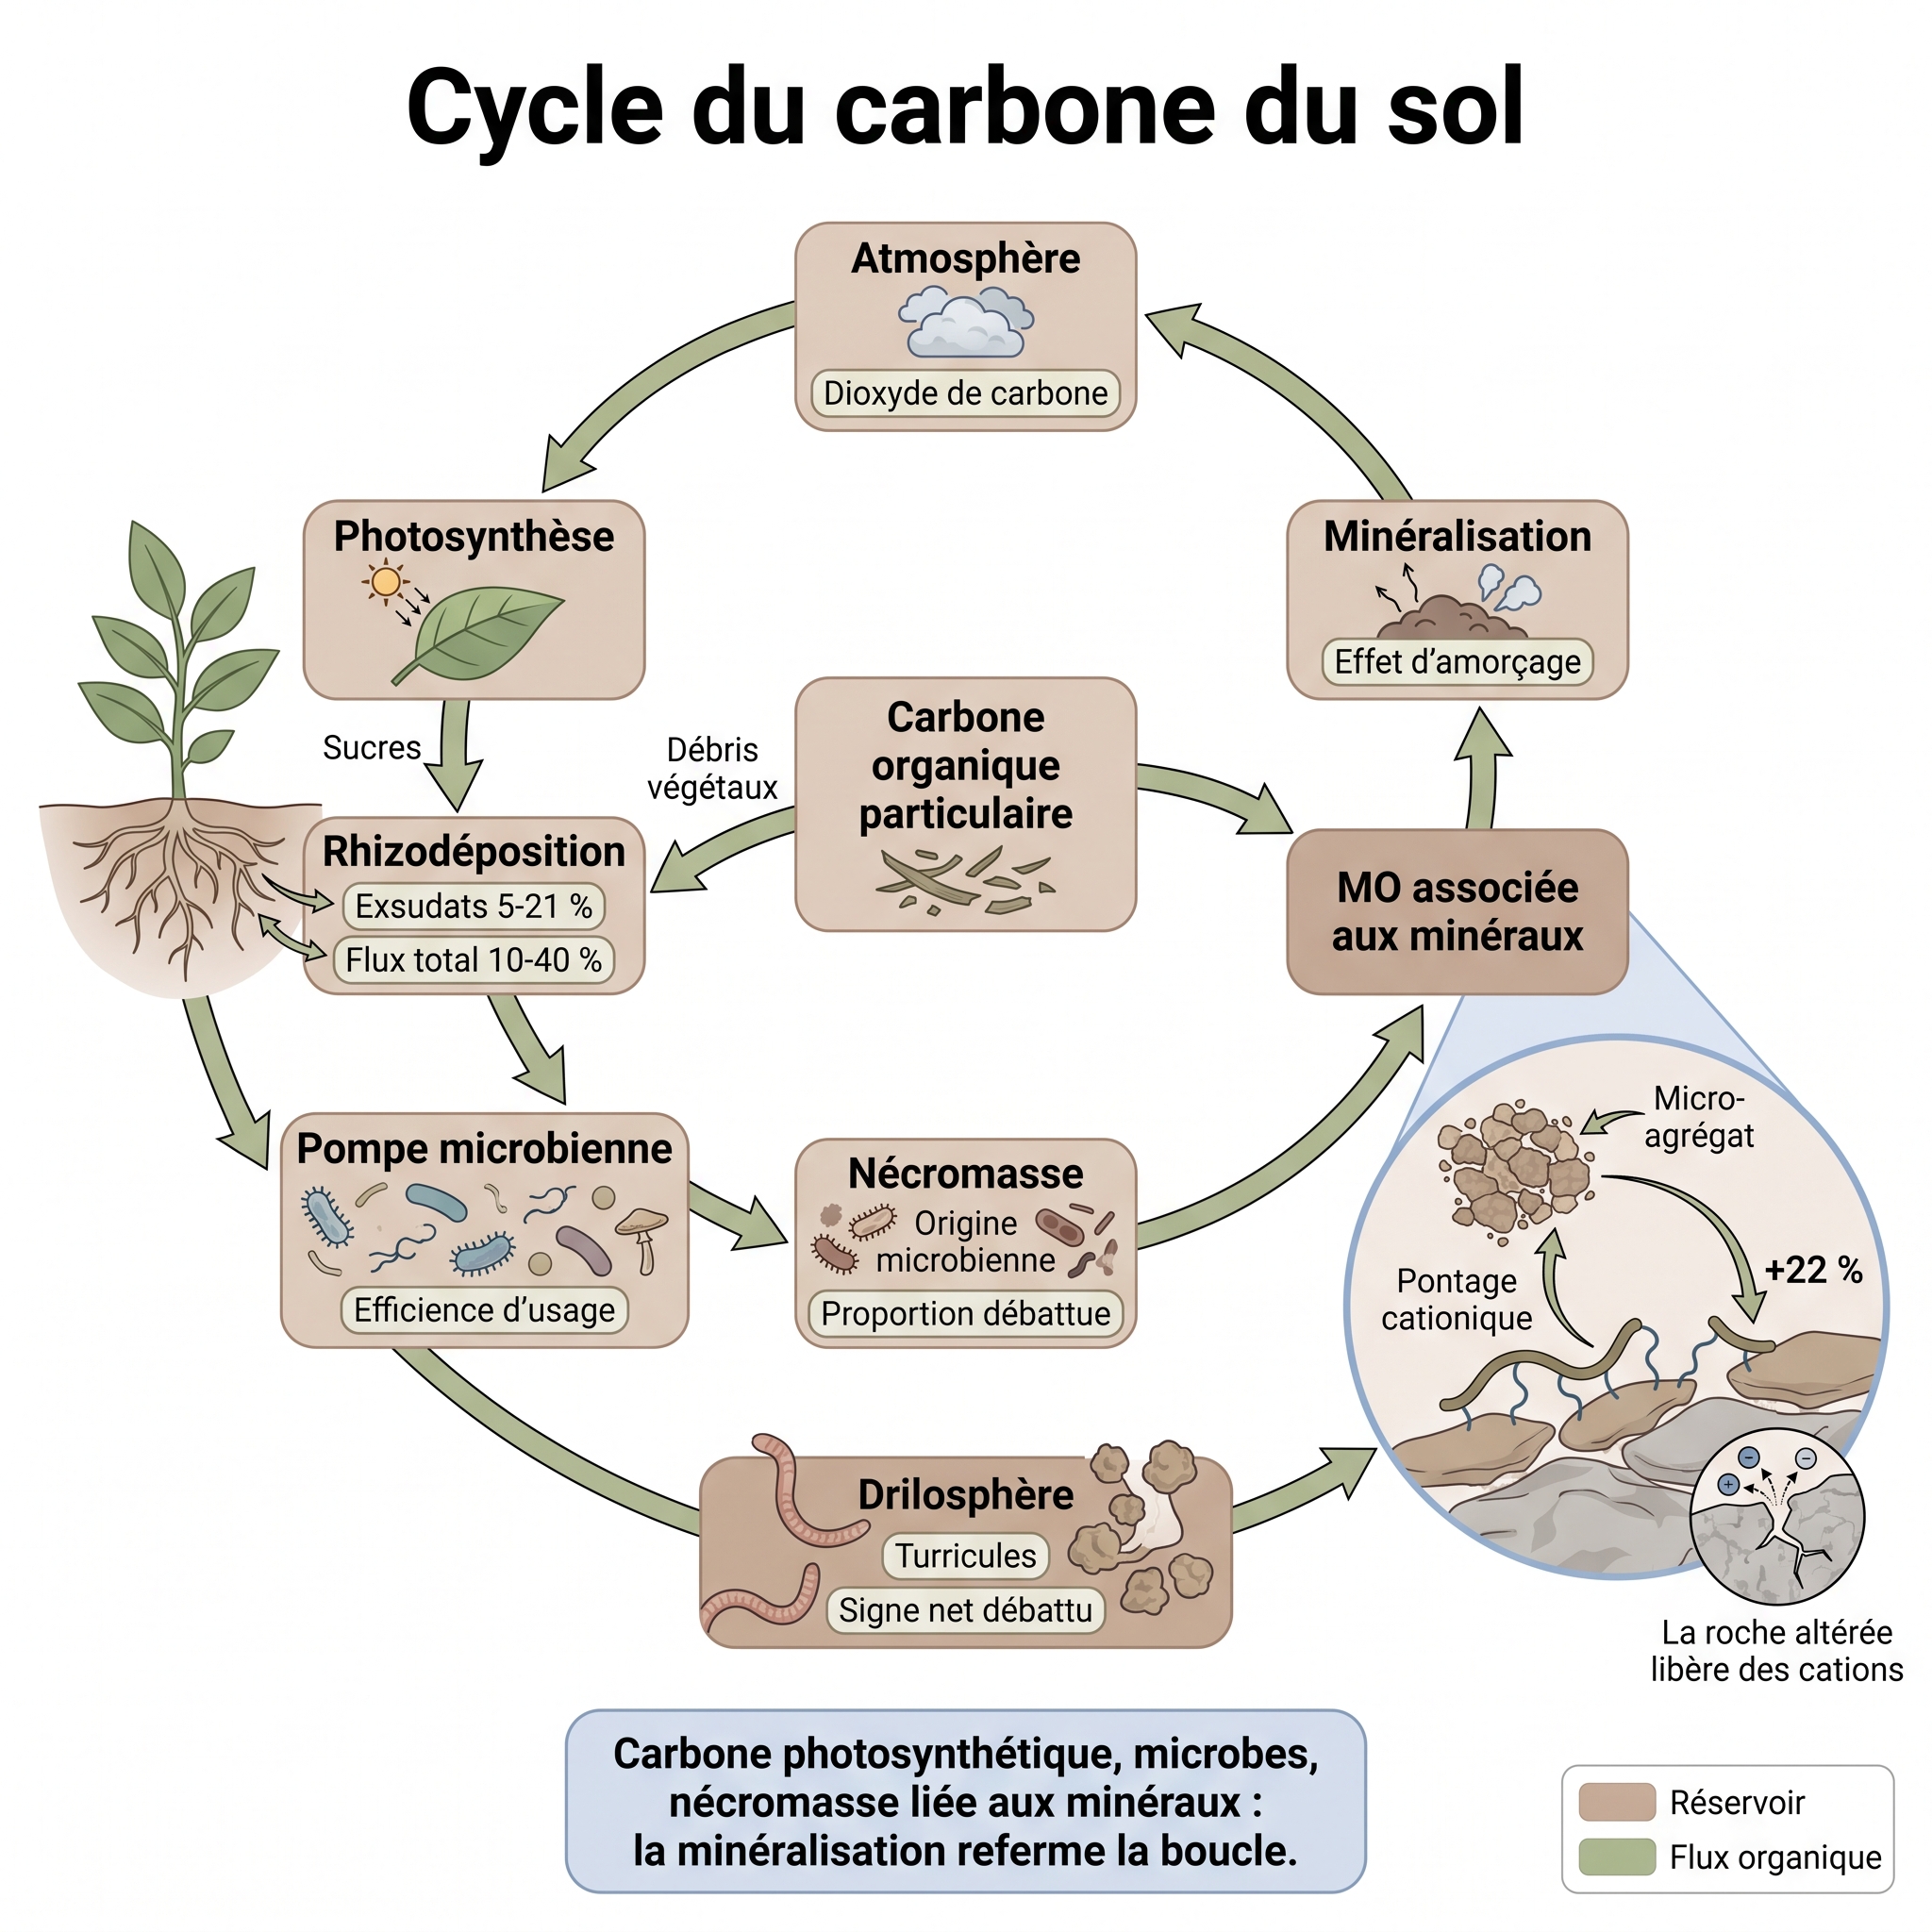
Science
Card traçant le parcours du C : photosynthèse → rhizodéposition racinaire (exsudats proprement dits 5-21 %, flux total 10-40 %) → pompe microbienne → nécromasse → MAOM ou POC. Le CUE détermine l'efficience. Le priming effect peut déstabiliser le C stable. Modèles AMG et RothC ; une chaîne causale en est la traduction agronomique.
Pontage cationique et MAOM (Basile-Doelsch et al. 2020) :
- Le Ca2+ forme des ponts entre surfaces minérales et molécules organiques → micro-agrégats protégeant le C de la minéralisation
- Poussière de roche basaltique : MAOM +22% (Buss et al., 2023)
- Le calcium extractible est l'un des meilleurs prédicteurs du stock de C stable dans le sol
- Néo-formation d'argiles en présence de MO en décomposition → augmente les sites d'adsorption pour le C
apport Shelake 2026 : dimension coévolutive au cycle C. 3 événements endosymbiotiques ont fixé des microbes entiers en organelles (mitochondrie, chloroplaste, nitroplaste). La pompe microbienne à carbone continue ce processus à l'échelle de la nécromasse : une part majeure du C organique stable est d'origine microbienne post-mortem — proportion débattue selon les contextes et les sources (~33-62 %, Kästner et al. 2021 ; jusqu'à 50-80 % en sols argilo-limoneux, Liang et al. 2017 ; Cotrufo 2022). Les microbes vivants (exsudats, EPS, biofilms) et les microbes morts (MAOM) sont deux canaux de contribution au stock C.
Nouveaux sites de sorption issus de l'altération
- L'apport de poussière de roche (basalte, phonolite) augmente significativement la MAOM (matière organique associée aux minéraux) : +22 % observés dans certains essais (Buss 2023).
- Mécanisme : les minéraux secondaires (oxydes Fe/Al, argiles néoformées) issus de l'altération offrent de nouveaux sites de sorption pour stabiliser le carbone labile, le protégeant ainsi de la minéralisation rapide.
- Le pontage cationique (Ca²⁺, Mg²⁺) lie les surfaces minérales aux groupements fonctionnels organiques → micro-agrégats stables intégrant le C.
- Articulation : amendements minéraux ; sol sableux (MAOM = cible centrale du chantier).
Rétroaction climatique drilosphère
- Les lombrics augmentent la sensibilité thermique (Q₁₀) de la minéralisation du carbone du sol — effet découvert en 2025, non pris en compte dans les modèles AMG/RothC classiques.
- Sous réchauffement climatique, l'activité accrue de la drilosphère pourrait ainsi accélérer les pertes de CO₂ — le signe net (source vs puits) restant débattu, la drilosphère ayant aussi des effets stabilisants (sélection de MAOM dans les turricules).
- Vulnérabilité opérationnelle suivie par le réseau MSV (Maraîchage Sol Vivant) : le bioréacteur drilosphérique, pilier de la fertilité biologique, devient un point de bascule climato-dépendant.
- Conséquence doctrine : MAOM-via-lombrics n'est pas un stockage inconditionnel. Les itinéraires qui misent sur la drilosphère doivent intégrer un suivi de température de sol et de Q₁₀ effectif.
- Articulation avec les lombriciens, la drilosphère et la pompe microbienne — à intégrer.
Cards en dialogue (34)
- Approfondi par
-
- Soil Continuum Model (SCM) : fin du paradigme de l'humification, necromasse microbienne et fractions fonctionnelles MAOM/POM
- Virome et gènes métaboliques auxiliaires (AMG) : le phage reprogramme l'hôte et co-pilote les cycles biogéochimiques
- Pompe microbienne à carbone : voies in vivo/ex vivo, effet Tombeau et leviers d'activation
- Voir aussi (31)
-
- Profil sol sableux : plafond MAOM bas, marge structurale maximale, métastabilité biologique
- Lombriciens : catégories écologiques, drilosphère, turricules, biopores et interactions racines
- Amendements minéraux structurants : levier minéral vs levier organique
- 450 Ma de coévolution plante-microbe : cadre temps-profond trois piliers
- Pompe oxalate-carbonate : séquestration C inorganique pérenne
- Évolution écologique du sol : sol nu → climax, stratégies microbiennes r/K et Y-A-S (cadre diagnostique)
- Carbonates pédogéniques – cadre intégré
- Stœchiométrie CNPS et modèle AMG
- Cycle du phosphore : fixation, solubilisation biologique, mycorhizes
- Biochar : architecte de sol (habitat, CEC, C stable)
- Bactéries ferro-réductrices : Geobacter, Shewanella et la respiration dissimilatoire du fer
- Cycle du potassium : minéraux primaires, KSB et biodisponibilité dans les sols vivants
- PNSB (Purple Non-Sulfur Bacteria) : Rhodopseudomonas et la biofertilisation photosynthétique multi-fonctionnelle
- Glomaline : glycoprotéine fongique et stockage C profond
- Enhanced Rock Weathering (ERW) : altération minérale accélérée
- MRV crédits carbone biominéraux : certification de la séquestration C inorganique pérenne
- Diversité fongique dual rôle producteur/régulateur : les champignons comme acteurs ambivalents des cycles biogéochimiques
- Biomarqueurs fonctionnels du sol vivant : diagnostic par activités et ratios plutôt que par stocks
- Le ratio C/N du paillage pilote le ratio Fungi/Bacteria du sol
- Saturation du MAOM et plafond de séquestration : la limite du stockage organo-minéral
- Carbon Use Efficiency (CUE) microbienne : l'arbitrage stockage / respiration
- Réserve utile
- Effet d’amorçage
- Carbone organique du sol
- Agrégation
- Biomasse microbienne
- Décomposition
- Shunt viral du sol : les phages comme moteur du cycle du carbone
- Respiration du sol : indicateur d'activité microbienne
- Formes d'humus (Mull, Moder, Mor) : gradation classique, relue par le paradigme de la nécromasse
- Seuils de fonctionnement du carbone : le sol non-répondant et la concentration
Cycle de l'eau : potentiel hydrique, flux, résilience biologique
L'eau y circule comme un continuum entre sol, plante et atmosphère ; sa disponibilité dépend de la texture, de la continuité des pores et des films d'eau où vivent les microbes. La vie du sol bâtit cette architecture : galeries de vers et canaux racinaires créent des écoulements rapides, et les gels bactériens tamponnent les alternances sec-humide. Quatre leviers : la remontée nocturne d'eau par les racines, la couverture du sol contre l'évaporation, le lien eau-chaleur (sans eau, le soleil chauffe au lieu de produire), et la matière organique agissant surtout par la structure. Restent des seuils : manque d'oxygène, sols imperméables, sel.
Science
Le cycle de l'eau dans le sol vivant n'est pas un simple réservoir : c'est un continuum sol-plante-atmosphère (SPAC) piloté par le gradient de potentiel hydrique (Ψ), modélisable en résistances hydrauliques (loi de Darcy). Trois stocks définissent la disponibilité : la courbe de rétention (texture × structure), la connectivité des pores, et les films d'eau qui sont l'habitat même du microbiome.
La biologie construit l'architecture hydraulique (postulat directeur) : la macroporosité biologique (galeries de vers, canaux racinaires) crée les flux préférentiels qui gouvernent infiltration et ressuyage ; les ingénieurs du sol (lombriciens, racines, hyphes) maintiennent la connectivité ; les hydrogels EPS des biofilms tamponnent les alternances humectation/dessiccation.
Quatre leviers de résilience hydrique documentés :
- Redistribution hydraulique (hydraulic lift) : remontée passive nocturne d'eau profonde par les racines — méta-analyses : rôle confirmé dans la résistance à la sécheresse.
- Couverture du sol : barrière anti-évaporation, régulation ruissellement/infiltration — le bilan hydrique se pilote par la couverture (vivante ou morte).
- Couplage eau-énergie : l'évapotranspiration partitionne le rayonnement net (chaleur latente vs sensible) — sans eau, l'énergie estivale devient stress thermique au lieu de biomasse (paradoxe énergie↔eau).
- Matière organique : effet rétention réévalué (Minasny & McBratney 2018 et travaux ultérieurs) — agit surtout via la structure, l'effet direct intrinsèque étant faible.
Seuils critiques : microsites anoxiques dès déséquilibre offre/demande en O₂ ; hydrophobie post-sécheresse et réhumectation lente ; salinisation comme « aridité induite » couplée au changement climatique.
Cards en dialogue (20)
- Approfondi par
- Voir aussi (18)
-
- Profil sol sableux : plafond MAOM bas, marge structurale maximale, métastabilité biologique
- Hydrique & redox → stress / microzones → stratégies
- Structure du sol (agrégats/EPS) → habitats → stabilité/résilience
- Battance / croûte / ruissellement (surface)
- Infiltration lente / engorgement (profil)
- Hydrophobie / infiltration hétérogène (spots secs)
- Chantier de reconstruction d'un sol sableux structurellement vide : doctrine intégrée
- Glomaline : glycoprotéine fongique et stockage C profond
- Effet Birch : pulse de minéralisation à la réhumectation des sols secs
- Eau facteur limitant : potentiel, continuité hydraulique, diffusion des gaz
- Couverts végétaux : design, biomasse et services rendus
- Co-inoculation Bradyrhizobium + Azospirillum : synergie physiologique au-delà de la FBN
- Sodicité et dispersion argileuse : SAR, ESP et effondrement de la conductivité hydraulique
- Irrigation pilotée : l'appoint mesuré, filet de sécurité du sol vivant
- Récolte de l'eau de ruissellement : capter le runoff pour régénérer les sols dégradés
- Remontée hydraulique : l'eau remontée par les racines, assurance-sécheresse du sol vivant
- L'héritage azoté : lixiviation des nitrates et pollution différée des nappes
- Sécheresse structurelle : de l'aléa au régime
Continuum sol-plante-humain : le fil rouge du corpus
Ce chemin sol → plante → assiette → intestin est le cœur du propos.
Un cadre récent l'étoffe : plantes et microbes coévoluent depuis environ 450 millions d'années ; ils communiquent par de minuscules vésicules porteuses de petits ARN (acide ribonucléique) non codants ; la plante orchestre son microbiome, des capacités d'assemblage érodées par la domestication mais conservées par les variétés anciennes. Des microbes dits endophytes sont présents dans tous les tissus, donnant à ce continuum sa matérialité.
Illustration : Fig. card 56-A · Continuum sol-plante-humain : le fil rouge du corpus…
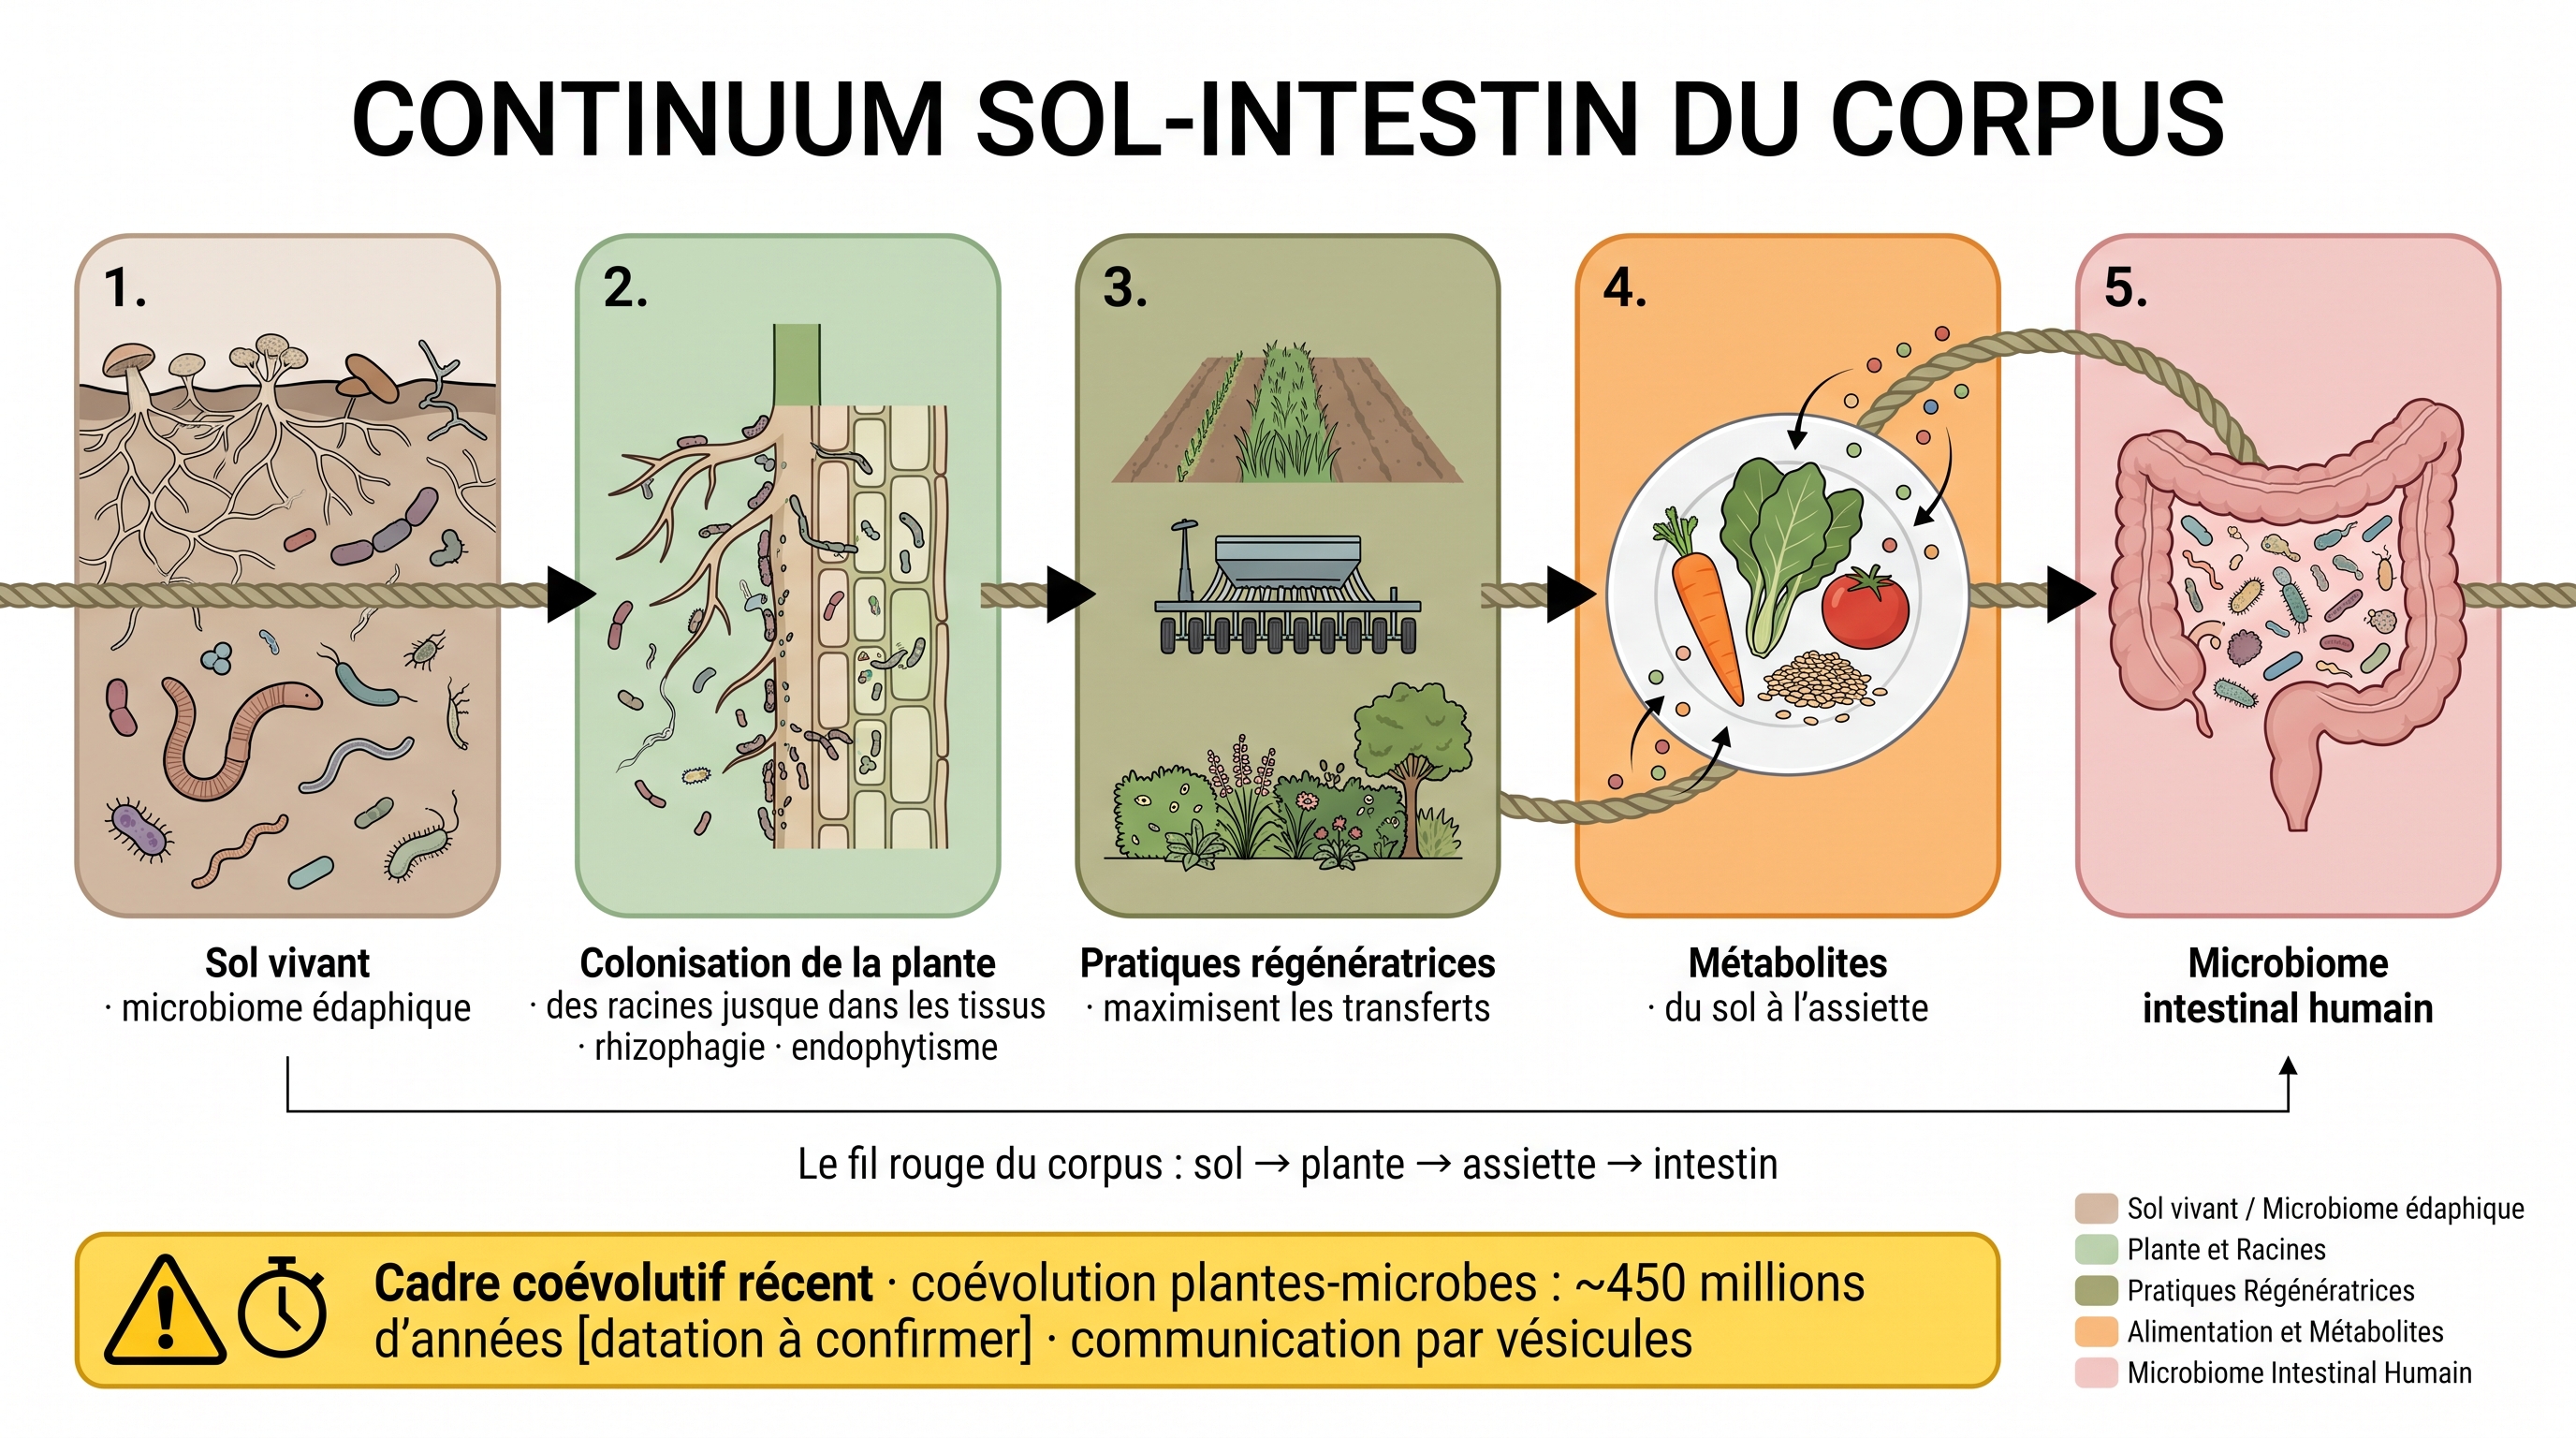
Science
Card transversale reliant cinq strates : sol vivant → le microbiome colonise la plante (rhizophagie, endophytisme) → les pratiques régénératrices maximisent les transferts → les métabolites transitent du sol à l'assiette → microbiome intestinal humain. L'axe sol-plante-intestin est le mécanisme central — le fil conducteur.
Le cadre coévolutif récent l'enrichit : une profondeur évolutive d'environ 450 Ma de coévolution plante-microbe (Shelake et al., 2026) ; une communication cross-règne par vésicules extracellulaires porteuses de small non-coding RNA (EV/sncRNA) ; l'orchestration du microbiome par la plante (gènes d'assemblage érodés par la domestication, conservés par les landraces) ; et des endophytes ubiquitaires présents dans tous les tissus, qui donnent au continuum sa densité matérielle.
Cards en dialogue (33)
- Donne naissance à
- Approfondi par
-
- Résistome et transfert horizontal : la face sombre du continuum
- M genes : la plante orchestre son microbiome
- Endophytes ubiquitaires et potentiel pathogène latent
- Phages et transduction des ARG : réservoir silencieux du résistome
- Diagnostic plante : pH et EC de sève foliaire/pétiolaire comme signatures nutritionnelles précoces
- Mycobiome intestinal et axe gut-brain fongique : le 3ᵉ domaine oublié de la santé humaine
- Filtre mycorhizien ETM : exclusion métaux lourds et sécurité alimentaire
- Densité nutritionnelle alimentaire (sol → assiette)
- Continuum sol-aliment-santé : ratio Na/K alimentaire et mortalité cardiovasculaire
- Voir aussi (23)
-
- Évolution des plantes et construction du sol : racines, mycorhizes, rhizosphère, boucles plante–microbiome
- CEP : double identité entomopathogène/endophyte et CBC
- Cry-for-help : recrutement stress-induit du microbiome
- Archées : troisième domaine écologiquement distinct dans le sol
- Éliciteurs biologiques exogènes : chitosane et oligogalacturonides (priming PTI/SAR)
- Bactéries ferro-réductrices : Geobacter, Shewanella et la respiration dissimilatoire du fer
- Strigolactones : signal à triple fonction (architecture, mycorhize, parasitisme)
- Carence silencieuse en cobalt et transfert trophique sol-plante-microbiome humain : pendant Co du continuum sol-aliment-santé
- Mémoire du sol et auto-régulation suppressive : la dimension transgénérationnelle de la résilience pédologique
- Successions microbiennes de la fermentation lactique : continuum sol -> récipient -> tube digestif
- Sélénium : marge thérapeutique étroite et mimétisme sulfate : pendant Se du continuum sol-aliment-santé
- Iode : axe thyroïdien et maillon sol-plante ténu : pendant I du continuum sol-aliment-santé
- Bore : carence la plus répandue, paroi/fécondation et marge étroite : pendant B du continuum sol-aliment-santé
- Fer : chlorose, sidérophores et anémie ferriprive : pendant Fe du continuum sol-aliment-santé
- Magnésium : chlorophylle, antagonisme cationique et déclin cardiovasculaire : pendant Mg du continuum sol-aliment-santé
- Manganèse : disponibilité redox (carence ⇄ toxicité), oxydation de l'eau au PSII et défense : pendant Mn du continuum sol-plante
- Cuivre : rétention organique, transport d'électrons (plastocyanine) et accumulation cuprique : pendant Cu du continuum sol-plante
- Le tube digestif comme bioréacteur anaérobie : principe convergent du fermenteur intestinal (ver, ruminant, humain)
- Soufre : co-limitation N:S, acides aminés soufrés et antagonisme S-Se : pendant S du continuum sol-aliment-santé
- Exposome chimique alimentaire et Reactobiome : le microbiote comme filtre des xénobiotiques
- Résistance systémique acquise
- Flavonoïdes
- Le cycle endophytique : une continuité, pas un compartiment
Résistome et transfert horizontal : la face sombre du continuum
Ce transfert s'accélère dans les milieux perturbés : les microplastiques servent de radeaux où les bactéries s'agglutinent et s'échangent leurs gènes, la chaleur extrême et certains polluants poussent dans le même sens. Les biostimulants fermentés, mal maîtrisés, peuvent servir de véhicules.
Le premier rempart n'est pas un produit, c'est la diversité : une communauté microbienne riche fait barrière à ces échanges. Et tout dépend moins de la quantité de gènes présents que de leur mobilité — certains sont anodins, d'autres directement utilisables par les bactéries qui nous rendent malades.
Science
Card d'alerte : les ARG circulent par transfert horizontal entre bactéries du sol, endophytes et microbiome intestinal. Les biostimulants fermentés peuvent être vecteurs. La diversité microbienne est la première barrière. Une chaîne causale en est la traduction négative.
Méthodologie & biais
- Métagénomique shotgun : difficulté majeure à relier précisément un ARG à son espèce bactérienne d'origine (lien ARG-hôte) → distinction ARG dans bactérie bénéfique vs pathogène peu fiable (Maciel-Guerra et al., 2022).
- Ht-qpcr : sensibilité élevée mais limitée aux cibles des amorces (Zhu et al., 2013).
- Bruit de lecture : dans les sols complexes, la forte diversité microbienne peut diluer les lectures de séquençage. Fait contre-intuitif documenté : la prévalence des ARG augmente avec l'âge du sol même sans pression anthropique directe (dynamique compétition/facilitation en chronoséquence arctique ; Roy et al., 2025).
Facteurs émergents
- Microplastiques : pas de simples polluants passifs — agissent comme "récifs" pour la formation de biofilms → densité bactérienne locale accrue → HGT facilité (Goryluk-Salmonowicz 2022).
- Changement climatique : le réchauffement expérimental (+4 °C) enrichit des ARG spécifiques en sols naturels (Li et al., 2022) ; les événements extrêmes (sécheresses suivies d'inondations) catalysent le THG et la persistance des ARG.
- Polluants non-antibiotiques co-sélecteurs : pesticides, détergents, nanomatériaux, en plus des métaux lourds déjà documentés (Han, 2022 ; Gillieatt & Coleman, 2024).
Hiérarchisation des arg — risque ≠ abondance
Abondance totale des ARG ≠ indicateur de risque. Cadre en 4 rangs selon mobilité génétique × affiliation d'hôte (Zhang et al., 2021 ; prolongé par Zhao et al., 2025 ; Li et al., 2025) :
- Rang I (risque élevé) : ARG mobiles dans pathogènes cliniques (ex. mcr-1 colistine, blaCTX-M céphalosporines). Directement utilisables pour compromettre les traitements médicaux (Liu et al., 2016 ; Humeniuk et al., 2002).
- Rang II : ARG mobiles dans bactéries environnementales non-pathogènes, mais transférables à des pathogènes humains par HGT (Haenni 2021).
- Rang III-IV (risque faible / résistome naturel) : ARG intrinsèques non-mobiles, portés par bactéries non pathogènes (ex. résistance aminoglycosides chez Actinomycetes) (Benveniste & Davies, 1973 ; Baker-Austin et al., 2006).
- Les seuils PNEC (Predicted No-Effect Concentrations) sont souvent nettement plus bas en milieu terrestre que les seuils de toxicité classique.
- Gestion efficace = cibler prioritairement les ARG détectés en environnements anthropisés (Zhao et al., 2025).
Cards en dialogue (16)
- Approfondit
- Approfondi par
- Voir aussi (12)
-
- Fermentations appliquées : bokashi, EM, KNF, JADAM, LiFoFer
- Continuum ami-ennemi microbien : plasticité rapide des statuts
- Paradoxe du ruissellement en ACS : accumulation surface vs matrice diluée
- Quorum sensing dans la rhizosphère : communication bactérienne, perception végétale, biofilms
- Mycobiome intestinal et axe gut-brain fongique : le 3ᵉ domaine oublié de la santé humaine
- Bio-indication précoce du microbiome (métabarcoding multi-marqueurs) : détection des dégradations avant manifestation visuelle
- Quorum Quenching One Health : désarmement enzymatique des pathogènes vs antibiorésistance
- Immunité nutritionnelle : forme d'azote (NH₄⁺/NO₃⁻) → protéosynthèse → signalisation JA-SA
- Exposome chimique alimentaire et Reactobiome : le microbiote comme filtre des xénobiotiques
- Antibiorésistance
- Biofilms microbiens : architecture EPS et théâtre des cycles
- Le résistome du sol : la RAM est indigène, l'agriculture la sélectionne
Nématodes : guildes trophiques, indice de Bongers et diagnostic
L'indice de Bongers fait la moyenne de ces modes de vie : plus le sol héberge de formes lentes et exigeantes, plus il est mature et stable. Ce n'est pas un simple comptage, mais une moyenne pondérée du tempérament de chacun.
On les extrait à l'eau tiède, dans un simple entonnoir, et on lit le résultat comme un bulletin de santé. Ils régulent aussi le microbiome : prédateurs et brouteurs tiennent les populations en équilibre.
Science
Card diagnostique : cinq guildes trophiques de nématodes (bactérivores, fongivores, omnivores, prédateurs, phytoparasites). L'indice de maturité de Bongers — une moyenne pondérée des valeurs c-p (colonisateur-persistant) sur le peuplement, et non un simple ratio — est un indicateur indirect de la maturité écologique du sol. Les nématodes exercent une régulation top-down du microbiome : le broutage microbivore stimule la minéralisation de l'azote et du phosphore et l'absorption végétale, effets documentés dans la rhizosphère (Plassard, 2008). Extraction par entonnoir de Baermann.
Les indices nématologiques (NBIs) sont des bioindicateurs polyvalents du réseau trophique du sol, mais il leur manque une approche standardisée les reliant explicitement au concept de santé du sol, et un indice quantitatif unique fait défaut (Ghaderi, 2025). Contre les phytoparasites, la biodisinfestation par incorporation d'amendements organiques (sous-produits agricoles) suivie d'un bâchage développe des sols suppressifs vis-à-vis du nématode à galles Meloidogyne incognita (Gandariasbeitia, 2021).
Cards en dialogue (10)
- Approfondi par
- Voir aussi (8)
-
- Diagnostic terrain intégré : du profil bêché au tableau de bord biologique
- Mésofaune : collemboles et acariens, régulateurs des micro-habitats
- Boucle microbienne du sol : protozoaires, paradoxe fonctionnel et minéralisation pilotée
- Top-down vs bottom-up : doctrine de régulation des communautés microbiennes du sol
- Lombriciens : catégories écologiques, drilosphère, turricules, biopores et interactions racines
- Microorganismes prédateurs indigènes (IPMO) : la capture ciblée par appât insecte
- Cultures-pièges bio-mimétiques : exploitation du trigger des bioagresseurs comme stratégie de lutte intégrée
- Biomarqueurs fonctionnels du sol vivant : diagnostic par activités et ratios plutôt que par stocks
Mésofaune : collemboles et acariens, régulateurs des micro-habitats
Les collemboles découpent la litière en petits morceaux et broutent les champignons, empêchant un seul d'entre eux d'étouffer les autres. Les acariens participent à la transformation de la matière organique — une notion aujourd'hui réévaluée. Ensemble, ils sculptent une multitude de micro-habitats où la vie se diversifie.
Plus cette petite faune est variée, plus les mottes de terre tiennent fermement : leur diversité va de pair avec la stabilité du sol.
Science
Rôle de la mésofaune dans la régulation des communautés fongiques et bactériennes. Les collemboles fragmentent la litière et contrôlent les populations fongiques ; les acariens oribates participent à la transformation de la matière organique (notion à nuancer au regard du paradigme MAOM/nécromasse, qui réévalue l'« humification »). La diversité de la mésofaune corrèle avec la stabilité des agrégats.
La faune du sol agit sur la formation et la persistance de la matière organique labile (particulaire, POM) et stabilisée (associée aux minéraux, MAOM) par trois mécanismes majeurs — transformation, translocation et broutage des micro-organismes — qui modulent quantité et décomposabilité de la matière organique, minéralogie du sol, ainsi que l'abondance, la localisation et la composition microbiennes (Angst, 2024). L'évidence expérimentale se précise : le suivi isotopique d'une litière marquée montre que l'accès de la mésofaune promeut la formation de MAOM, tant sous prairie que sous gestion agricole, sous climat actuel comme sous climat futur simulé (Angst, 2026).
Cards en dialogue (6)
- Approfondit
- Voir aussi (4)
-
- Structure du sol (agrégats/EPS) → habitats → stabilité/résilience
- Lombriciens : catégories écologiques, drilosphère, turricules, biopores et interactions racines
- Nématodes : guildes trophiques, indice de Bongers et diagnostic
- Biomarqueurs fonctionnels du sol vivant : diagnostic par activités et ratios plutôt que par stocks
Faim d'azote comme outil agronomique : déprise adventice et sélection de cortège
En enfouissant un carbone pauvre en azote, vous affamez temporairement les mauvaises herbes gourmandes, qui peinent à lever, tandis que les légumineuses, autonomes en azote, poussent sans broncher. Vous installez ainsi le cortège que vous voulez.
Conditions : viser des adventices vraiment gourmandes, couvrir la période de levée, s'assurer que les légumineuses sont bien nodulées, et laisser le phosphore et le soufre disponibles. L'effet est transitoire — un à deux ans —, le cortège installé doit ensuite s'entretenir seul.
Illustration : Fig. card 60-A · Cycle C/N — faim d'azote…
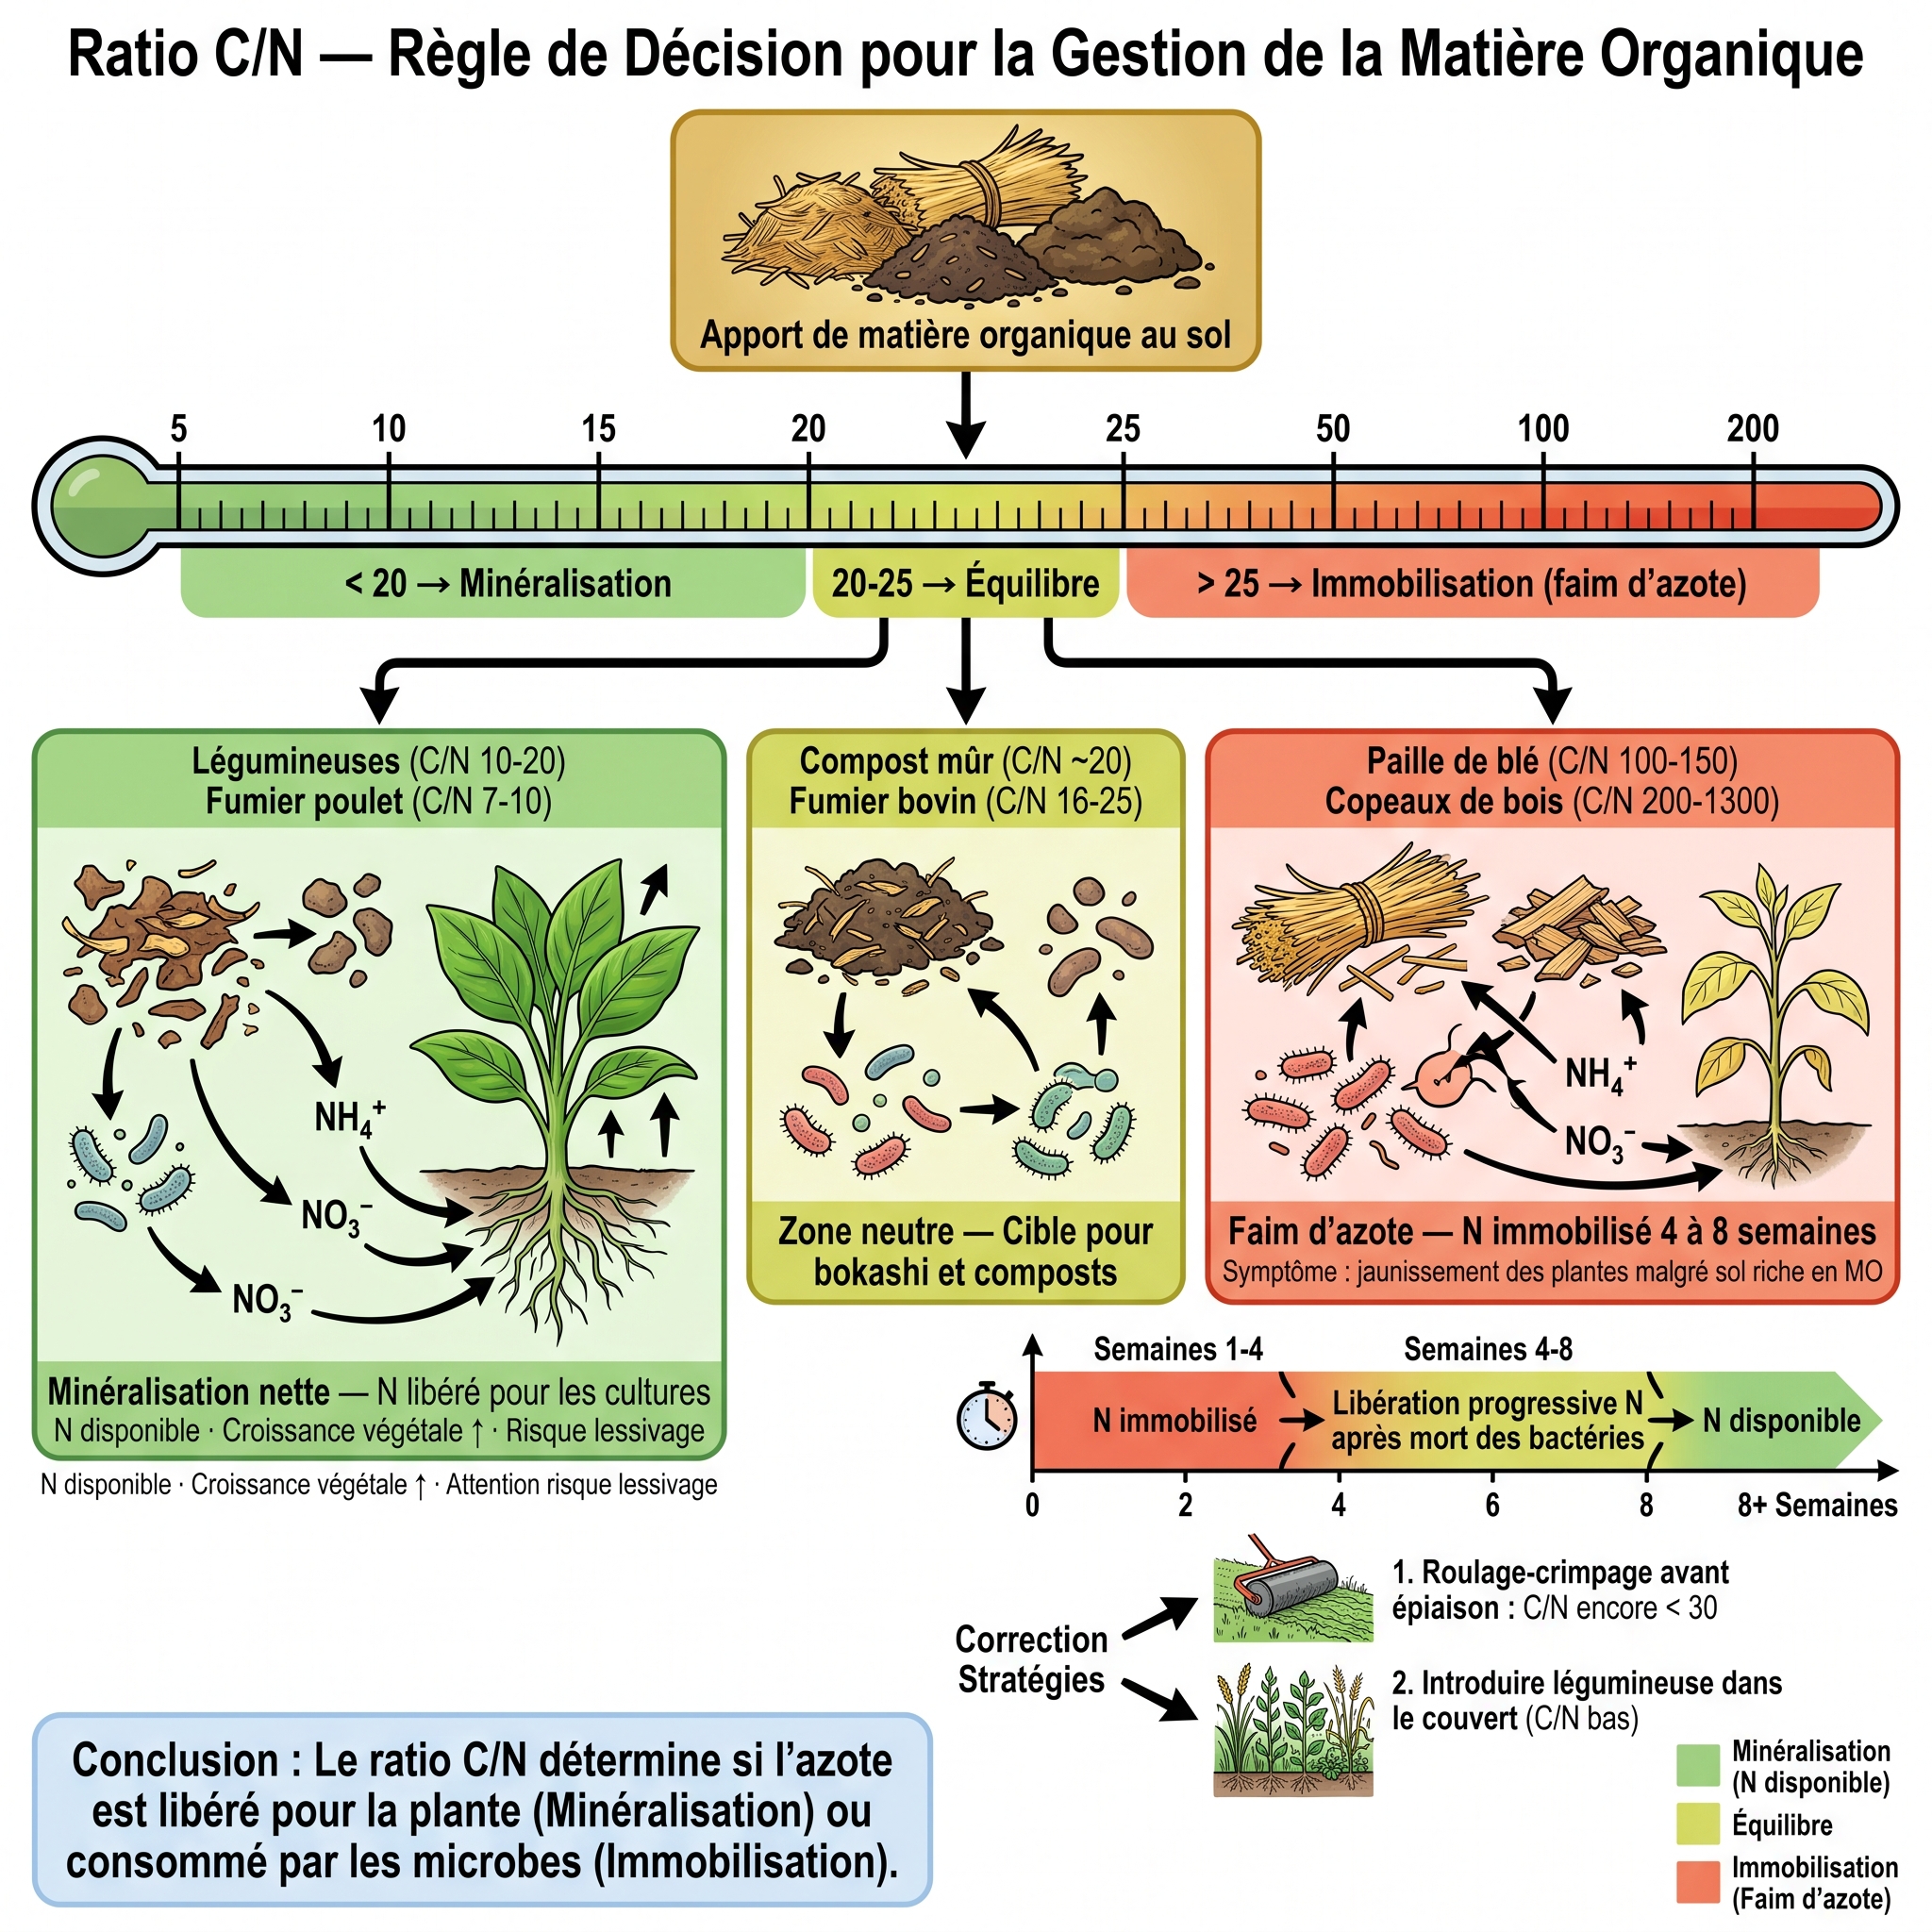
Science
Inversion de la logique de la « faim d'azote subie » : la faim d'azote post-apport C n'est pas seulement un symptôme à éviter mais un levier actif de sélection végétale.
Mécanisme — chaîne à 3 étages :
- Apport C haut C/N incorporé (BRF, broyat, paille longue)
- Immobilisation microbienne de l'azote minéral
- Sélection différentielle au niveau plante :
→ Adventices nitrophiles r-stratégistes (chénopode, amarante, morelle, mouron, digitaire, sétaire, renouée) : germination retardée, levée faible, croissance stoppée
→ Plantes N-autonomes (légumineuses nodulées) : indifférentes, croissance normale
Analogie r/K du microbe à la plante (outil heuristique, non une équivalence démontrée) :
La succession écologique montre que l'azote minéral favorise les copiotrophes microbiens. Par symétrie, l'N minéral favorise les adventices nitrophiles. Inversement, une faim d'azote sélectionne les oligotrophes ET les plantes N-autonomes.
Conditions de validité :
- Adventice visée nitrophile r-stratégiste (inefficace sur vivaces rhizomateuses)
- Fenêtre d'immobilisation doit couvrir la période de levée critique
- Couvert légumineux effectivement nodulé (inoculation rhizobium si sol vierge)
- P et S doivent rester disponibles (Kirkby CNPS sur ces deux éléments)
- Effet transitoire 12-24 mois : cortège installé doit être auto-entretenu avant rebond
parenté doctrinale : cohérent avec agriculture syntropic (Götsch), la couverture permanente et le design des couverts.
Cards en dialogue (9)
- Dérive de
- Approfondi par
- Voir aussi (6)
-
- Couverts végétaux : design, biomasse et services rendus
- Mode d’application : surface vs incorporation (profondeur) change le diagnostic
- Stratégies microbiennes : r/K et Y-A-S (rendement, acquisition, stress) le long de la succession
- Azote (formes, pertes) → stœchiométrie → stratégies microbiennes
- Le ratio C/N du paillage pilote le ratio Fungi/Bacteria du sol
- Allélopathie : interférence biochimique végétale et leviers agronomiques (couverts, déprise, suppression)
Chantier de reconstruction d'un sol sableux structurellement vide : doctrine intégrée
Il faut d'abord relever le plafond, puis le remplir.
Première étape, apporter de la terre fine — argile ou calcaire — pour créer de la structure ; c'est le marnage. Sans lui, la matière organique seule tient mal à vie : le sol reste un puits sans fond. Ensuite on incorpore massivement la matière organique, on équilibre phosphore et soufre, on installe des légumineuses.
Quand la matière organique dépasse un seuil favorable, on bascule vers l'agriculture de conservation : ne plus travailler le sol, préserver ce qui s'est construit. Griller une étape — vouloir ne plus labourer un sol encore vide — est le piège classique. Alternative : la poudre de basalte.
Science
Trajectoire articulant les leviers disponibles pour la régénération d'un sol sableux en phase 0 (MO/argile < 12%, Zone 4 Husson-Boivin).
Étape 0 — diagnostic de déclenchement
- Ratio MO/argile < 12% (Zone 4) → régime chantier, pas régime ACS
- VESS ≤ 2, absence macroporosité biologique, faible densité lombricienne
Étape 1 — Relever le plafond (marnage)
- Apport minéral argileux/calcaire (50-300 t/ha historiquement)
- Effet : bascule S → SL du triangle → plafond MAOM ×2 à ×3
- Voir : les amendements minéraux structurants
Étape 2 — Remplir le plafond (incorporation massive)
- 50-400 t MS/ha, mélange intime sur 20-30 cm (6 conditions de succès)
- BRF k1≈0.5 vs compost k1≈0.1 : choix selon objectif vitesse/stabilité
Étape 3 — équilibrer la stœchiométrie (kirkby)
- P + S minéraux au ratio 100:2:1,5
- N non apporté en minéral → substitué par légumineuses nodulées (étape 4)
Étape 4 — cortège n-autonome + faim d'azote comme outil
- Mix légumineuse × non-légumineuse, inoculation rhizobium
- Fenêtre 12-24 mois d'immobilisation N → déprise adventices nitrophiles
- Voir : design des couverts ; la faim d'azote comme outil
Étape 5 — entretien dimensionné au k₂ textural
- Ration minimale = stock × k₂ / k₁ (terme
ration du sol) - Sans marnage : ~11 t MS/ha/an BRF pour 3% MO → non soutenable
- Avec marnage : 4-5 t/ha/an → compatible couverts + résidus
Étape 6 — bascule vers régime ACS
- Déclencheur : MO/argile > 17% (Zone 2 Husson-Boivin)
- La règle ACS "ne pas travailler le sol" s'active : préserver biopores, mycorhizes, agrégats
- Voir aussi : ACS et chronoséquence de transition
cas documentés : Cagnolle (Dordogne) 1,4%→9% MO/10 ans ; Talus Marseille +7-9 pts/12-18 mois (retours de terrain).
Pièges
- Omission marnage → chantier réussi mais non soutenable (perfusion)
- Omission inoculation → faim d'azote subie 18-24 mois
- Application prématurée règle ACS à un sol sans structure
Option basalte en étape 1 (Richardson 2024, Kelland 2020) :
Le basalte broyé (6-10 t/ha) constitue une alternative au marnage traditionnel pour l'étape 1 (relever le plafond) :
- Plus accessible (pas besoin de gisement local de marne)
- Double bénéfice : structure + séquestration CO2 (émission négative)
- Synergie avec la biologie active (CMA accélèrent la dissolution (Wu et al., 2023))
- Limite : ne modifie pas la texture aussi radicalement que le marnage (pas d'ajout d'argile)
- Combinaison possible : basalte + bentonite pour les deux effets
Échelles à ne pas confondre.
MO/argile ≈ 1,72 × C/argile (facteur historique de Van Bemmelen, convention analytique du XIXᵉ siècle — revue critique : Pribyl, 2010). L'échelle carbone internationale et ses seuils (Prout 2020 : SOC/clay 1/8, 1/10, 1/13) vivent dans le terme #395 ; la grille Husson-Boivin ci-dessus est en % MO/argile.
Cards en dialogue (12)
- Ouvre sur
- Approfondit
- Voir aussi (7)
-
- ACS : les 3 piliers (non-labour, couverture permanente, rotation diversifiée)
- Couverts végétaux : design, biomasse et services rendus
- Transition : chronoséquence 4 phases et indicateurs de suivi
- Quand amender la fraction minérale d'un sol ? : arbre de décision
- Histoire des sols : désastres et réussites (Croissant fertile, Nil, Terra Preta, Milpa)
- Cycle de l'eau : potentiel hydrique, flux, résilience biologique
- Anthrosols : Terra Preta et sols anthropogéniques
Amendements minéraux structurants : levier minéral vs levier organique
Le levier organique nourrit la biologie, année après année, et s'éteint vite si on l'arrête. Le levier minéral — chaux, marne, basalte, argile — modifie la texture et l'acidité pour des décennies. Sur un sol sableux, le minéral est indispensable ; sur un limon riche, il est souvent superflu.
L'un ne remplace pas l'autre : le basalte, par exemple, reste quasi inerte sans la biologie qui le dissout. Le minéral seul est une impasse, l'organique seul s'épuise. Les deux ensemble, ils se multiplient.
Science
Cadre : la régénération agit sur deux fractions distinctes du sol via deux familles de leviers complémentaires, ni substituables ni équivalentes.
levier organique — côté "flux" de l'équation Hénin-Dupuis :
- Objet : alimenter la pompe à carbone, nourrir le microbiome, construire MAOM/POC
- Cartes : mode application, ACS, couverts, terme ration du sol, terme stœchiométrie de Kirkby
- Temporalité : annuelle → décennale. Réversible en quelques années si arrêt.
levier minéral — côté "plafond" et "structure chimique" :
- Objet : modifier la fraction minérale elle-même (texture, pH, bases échangeables, plafond MAOM)
- Pratiques : marnage, chaulage (CaCO₃/CaO/dolomie), gypse (CaSO₄), poudres de roche (basalte, phonolite), phosphate naturel, soufre élémentaire, bentonite, zéolite
- Temporalité : semi-permanente (30-100 ans marnage, 5-15 ans chaulage). Rarement réversible.
Complémentarité
- Sableux : levier minéral indispensable pour sortir de la métastabilité (Card "Chantier sableux"). Sans lui, levier organique seul tient mais ration élevée à vie.
- Limon/argile : levier organique domine, minéral rarement nécessaire (texture et CEC suffisantes)
- Calcaire : levier minéral porte sur Mg/S/Zn/B/Fe (corrections de blocages en sols calcaires), pas sur Ca déjà en excès
Antagonisme calcium/magnésium — mécanisme physique
- Bien que divalent comme Ca²⁺, le Mg²⁺ a un rayon ionique plus petit (0,066 nm vs 0,099 nm pour Ca²⁺) et donc une densité de charge supérieure.
- Conséquence : le Mg²⁺ s'entoure d'une sphère d'hydratation plus épaisse → augmente la distance entre feuillets d'argile → réduit l'attraction interparticulaire → favorise la dispersion → dégrade la conductivité hydraulique et favorise l'érosion (Keren 1991).
- Ratio Ca/Mg trop faible = signal d'alerte de dispersion (Shirolkar et al., 2020 ; Chaganti et al., 2021) — la portée universelle de ce seuil étant contestée, le Na (SAR) restant le principal pilote de dispersion dans la plupart des sols. Diagnostic obligatoire avant tout amendement Ca/Mg.
Charge dispersive nette — diagnostic fin
- Concept au-delà du SAR (Sodium Adsorption Ratio) classique.
- Intègre non seulement le Na, mais aussi le Mg ET le K dans la prédiction de la dispersion argileuse.
- Outil de diagnostic plus fiable pour anticiper les risques sur sols à forte CEC.
basalte & altération forcée (enhanced weathering) — levier structurant ET climatique :
- Amendement structurant : effets rapportés sur le C organique très variables — jusqu'à +69-135 % dans des essais isolés ou de court terme (Richardson 2024), non généralisables en l'état —, agrégats +15-25 %, MAOM +22 % (Buss 2023) ; libère du silicium biodisponible → résistance aux stress biotiques (ravageurs) et abiotiques (sécheresse).
- Technologie d’émission négative reconnue par le GIEC (enhanced weathering ; Pratt 2024) : séquestration 2-4 t CO₂/ha en carbonates inorganiques stables après une seule application (Kelland 2020) ; les bicarbonates issus de l’altération rejoignent les océans et tamponnent leur acidification — cobénéfice climatique (Lehmann 2023).
- Synergie biologie × minéral : l’altération est démultipliée par les CMA, qui dissolvent les silicates via leurs acides organiques (Wu 2023 ; Palma 2025) ; la glomaline couple agrégation et stockage du C. Sans biologie, le basalte est quasi inerte — le « minéral seul » est une impasse : les deux leviers sont synergiques, pas substituables.
- Contraste : chaulage brutal → priming (risque de déstockage) vs basalte → stockage plus durable (un chaulage brutal peut induire un priming déstockeur, le basalte vise un stockage pérenne).
- Bilan carbone net positif si la chaîne logistique (transport + broyage) reste courte. Cf Cycle P (altération bio des silicates), Cycle C (MAOM).
Note historique : ce cadre puise dans une lignée de pionniers — Albert Howard (compost, Lawes of the compost), William Albrecht (équilibre cationique), Chaboussou (trophobiose) — qui ont chacun posé une brique de l'approche biologique. Hénin-Dupuis en est l'ancrage français, expérimentalisé sur parcelles dès les années 1960.
Cards en dialogue (19)
- À lire d’abord
- Approfondi par
-
- Amendements organiques : compostage aérobie thermophile vs fermentations vs autres voies
- Biochar : architecte de sol (habitat, CEC, C stable)
- Extraits d'algues marines : phycocolloïdes, bétaïnes et mimétiques phytohormonaux
- Cycle du potassium : minéraux primaires, KSB et biodisponibilité dans les sols vivants
- Chélation organique et biostimulation foliaire : acides aminés, hydrolysats et mobilité des oligoéléments
- Voir aussi (11)
-
- Cycle du phosphore : fixation, solubilisation biologique, mycorhizes
- Enhanced Rock Weathering (ERW) : altération minérale accélérée
- Profil sol sableux : plafond MAOM bas, marge structurale maximale, métastabilité biologique
- Profil sol calcaire/argilo-calcaire : calcium structurant, risques de blocages P/oligo
- Stabilité d’agrégats faible / désagrégation rapide
- Cycle du carbone : de la photosynthèse à la MAOM
- Diagnostic plante : pH et EC de sève foliaire/pétiolaire comme signatures nutritionnelles précoces
- Soil Continuum Model (SCM) : fin du paradigme de l'humification, necromasse microbienne et fractions fonctionnelles MAOM/POM
- KSB et altération biologique des silicates : acidolyse, chélation et synergie AMF-bactéries
- BCSR vs SLAN : doctrine équilibre cationique et limites du système Albrecht
- Réserve utile
Quand amender la fraction minérale d'un sol ? : arbre de décision
Un sable pur appelle d'abord le levier minéral ; un limon se contente de l'organique ; un sol calcaire ne se chaule surtout pas, on corrige d'autres éléments. L'acidité se règle ensuite : chauler en dessous d'un certain seuil, s'abstenir au-dessus.
Puis on vérifie que la ration de matière organique reste soutenable chaque année, et on choisit la profondeur du chantier selon l'état du sol. Trois feux rouges : l'engorgement en eau (drainer d'abord), le sur-chaulage, et le marnage inutile sur sol déjà argileux.
Science
À consulter quand :
- Tu prépares un chantier de reconstruction (Card "Chantier sableux")
- Ton diagnostic MO/argile est en Zone 3-4 (Husson-Boivin)
- Tu te demandes s'il faut travailler sur la MO, sur le minéral, ou les deux
Question 1 — texture (triangle GEPPA) :
→ Sableux pur (S, SS) : levier minéral prioritaire (marnage) + levier organique
→ Sablo-limoneux (SL, LS) : levier organique prioritaire, marnage si plafond bloquant
→ Limoneux (L) : levier organique seul suffit, chaulage si pH < 6
→ Argileux (A, AL, LAS) : levier organique, chaulage si pH < 5,5
→ Calcaire (> 15% CaCO₃) : ne pas chauler. Corrections Mg/S/Bo/Zn
Question 2 — PH
→ < 5,5 : chaulage Ca ou dolomie (si carence Mg documentée)
→ 5,5 – 6,5 : option ouverte selon textures et objectifs
→ 6,5 – 7,5 : pas d'amendement pH, gypse éventuel pour Ca/S
→ > 7,5 : acidification locale (S⁰) si blocage P/micro documenté
Question 3 — ration soutenable ? (test Hénin-Dupuis) :
→ Calcul : stock_cible × k₂ / k₁ = ration annuelle requise
→ Si ration > 10 t MS/ha/an → envisager marnage pour baisser k₂ effectif
→ Si ration < 5 t MS/ha/an → régime ACS seul tenable
Question 4 — profondeur du chantier
→ Mulch de surface : ok si sol déjà structuré (phase 2+ chronoséquence)
→ Incorporation 20-30 cm : ok si sol structurellement mort (phase 0), aération correcte, conditions de chantier réunies
Red flags
- Hydromorphie : stop, drainage d'abord
- Sur-chaulage : ne pas dépasser pH 7,0 sur sol non calcaire
- Marnage sur sol argileux : inutile et risque de compaction
Outils de diagnostic avancés
- Charge Dispersive Nette (CDN) : intègre Na+Mg+K, plus précis que Ca/Mg seul pour prédire la dispersion des argiles (Rengasamy et al., 2016)
- CEC effective (au pH réel du sol) vs CEC potentielle (à pH 7) : la CEC effective est l'indicateur fiable en agriculture régénératrice
- Vigilance analytique post-amendement : les roches broyées non altérées peuvent fausser les analyses (dissolution des particules par les extractants de laboratoire)
Basalte dans l'arbre
→ Sableux (S, SS) : basalte 6-10 t/ha en complément ou alternative au marnage — meilleure accessibilité, double bénéfice structure + séquestration C
Échelles à ne pas confondre.
MO/argile ≈ 1,72 × C/argile (facteur historique de Van Bemmelen, convention analytique du XIXᵉ siècle — revue critique : Pribyl, 2010). L'échelle carbone internationale et ses seuils (Prout 2020 : SOC/clay 1/8, 1/10, 1/13) vivent dans le terme #395 ; la grille Husson-Boivin ci-dessus est en % MO/argile.
Cards en dialogue (9)
- Approfondit
- Voir aussi (6)
-
- Profil sol calcaire/argilo-calcaire : calcium structurant, risques de blocages P/oligo
- Profil sol hydromorphe/organique : redox bas, émissions, gestion de l'eau centrale
- MO–argile → transition stœchiométrique → stratégies microbiennes
- Infiltration lente / engorgement (profil)
- Chantier de reconstruction d'un sol sableux structurellement vide : doctrine intégrée
- BCSR vs SLAN : doctrine équilibre cationique et limites du système Albrecht
Continuum ami-ennemi microbien : plasticité rapide des statuts
Le même organisme peut être un allié, un indifférent ou un agresseur, selon quatre réglages — les gènes de la plante et du microbe, leur histoire, l'environnement, et la nourriture disponible. On a vu des bactéries protectrices changer de camp en quelques générations, et un simple interrupteur chimique faire basculer un champignon d'un bord à l'autre. On décrit des points de bascule : le moment où le coût de l'alliance dépasse son bénéfice.
Pour le praticien, cela change la lecture : un sol n'entretient pas de « bons » microbes, il tient des équilibres. L'allié d'hier peut devenir l'exploiteur de demain si les conditions basculent.
Science
Le lifestyle microbien n'est pas une identité fixe : un même microbe peut être mutualiste, commensal ou pathogène selon quatre axes — génétique de l'hôte et du microbe, histoire évolutive, contexte écologique, nutrition/métabolisme (Shelake, 2026).
Exemples : P. protegens bascule d'antagoniste à mutualiste en six cycles sur Arabidopsis (Li, 2021) ; chez Colletotrichum tofieldiae, un cluster de biosynthèse de sesquiterpène fait l'interrupteur : la souche Ct3, pathogène, active les voies de l'acide abscissique de l'hôte via des métabolites fongiques secondaires (dont la botrydial), réprime les gènes d'absorption des nutriments et modifie la nutrition minérale de la plante (Hiruma, 2023). Les points de bascule — seuils où le coût dépasse le bénéfice le long du continuum ami-ennemi (Shelake, 2026) — s'inscrivent dans des transitions coévolutives du mutualisme à l'antagonisme (Jäger, 2025). Ce cadre généralise la double identité des champignons entomopathogènes, s'inscrit dans une coévolution plante-microbe d'environ 450 millions d'années (organellogenèse, évolution racinaire, garde immunitaire) et approfondit les stratégies r/K et Y-A-S (Shelake, 2026).
Cards en dialogue (15)
- Approfondit
- Voir aussi (12)
-
- ‘Faim d’azote’ après apport carboné (immobilisation)
- Seuils nutritionnels et bascule mutualisme-parasitisme (H1 Shelake 2026)
- Endophytes ubiquitaires et potentiel pathogène latent
- ACS : les 3 piliers (non-labour, couverture permanente, rotation diversifiée)
- Couverts végétaux : design, biomasse et services rendus
- Résistome et transfert horizontal : la face sombre du continuum
- Phages et transduction des ARG : réservoir silencieux du résistome
- Immunité nutritionnelle : forme d'azote (NH₄⁺/NO₃⁻) → protéosynthèse → signalisation JA-SA
- Vésicules extracellulaires et small-RNA cross-règne : modalité moléculaire du dialogue holobionte
- Coalescence microbienne : quand les communautés se mélangent
- Trophobiose (Chaboussou) : la plante nourrie attire son ravageur
- Le résistome du sol : la RAM est indigène, l'agriculture la sélectionne
450 Ma de coévolution plante-microbe : cadre temps-profond trois piliers
Primo, cette intégration n'est pas un événement figé : elle se poursuit encore aujourd'hui. Secundo, les plantes ont été mycorhizées avant d'avoir de vraies racines — la symbiose a rendu possible la vie terrestre. Tertio, l'immunité des plantes n'est pas qu'un bouclier : c'est un système de tri qui repousse les intrus tout en laissant entrer les alliés, lesquels savent se faire accepter. Aujourd'hui, l'immense majorité des plantes vivent en symbiose avec des champignons.
Science
Cadre de lecture coévolutive en temps profond (Shelake 2026), en trois piliers :
- Organellogenèse : mitochondrie ~2 Ga, chloroplaste ~1,5 Ga, nitroplaste ~100 Ma (UCYN-A, génome 1,44 Mb) : l'endosymbiose continue aujourd'hui.
- Évolution racinaire : la mycorhization (~450 Ma) précède les vraies racines (416-360 Ma) : la symbiose biologique a construit la possibilité même d'avoir des racines à terre.
- Contrôle d'accès immunitaire : l’immunité végétale n’est pas qu’une défense : c’est le système de tri du microbiome. Les récepteurs membranaires PRR détectent les motifs microbiens conservés (flagelline, chitine) → immunité PTI ; les récepteurs intracellulaires NLR détectent les effecteurs → immunité ETI. Le même appareil exclut les pathogènes ET admet les symbiotes, qui désamorcent localement la PTI par leurs signaux (facteurs Myc/Nod) : la frontière ami/ennemi se gère par modulation, pas par reconnaissance binaire. La mémoire transgénérationnelle (priming hérité) transmet l’expérience immunitaire à la descendance.
Aujourd'hui, 85 % des plantes terrestres forment des mycorhizes (Brundrett & Tedersoo, 2018).
Double pilier fongique (mise à jour) : la mycorhization ancestrale ne fut pas l'œuvre d'une seule lignée. Deux clades agirent de concert comme « racines de substitution » — les Glomeromycotina (arbuscules, biotrophes obligatoires) ET les Mucoromycotina (« fine root endophytes »), longtemps négligés et capables de saprotrophie facultative, voire antérieurs sur les lignées basales (Bidartondo 2011 ; Prout 2023). La résilience des premières plantes terrestres reposait donc déjà sur une diversité fonctionnelle fongique (transfert de P + flexibilité métabolique).
Cards en dialogue (16)
- Approfondit
-
- Évolution du vivant : monde anaérobie → photosynthèse → oxygénation → respiration (cadre redox)
- Évolution des plantes et construction du sol : racines, mycorhizes, rhizosphère, boucles plante–microbiome
- Seuils nutritionnels et bascule mutualisme-parasitisme (H1 Shelake 2026)
- Redondance fonctionnelle et résilience coévolutive (H5/DP4)
- Mémoire transgénérationnelle plante-microbiome
- Approfondi par
-
- Strigolactones : signal à triple fonction (architecture, mycorhize, parasitisme)
- Antifragilité : stress modéré → diversification de l'hologénome
- Auxotrophie et co-évolution : le virage lipidique CMA-plante comme signature de symbiose obligatoire
- Voie de symbiose commune (CSSP) : SYMRK, CCaMK, CYCLOPS comme modules universels conservés
- Voir aussi (7)
-
- Histoire des sols : désastres et réussites (Croissant fertile, Nil, Terra Preta, Milpa)
- Cycle du carbone : de la photosynthèse à la MAOM
- Agroforesterie biominérale tropicale : design des systèmes oxalogènes pour séquestration C pérenne
- Récepteurs ancestraux et détournement évolutif (exaptation) : KAI2, le cas-type des Orobanchacées
- Wood Wide Web : critique scientifique du paradigme des réseaux mycorhiziens communs (CMN)
- Archées Asgard et origine eucaryote : la lignée eucaryote prend ses racines dans le domaine archéen
- Pédogenèse et CLORPT : les cinq facteurs de formation des sols
Seuils nutritionnels et bascule mutualisme-parasitisme (H1 Shelake 2026)
On peut formuler une hypothèse simple : pour chaque couple plante-champignon ou plante-bactérie, il existe des seuils en phosphore et en azote au-delà desquels l'alliance coûte plus de sucre qu'elle ne rapporte de nutriments. En sol riche en phosphore, le champignon mycorhizien devient un parasite ; en sol riche en azote, la bactérie fixatrice cesse de fixer et vit des débris. La formation des nodules consomme une part notable des sucres de la plante. Cette idée confirme un principe constant : une fertilisation excessive rompt ces mutualismes. Reste un front de recherche ouvert : établir les plages précises de ces seuils.
Science
Hypothèse testable : pour chaque couple plante-AMF ou plante-rhizobium, il existe des seuils P/N quantifiables au-delà desquels le coût carboné du mutualisme dépasse le bénéfice nutritionnel.
À P élevé, l'AMF glisse vers le pôle parasitaire du continuum mutualisme-parasitisme (C drain ; Johnson et al., 1997 ; Wipf, 2019) ; à N riche, le rhizobium évolue vers des souches moins mutualistes (perte de qualité symbiotique sous fertilisation N prolongée ; Gordon et al., 2016). La nodulation et la fixation consomment une part significative du photosynthète — de l'ordre de 4-16 % du photosynthète net, jusqu'à ~30 % en comptant le coût brut de respiration nodulaire (Herridge & Pate, 1977).
C'est la validation quantitative du principe anti-sur-fertilisation (faim d'azote). Front de recherche ouvert : établir les plages critiques.
Cards en dialogue (12)
- Approfondi par
- Voir aussi (9)
-
- MO–argile → transition stœchiométrique → stratégies microbiennes
- ACS : les 3 piliers (non-labour, couverture permanente, rotation diversifiée)
- Strigolactones : signal à triple fonction (architecture, mycorhize, parasitisme)
- Module D14-MAX2-SMXL : architecture moléculaire de la signalisation des strigolactones
- Stœchiométrie CNPS et modèle AMG
- Cycle du phosphore : fixation, solubilisation biologique, mycorhizes
- Continuum ami-ennemi microbien : plasticité rapide des statuts
- Diagnostic plante : pH et EC de sève foliaire/pétiolaire comme signatures nutritionnelles précoces
- Triangle des maladies végétales × extrêmes climatiques : cadre diagnostique renouvelé
Redondance fonctionnelle et résilience coévolutive (H5/DP4)
C'est le constat derrière les communautés synthétiques qu'on introduit dans les sols : celles qui persistent le mieux ne sont pas les plus sophistiquées, mais celles dont les membres peuvent se remplacer mutuellement. L'histoire du vivant le confirme par analogie : lors des grandes extinctions, les groupes aux fonctions redondantes ont mieux survécu. Traduction pratique : diversifier ses rotations et ses couverts multi-espèces, c'est mettre toutes les chances du côté de la redondance, ce filet de sécurité invisible qui amortit les perturbations.
Science
La résilience des associations plante-microbe dépend de la redondance fonctionnelle et de la diversité géographique des pools microbiens, plus que de l'identité des souches. Au champ, les SynComs connaissent des résultats contrastés : elles colonisent la rhizosphère et bénéficient à la plante, mais au prix de pertes de lignées — leur persistance est conditionnée à la redondance fonctionnelle (Fonseca-García 2024) ; les consortia redondants persistent mieux. La conception rationnelle privilégie des SynComs de quelques souches à chevauchement fonctionnel (Jing 2024).
Les cinq grandes extinctions de masse (446 / 371 / 251 / 200 / 65 Ma, > 75 % d'espèces perdues) illustrent — par analogie macroévolutive, non comme preuve directe du mécanisme agronomique — que la redondance favorise la survie post-perturbation. Cohérent avec la diversité des rotations ACS et des couverts multi-espèces.
Cards en dialogue (21)
- À lire d’abord
- Donne naissance à
- Approfondit
- Approfondi par
- Voir aussi (11)
-
- Éliciteurs biologiques exogènes : chitosane et oligogalacturonides (priming PTI/SAR)
- Strigolactones : signal à triple fonction (architecture, mycorhize, parasitisme)
- Microorganismes prédateurs indigènes (IPMO) : la capture ciblée par appât insecte
- Mycobiome intestinal et axe gut-brain fongique : le 3ᵉ domaine oublié de la santé humaine
- Gestion systémique des nématodes à galles : rotations, cultures-pièges et régulation trophique
- Diversité fongique dual rôle producteur/régulateur : les champignons comme acteurs ambivalents des cycles biogéochimiques
- Top-down vs bottom-up : doctrine de régulation des communautés microbiennes du sol
- Bio-indication précoce du microbiome (métabarcoding multi-marqueurs) : détection des dégradations avant manifestation visuelle
- Quorum Quenching One Health : désarmement enzymatique des pathogènes vs antibiorésistance
- Souveraineté azote-fertilisation : l'autonomie nationale face à la dépendance Haber-Bosch
- Core microbiome : le noyau fonctionnel de l'holobionte
M genes : la plante orchestre son microbiome
À côté des gènes de résistance classique, il existe des gènes qui orchestrent l'assemblage du cortège microbien bénéfique autour des racines. Une variété de maïs paysan, par exemple, sécrète par ses racines un mucilage sucré qui attire et nourrit des bactéries capables de lui fournir de l'azote. Cette résistance « par le microbiome » est difficile à contourner pour un agresseur, car elle repose sur toute une communauté plutôt que sur une seule serrure.
Le soupçon : la sélection moderne, menée sous engrais et pesticides, aurait érodé ces gènes d'assemblage — que les variétés anciennes et les formes sauvages conservent. Une piste, pas une certitude.
Science
Contrairement aux R genes (résistance classique, contournables), les plantes possèdent des M genes (microbiota-assembly genes, néologisme par analogie aux R genes) qui régulent le recrutement et l'assemblage de leur communauté microbienne bénéfique. Cette résistance « par le microbiome » s'appuie sur la diversité microbienne et chimique du recrutement — difficile à contourner pour un pathogène.
Exemples : un haplotype naturel du gène NRT1.1B du riz (indica vs japonica) recrute des communautés racinaires distinctes et module l'utilisation de l'azote au champ (Zhang et al., 2019) ; des landraces de maïs produisent un mucilage riche en glucides nourrissant Burkholderia/Azospirillum fournisseurs d'azote (Van Deynze 2018) ; le microbiome du téosinte reste lié à son environnement ancestral (Barnes 2024). La domestication sous intrants aurait érodé les M genes (hypothèse), que les landraces et formes sauvages conservent.
Cards en dialogue (8)
- Voir aussi (6)
-
- Évolution des plantes et construction du sol : racines, mycorhizes, rhizosphère, boucles plante–microbiome
- Couverts végétaux : design, biomasse et services rendus
- Quorum sensing dans la rhizosphère : communication bactérienne, perception végétale, biofilms
- Vésicules extracellulaires et small-RNA cross-règne : modalité moléculaire du dialogue holobionte
- Phytohormones : le langage moléculaire de la plante
- Le cycle endophytique : une continuité, pas un compartiment
Mémoire transgénérationnelle plante-microbiome
Cette transmission emprunte plusieurs voies : des marques chimiques posées sur les gènes de défense — une hérédité non génétique —, une empreinte laissée dans le sol par les racines, et un microbiote racinaire partiellement transmis. On l'observe en conditions contrôlées sur quelques générations ; en plein champ, la durabilité de l'effet reste mal cernée. C'est l'un des mécanismes possibles des rotations longues et des effets de précédent : ce qu'on plante une année modifie ce que la culture suivante hérite.
Science
Les plantes transmettent à leurs descendants une mémoire de leurs interactions microbiennes, par trois voies :
- modifications épigénétiques des gènes de défense : la résistance systémique acquise transgénérationnelle est régulée par la voie de méthylation de l'ADN dirigée par ARN (RdDM) et transmise par hypométhylation des sites CpNpG, le priming de défense s'observant chez la descendance d'Arabidopsis malade (Luna, 2012) ; cette régulation épigénétique s'étend aux symbioses mycorhiziennes, des réponses plastiques aux héritages transgénérationnels (Beltrán-Torres, 2026) ;
- empreinte rhizosphérique : les flavonoïdes exsudés par le sarrasin modifient le microbiome du sol, créant un héritage microbien qui protège la culture suivante (Wu, 2025) ;
- transmission partielle du microbiome racinaire.
Exemples : le linalol du maïs à haute densité active la signalisation jasmonate chez les plantes voisines et promeut l'exsudation racinaire de benzoxazinoïdes, créant une rétroaction plante-sol durable (Guo, 2025) ; en rotation sarrasin-chou, trois ans d'essais au champ réduisent durablement la hernie des crucifères de 67 à 97 %, quel que soit le niveau d'inoculum pathogène, effet aboli par stérilisation du sol — preuve d'un fondement microbien (Wu, 2025). Durabilité en champ encore mal caractérisée. C'est un des mécanismes possibles des rotations longues et des effets précédents.
Cards en dialogue (13)
- Approfondit
- Approfondi par
- Voir aussi (9)
-
- ACS : les 3 piliers (non-labour, couverture permanente, rotation diversifiée)
- Couverts végétaux : design, biomasse et services rendus
- Transition : chronoséquence 4 phases et indicateurs de suivi
- Éliciteurs biologiques exogènes : chitosane et oligogalacturonides (priming PTI/SAR)
- Mycobiome intestinal et axe gut-brain fongique : le 3ᵉ domaine oublié de la santé humaine
- Mémoire du sol et auto-régulation suppressive : la dimension transgénérationnelle de la résilience pédologique
- Lutte intégrée bio-mimétique 4 piliers : cadre stratégique unifié pour la gestion des bioagresseurs
- Vésicules extracellulaires et small-RNA cross-règne : modalité moléculaire du dialogue holobionte
- Crosstalk JA-SA : le dispatcher hormonal de la défense végétale
Cry-for-help : recrutement stress-induit du microbiome
Ses racines modifient ce qu'elles exsudent : un manque de fer lui fait sécréter des molécules qui attirent les microbes capables de mobiliser le fer ; un riz attaqué émet un signal qui recrute un fixateur d'azote. C'est le « cri à l'aide » : la plante utilise sa communauté microbienne comme un système immunitaire étendu.
La leçon : pour concevoir des inoculants de stress, mieux vaut imiter ces recrutements naturels qu'imposer un étranger au hasard.
Illustration : Fig. card 70-A · Cry-for-help : recrutement stress-induit du microbiome…
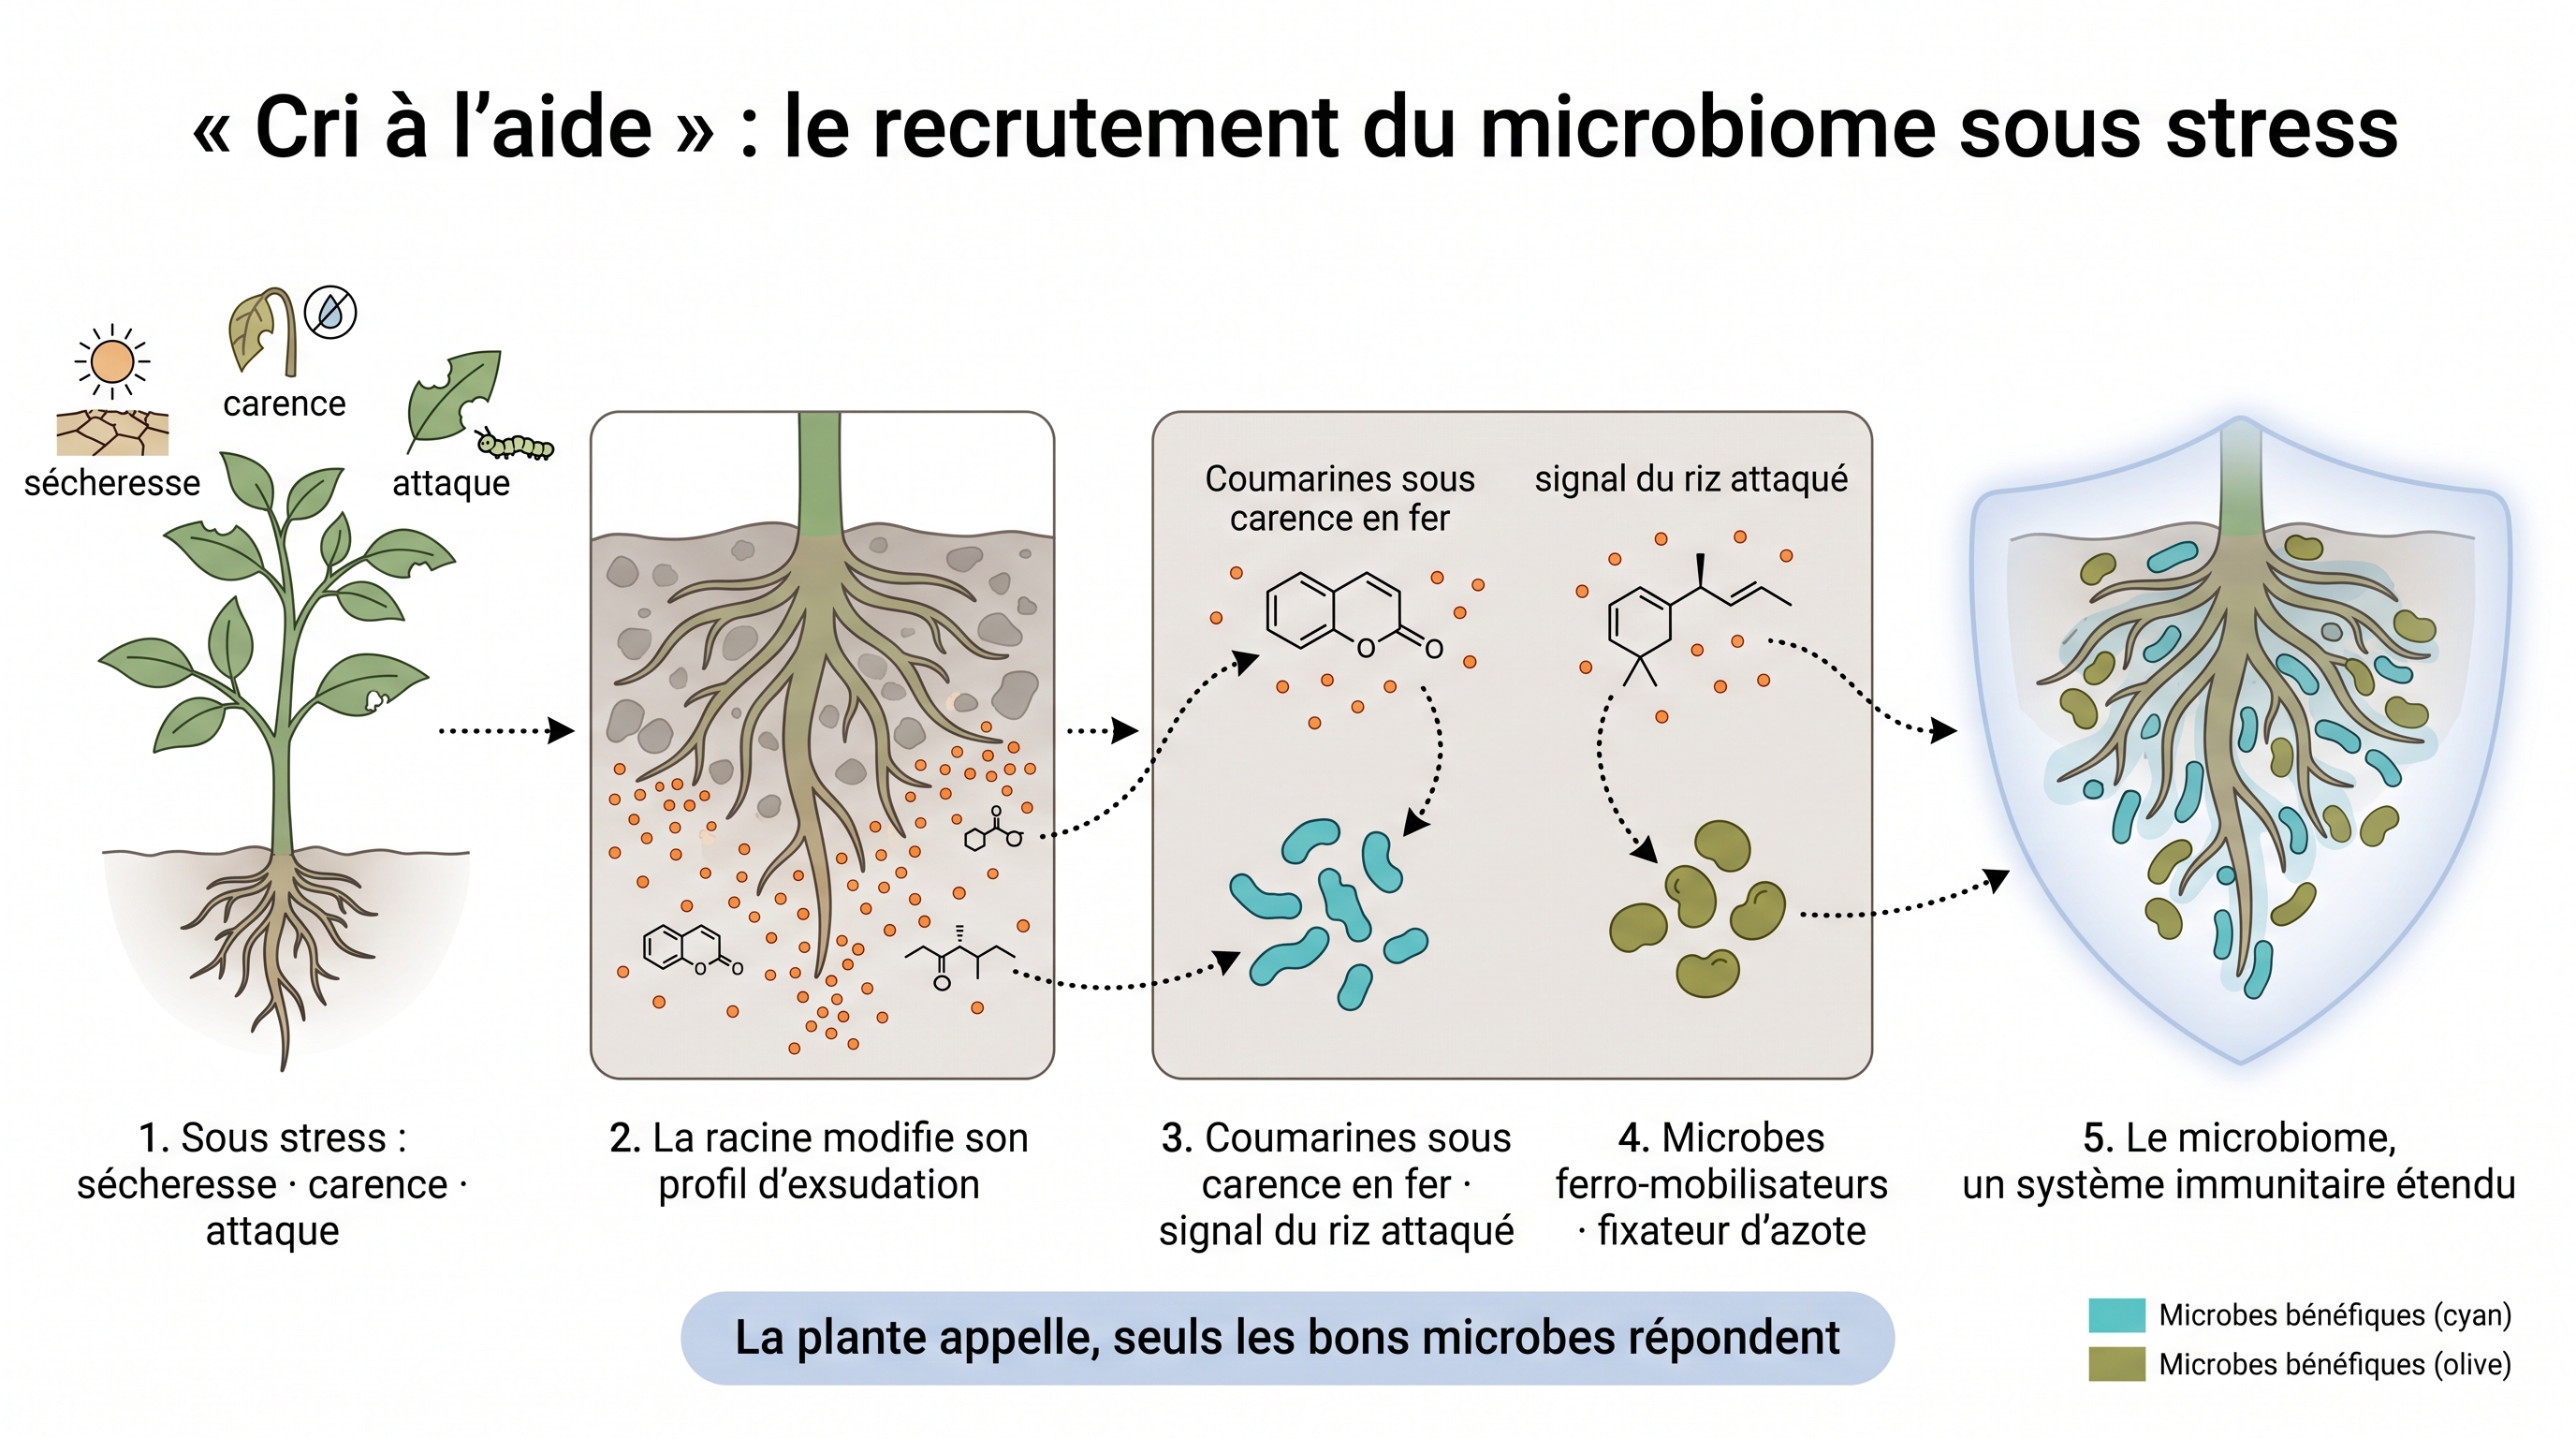
Science
Sous stress biotique ou abiotique, les plantes modifient activement leur profil d'exsudation pour recruter des microbes protecteurs : le cry-for-help (« cri à l'aide »), stratégie adaptative par laquelle les exsudats racinaires assemblent un microbiome bénéfique pour la santé — la plante utilisant son microbiome comme système immunitaire étendu (Rolfe, 2019).
Exemples : coumarines exsudées sous carence en fer → microbes ferro-mobilisateurs chez Arabidopsis (Harbort, 2020) ; glutamine libérée localement, structurant spatialement la colonisation microbienne racinaire (Tsai, 2025) ; flavones du riz génétiquement modifiées — dont l'apigénine, exsudée en excès par édition de son catabolisme — stimulent le biofilm des bactéries diazotrophes du sol et la fixation biologique de l'azote, avec un rendement en grain accru sous azote limitant (Yan, 2022) ; linalool du maïs. Le stress hydrique mobilise la même logique : la sécheresse retarde le développement du microbiome racinaire du sorgho et l'enrichit en bactéries monodermes (Xu, 2018), et l'héritage de sécheresse sur le microbiome rhizosphérique persiste au long de neuf semaines de croissance, indépendamment du stress hydrique en cours (Munoz-Ucros, 2021). Conséquence : les SynComs de tolérance au stress doivent être conçues en imitant ces recrutements naturels.
Cards en dialogue (19)
- À lire d’abord
- Approfondi par
- Voir aussi (15)
-
- Hydrique & redox → stress / microzones → stratégies
- Couverts végétaux : design, biomasse et services rendus
- Continuum sol-plante-humain : le fil rouge du corpus
- Interaction chaleur × sécheresse : quand un plus un dépasse deux
- Quorum sensing dans la rhizosphère : communication bactérienne, perception végétale, biofilms
- Strigolactones : signal à triple fonction (architecture, mycorhize, parasitisme)
- Microorganismes prédateurs indigènes (IPMO) : la capture ciblée par appât insecte
- Triangle des maladies végétales × extrêmes climatiques : cadre diagnostique renouvelé
- Gestion systémique des nématodes à galles : rotations, cultures-pièges et régulation trophique
- Boucle microbienne du sol : protozoaires, paradoxe fonctionnel et minéralisation pilotée
- Sidérophores et voie de capture mycorhizienne : mobilisation biologique des micronutriments métalliques
- Vésicules extracellulaires et small-RNA cross-règne : modalité moléculaire du dialogue holobionte
- Crosstalk JA-SA : le dispatcher hormonal de la défense végétale
- Priming immunitaire végétal : opérateur cellulaire commun aux voies endogène (rhizosphère/ISR) et exogène (éliciteurs/PTI-SAR)
- Phytohormones : le langage moléculaire de la plante
Endophytes ubiquitaires et potentiel pathogène latent
Cet état de paix tient par un « antagonisme équilibré » : la virulence du microbe est neutralisée par les défenses de la plante et par l'autorégulation du microbe lui-même. L'infection reste silencieuse tant que l'équilibre tient ; un stress — chaleur, sécheresse, faim — peut le rompre et faire basculer l'allié en exploiteur opportuniste.
Le statut d'un microbe n'est donc pas une étiquette d'espèce, mais une propriété du contexte : c'est l'équilibre entre la plante, le microbe et l'environnement qui décide, à chaque instant.
Science
Tous les tissus végétaux (racines, tiges, feuilles, graines) sont colonisés par des endophytes, par transmission verticale (graines, clones) et horizontale (sol, environnement) — chez des plantes dont 85 % entretiennent par ailleurs des mycorhizes.
Tout endophyte conserverait un potentiel pathogène latent lié à son métabolisme secondaire (cadre Schulz & Boyle — l'absolu est débattu, certaines lignées ayant perdu leurs voies de virulence avérées) : cluster de sesquiterpène activable chez C. tofieldiae (Hiruma 2023), cluster du botrydial dont la désactivation transforme un pathogène en bénéfique (Ujimatsu 2025), effecteurs latents chez Colletotrichum. Comme le résume Shelake (2026), « les associations bénéfiques plante-champignon ont pu s'accompagner du compromis de laisser entrer des phytopathogènes ». Ce n'est pas un cas particulier (comme la double identité des champignons entomopathogènes) mais le régime général.
Ce statut latent tient par antagonisme équilibré (Schulz & Boyle 2005 ; Partida-Martínez & Heil 2011) : l'endophytisme est une infection contrôlée où la virulence du microbe est neutralisée par les défenses de l'hôte et par l'autorégulation métabolique du microbe. Tant que l'équilibre tient, la colonisation reste asymptomatique ; tout stress qui affaiblit l'hôte (thermique, hydrique, nutritionnel) le rompt et fait basculer l'allié en exploiteur opportuniste. Le statut n'est donc pas une étiquette d'espèce mais une propriété émergente et contextuelle de l'équilibre hôte–microbe–environnement.
Rhizophagie (White, 2018) — modalité proposée du cycle endophytaire : la plante internaliserait et lyserait directement des bactéries (notamment dans les méristèmes racinaires) pour acquérir azote et phosphore, via la production de superoxyde par les NADPH oxydases. La doctrine la traite comme une hypothèse structurante mais non consolidée : critiques méthodologiques (magnitude du transfert non quantifiée sur le terrain, absence de modèles de flux distincts de la minéralisation classique, confusion possible avec l'autophagie, nécessité de dommages racinaires : fiche #74 §3) et tensions théoriques (conflit de signalisation avec la réponse hypersensible, coût énergétique de la lyse, origine semencière vs recrutement opportuniste du sol, risque de saturation des capacités oxydatives par les bio-inoculants : fiche #74 §6). La présente card ne canonise pas le mécanisme : le consensus expérimental est en cours de constitution.
Cards en dialogue (9)
- Approfondit
- Voir aussi (7)
-
- Lombriciens : catégories écologiques, drilosphère, turricules, biopores et interactions racines
- Continuum ami-ennemi microbien : plasticité rapide des statuts
- Champignons multifonctionnels : entomopathogènes, endophytes mutualistes ET biocontrôleurs : paradigme intégrateur
- Résistance systémique induite
- Rhizosphère
- Symbiose
- Le cycle endophytique : une continuité, pas un compartiment
Co-inoculation Bradyrhizobium + Azospirillum : synergie physiologique au-delà de la FBN
L'une fixe l'azote dans les nodosités, l'autre l'aide à mieux boire et manger.
Le secret de la seconde : elle fabrique des hormones qui multiplient les racines et les poils absorbants. Résultat, la plante explore plus de sol, tolère mieux la sécheresse, et la fixation d'azote peut donner sa pleine mesure — même là où elle plafonnait seule.
Leçon pour la conception des inoculants : penser le couple, pas un micro-organisme isolé. C'est aujourd'hui la norme chez les grands producteurs de soja brésiliens, avec des gains de rendement réels.
Science
Co-inoculation Bradyrhizobium + Azospirillum brasilense : il ne s'agit pas d'un simple apport N supplémentaire. Le mécanisme dominant est une synergie physiologique :
- Azospirillum produit des phytohormones (auxines principalement) qui stimulent la croissance des racines latérales et des poils absorbants (Santos 2021).
- Conséquence : meilleure absorption de l'eau et des nutriments, ce qui renforce la tolérance au stress hydrique et permet à la symbiose rhizobienne d'exprimer son plein potentiel (Reina & Peluzio, 2017 ; Fukami, 2018 ; sur haricot commun : Steiner et al., 2019 ; Nascimento, 2023).
Données chiffrées (modèle brésilien soja) :
- +14 à 16 % de rendement moyen vs inoculation simple Bradyrhizobium (Alessandro et al. 2023)
- Autonomie N via FBN : 70 à 95 % des besoins en azote couverts (Telles et al., 2023)
- Pratique aujourd'hui standard chez les grands producteurs de soja brésiliens.
Implications
- Le design des inoculants doit penser le couple, pas un micro-organisme isolé.
- Le co-bénéfice hormonal explique pourquoi la co-inoculation fonctionne aussi dans des régions où la FBN seule stagne.
- Voir aussi : cycle de l'azote et phosphore (cofacteur).
Cards en dialogue (13)
- Approfondit
- Voir aussi (10)
-
- Cycle de l'azote : fixation, minéralisation, nitrification, pertes
- Cycle du phosphore : fixation, solubilisation biologique, mycorhizes
- Cycle de l'eau : potentiel hydrique, flux, résilience biologique
- Cobalt, vitamine B12 et fixation biologique de l'azote : la chaîne oligoélémentaire oubliée
- Extraits d'algues marines : phycocolloïdes, bétaïnes et mimétiques phytohormonaux
- Chélation organique et biostimulation foliaire : acides aminés, hydrolysats et mobilité des oligoéléments
- Rhizosphère
- Légumineuses
- Symbiose
- MHB : les bactéries auxiliaires de la mycorhization
Paradoxe du ruissellement en ACS : accumulation surface vs matrice diluée
Le diable est dans la surface.
Sans labour, les amendements (lisier, fumier) ne sont plus mélangés dans la profondeur : leurs résidus, et les bactéries résistantes qu'ils portent, s'accumulent en surface. À la première pluie, ils partent avec l'eau avant d'avoir été dilués ou dégradés.
Le remède est simple et puissant : une bande enherbée en bord de parcelle, qui filtre l'eau avant qu'elle ne sorte. La leçon : juger une pratique sur son bilan aquatique, pas seulement sur son bilan sol.
Science
Le Paradoxe du Ruissellement en Agriculture de Conservation des Sols (ACS) : l'ACS (notamment semis direct / no-till) améliore la structure du sol et réduit globalement les ARG dans la matrice pédologique, mais elle présente un effet pervers pour la gestion de la pollution antimicrobienne.
Mécanisme
- Contrairement au labour conventionnel qui mélange et dilue les amendements (lisier, fumier, boues) dans la couche arable, l'absence de travail du sol tend à concentrer les résidus d'antibiotiques et les ARG dans les premiers centimètres (non-incorporation des amendements organiques).
- Lors d'événements pluvieux, ces contaminants concentrés en surface sont entraînés par le ruissellement (runoff) vers les eaux de surface avant d'avoir pu être dégradés ou adsorbés par la matrice profonde.
- Résultat : distorsion sol vs eau — une parcelle en ACS peut afficher moins d'ARG dans le profil pédologique, tout en générant des eaux de ruissellement plus chargées en bactéries résistantes et gènes mobiles.
Capacité d'adsorption limitée
- L'efficacité des amendements protecteurs (biochar notamment) dépend de la capacité maximale d'adsorption, qui n'est pas infinie.
- Le mélange complexe de polluants peut saturer les sites d'adsorption → effet protecteur possiblement limité à long terme.
Mesure corrective
- Installation de bandes enherbées (prairie strips) en bordure de parcelle = levier critique.
- Filtration physique des sédiments + réduction significative de la charge en ARG des eaux de runoff avant sortie du système.
Implications
- L'évaluation d'une pratique agroécologique doit inclure le bilan aquatique, pas seulement le bilan sol.
- Cf ACS 3 piliers, résistome et transfert horizontal.
Cards en dialogue (3)
Phages et transduction des ARG : réservoir silencieux du résistome
En se multipliant, un phage peut emporter par accident un fragment du génome de sa bactérie hôte, y compris un gène de résistance, et le livrer à la bactérie suivante. Pire : ces virus peuvent survivre à l'élimination des bactéries, puis ressurgir plus tard.
Les points chauds sont les milieux chargés — sols amendés, eaux usées, déchets plastiques. Compter seulement les bactéries résistantes, sans compter leurs virus, c'est lire la moitié du problème.
Science
Les bactériophages (phages) sont des vecteurs de transduction des ARG largement sous-estimés dans les bilans globaux de résistance antimicrobienne (AMR). Bien qu'ils soient souvent cités comme agents de sols suppressifs, leur rôle comme réservoir et vecteur de gènes de résistance est rarement quantifié (Goryluk-Salmonowicz 2022).
Mécanisme
- Transduction généralisée : un phage lytique peut empaqueter accidentellement des fragments d'ADN bactérien (ADN chromosomique aléatoire au sens canonique ; des plasmides sont aussi transductibles chez certaines espèces — les intégrons étant surtout mobilisés par transposons/conjugaison) et les transférer à la prochaine cellule hôte.
- Transduction spécialisée : intégration dans le génome bactérien, puis excision imprécise peut emporter un ARG adjacent.
Réservoir persistant
- Le phageome peut persister après élimination des bactéries hôtes par un traitement (ex. digestion anaérobie, compostage) — la persistance dépendant du couple température/durée, un compostage thermophile bien mené inactivant aussi les phages.
- Conséquence : les technologies de décontamination qui ciblent les bactéries peuvent laisser intact le réservoir phagique → re-émergence possible.
Sites denses
- Sols amendés (lisier, fumier), eaux usées traitées, biofilms de microplastiques → forte densité de phages avec ARG.
Implications
- Les bilans AMR doivent intégrer le compartiment viral, pas seulement le compartiment bactérien.
- Les indicateurs métagénomiques actuels sous-estiment la capacité de transduction (difficulté d'assignation phage → hôte).
- Cf résistome et transfert horizontal.
Cards en dialogue (9)
- Approfondit
- Voir aussi (7)
-
- Continuum ami-ennemi microbien : plasticité rapide des statuts
- Mycobiome intestinal et axe gut-brain fongique : le 3ᵉ domaine oublié de la santé humaine
- Immunité nutritionnelle : forme d'azote (NH₄⁺/NO₃⁻) → protéosynthèse → signalisation JA-SA
- Banque de semences microbienne dormante : prophages, persisters et spores, le réservoir invisible
- Virome et gènes métaboliques auxiliaires (AMG) : le phage reprogramme l'hôte et co-pilote les cycles biogéochimiques
- Shunt viral du sol : les phages comme moteur du cycle du carbone
- Le résistome du sol : la RAM est indigène, l'agriculture la sélectionne
Quorum sensing dans la rhizosphère : communication bactérienne, perception végétale, biofilms
Elles émettent de petites molécules-signal et n'agissent qu'une fois assez nombreuses pour que le message passe un seuil.
Au-dessus de ce seuil, tout se synchronise : construction de biofilms protecteurs, fixation d'azote, ou attaque coordonnée. Et la plante n'est pas sourde — elle perçoit ces signaux et peut les brouiller pour désarmer un agresseur sans le tuer.
Les biofilms travaillent mieux que les bactéries isolées : favoriser la matière organique et l'humidité, c'est offrir ces bonnes conditions de groupe. Mais brouiller tous les signaux à grande échelle serait risqué — on désarmerait aussi les alliés.
Science
Le Quorum Sensing (QS) est le système de communication intercellulaire qui permet aux micro-organismes de la rhizosphère de percevoir leur densité de population via l'émission et la détection de molécules signal (autoinducteurs). Au-dessus d'un seuil critique, les bactéries coordonnent leur expression génique collective (biofilm, virulence, mobilité, FBN, nodulation). La plante n'est pas un spectateur passif — elle perçoit ces signaux et peut les interférer (quorum quenching, QQ).
Diversité des signaux (au-delà des AHL et AI-2) :
- AHL (N-acyl-homosérine lactones) : principaux signaux Gram-négatifs. Spécificité dépend de la longueur de chaîne acyle, degré de saturation, substitutions C3 (Rosier & Bais 2022).
- AI-2 (autoinducteur-2) : signal universel inter-espèces.
- AIP (peptides autoinducteurs) : principaux chez les Gram-positifs, émergents en rhizosphère (Boban et al., 2023).
- Acides gras signalisateurs : ex. cis-2-dodécénoïque, autoinducteur modulant activités physiologiques microbiennes (Feng 2022).
Perception végétale des signaux bactériens
- AHL 3-oxo-C6-HL perçu par des récepteurs couplés aux protéines G : GCR1 et GPA1 (Liu et al., 2012).
- En parallèle, la plante détecte les motifs moléculaires associés aux microbes (MAMPs/PAMPs : facteurs NOD, flagelline, peptidoglycanes).
- Réponses déclenchées : remodelage du cytosquelette, synthèse hormonale (SA, JA, éthylène), régulation gènes de défense.
Biofilms et supériorité métabolique
- Les biofilms rhizosphériques ne sont pas seulement des structures de protection — ils présentent une activité métabolique supérieure aux formes planctoniques : production d'ammoniac, d'auxines et activité nitrogénase significativement plus élevées (Pseudomonas, Bacillus) (Backer 2018).
- La matrice d'EPS agit comme échangeur anionique/cationique → concentre les nutriments même à très faibles concentrations dans le sol (Zhang et al., 2024).
- Cf Structure / agrégats / EPS.
Interférence végétale (quorum quenching)
- Mécanismes d'exsudation de molécules bloquant les AHL ou leurs récepteurs.
- Exemple corrigé : sous stress, Arabidopsis thaliana accumule et exsude du GABA (acide γ-aminobutyrique), qui module le comportement d'Agrobacterium tumefaciens (dissémination du plasmide Ti, adaptation bactérienne) — sans inhibition du QS au sens strict (Lang & Faure, 2016 ; Dessaux & Faure, 2018).
- Risque écologique des stratégies QQ appliquées (bio-intrants, enzymes) : effets hors-cible sur les communautés microbiennes bénéfiques → à évaluer avant déploiement (Jeyakumar 2024).
Facteurs abiotiques qui modulent le signal
- Température : une hausse peut stimuler la production de signaux QS et d'enzymes de dégradation chez Pectobacterium atrosepticum → aggrave les maladies.
- Disponibilité en eau : stress hydrique → conditions oligotrophes dans le sol → modifie la composition communautaire et la densité requise pour activer le QS.
- pH, redox, teneur en MO modulent la stabilité des AHL (dégradation alcaline).
Lacunes méthodologiques
- Validation in situ des molécules clés largement insuffisante.
- Nécessité d'intégrer multi-omique, édition génomique ciblée, IA pour une résolution fonctionnelle (Ait-El-Mokhtar 2023).
- Coût énergétique du QS pour la bactérie : les processus régulés ne sont avantageux qu'au-dessus du seuil critique de densité — implication majeure pour la formulation de bio-intrants .
Implications pour les pratiques
- Favoriser les conditions de biofilm (MO, humidité, couverture permanente) pour activer les bénéfices QS (PGPR, FBN).
- Prudence sur les approches QQ déployées à grande échelle : risque de dommage collatéral sur les communautés mutualistes.
Cards en dialogue (13)
- Donne naissance à
- Approfondi par
- Voir aussi (11)
-
- Structure du sol (agrégats/EPS) → habitats → stabilité/résilience
- Résistome et transfert horizontal : la face sombre du continuum
- M genes : la plante orchestre son microbiome
- Cry-for-help : recrutement stress-induit du microbiome
- Axe sucre simple → dysbiose intestinale → maladie cardiométabolique
- Éliciteurs biologiques exogènes : chitosane et oligogalacturonides (priming PTI/SAR)
- Boucle microbienne du sol : protozoaires, paradoxe fonctionnel et minéralisation pilotée
- Top-down vs bottom-up : doctrine de régulation des communautés microbiennes du sol
- Autodissémination et push-pull insectes : ingénierie comportementale et amplification CEP
- Vésicules extracellulaires et small-RNA cross-règne : modalité moléculaire du dialogue holobionte
- Biofilms microbiens : architecture EPS et théâtre des cycles
rH2, capacité redox et poising capacity : au-delà de l'Eh ponctuel
Deux sols peuvent afficher la même tension, l'un fragile, l'autre blindé.
Le tampon, c'est la réserve : un sol riche en matière organique et en fer encaisse une pluie ou un apport sans bouger. Un sol sableux, sans réserve, bascule d'un coup vers l'asphyxie ou vers l'excès d'oxydation.
Pour comparer deux sols, on corrige la tension par l'acidité — c'est le rôle d'un indice synthétique, le rH2. Un sol vivant, c'est d'abord un sol qui tient sa tension stable quoi qu'on lui fasse.
Science
L'Eh (potentiel d'oxydoréduction) mesure l'intensité redox mais ne dit rien de la capacité d'un sol à maintenir son état face à des perturbations. Pour un usage agronomique moderne (ACS, santé du sol), deux paramètres complémentaires sont essentiels : le rH2 (intensité indépendante du pH) et la capacité redox (réserve tamponnante — Pidello, 2003 ; Schüring et al., 2000).
Le rH2 — indice d'activité réelle des électrons
- Définition : dans la plupart des sols, une variation d'une unité de pH entraîne une variation inverse de l'Eh d'environ 59 mV (25°C). L'Eh est donc dépendant du pH, ce qui complique la comparaison entre sols.
- Calcul (25°C) : rH2 = (Eh/29.5) + 2·pH, où Eh est en mV vs ENH.
- Échelle théorique : 0 à 42. Point de neutralité ≈ 28 (équilibre avec l'atmosphère sans excès d'oxydant/réducteur) — échelle historique de Clark, convention du XXe siècle.
- État de réduction maximale : rH2 faible. État d'oxydation maximale : rH2 élevé.
- Indice Ka de distance à l'équilibre thermodynamique : indicateur de santé globale de l'écosystème (Loiret 2013).
Intérêt agronomique du rH2
- Les plantes et les mycorhiziens maintiennent activement leur milieu interne dans une fourchette de rH2 spécifique (milieu légèrement réduit) (Husson 2012).
- Nombreux pathogènes (Fusarium, bactéries telluriques) se développent aux extrêmes (oxydation excessive = stress oxydatif, ou réduction extrême = anaérobiose).
- Indice de vitalité : un sol qui maintient son rH2 stable malgré apports d'engrais ou variations d'humidité possède une forte capacité tampon redox = activité biologique robuste (Husson 2012, Mattila 2023).
- Choix de la forme d'azote : engrais ammoniacaux vs nitriques ont des impacts opposés sur le rH2 — levier de recadrage vers zone d'homéostasie (Cottes 2019).
- L'ACS (semis direct sous couvert végétal) modifie favorablement le potentiel redox (Chabert & Sarthou, 2016).
La capacité redox — réserve et résilience
- Analogie avec l'acidité : le pH indique la concentration instantanée en protons, le pouvoir tampon indique la réserve. De même, Eh = intensité instantanée, capacité redox = réserve totale d'électrons/accepteurs mobilisables (Pidello 2003).
- Un sol peut afficher Eh élevé (oxydé) avec très faible capacité → le moindre stress (stagnation d'eau, apport MO fraîche) fait chuter l'Eh dramatiquement (Husson 2012).
Composantes de la capacité
- Capacité d'oxydation (pool d'accepteurs d'électrons) : O₂ dissous, NO₃⁻, oxydes de Mn, oxyhydroxydes de Fe (Fe³⁺) — quantitativement les plus importants (Schüring 2000).
- Capacité de réduction (pool de donneurs) : Fe²⁺ et surtout Matière Organique du Sol. Le carbone labile = "carburant" de la réduction.
- Rôle clé de la qualité MOS (fraîche vs évoluée/associée aux minéraux) : détermine la capacité de résistance aux variations de potentiel (Husson 2012).
Poising capacity (pouvoir tampon redox)
- Maximal lorsque le couple dominant est présent en quantités égales sous ses deux formes (ex. Fe²⁺/Fe³⁺ équimolaires).
- Sols sains : diversité minéralogique + MOS évoluée (associée aux minéraux) = tamponnement puissant.
- Sols sableux pauvres en matière organique : capacité tampon très faible → conditions redox instables et imprévisibles (Cissé & Vachaud 1988).
Leviers agronomiques
- Résistance stress hydriques : sol à forte capacité redox (MOS + Fe actif) subit baisses d'Eh plus lentes → racines protégées de toxicités Fe²⁺/Mn²⁺.
- Disponibilité nutriments : tamponnement régule la solubilisation P (lié au Fe) et la mobilité des oligo-éléments.
- Santé des plantes : un rH2 stable dans la zone homéostatique + une forte capacité = nutrition régulière + suppression des pathogènes aux extrêmes.
Implications
- Monitorer uniquement l'Eh sans le pH ni la capacité = vision partielle.
- Le rH2 est un indicateur précieux pour un usage ACS — son statut de « meilleur » indicateur universel restant débattu (l'échelle rH de Clark est critiquée depuis les années 1930 : stœchiométrie 1e⁻/1H⁺ non universelle).
- Cf redox central, redox ladder, biostimulation indigène KNF/JADAM et redox.
Cards en dialogue (14)
- Approfondi par
- Voir aussi (12)
-
- MO–argile → transition stœchiométrique → stratégies microbiennes
- Biostimulation indigène KNF/JADAM et thermodynamique redox
- Eh terrain : sondes redox, gradient mV/cm et méthode in situ
- Profil sol hydromorphe/organique : redox bas, émissions, gestion de l'eau centrale
- Archées : troisième domaine écologiquement distinct dans le sol
- Bactéries ferro-réductrices : Geobacter, Shewanella et la respiration dissimilatoire du fer
- Couplages biogéochimiques Fe-P-S-N sous alternance redox : vivianite, NDFO et gouvernance des nutriments
- Diagnostic plante : pH et EC de sève foliaire/pétiolaire comme signatures nutritionnelles précoces
- PNSB (Purple Non-Sulfur Bacteria) : Rhodopseudomonas et la biofertilisation photosynthétique multi-fonctionnelle
- Mémoire redox et noyaux de réduction persistants : la dimension temporelle des microzones anoxiques
- Calibration régionale du diagnostic de santé du sol : SMAF/CASH/SHAPE et groupes de pairs
- La MOS comme géo-batterie : le carbone, stock d'électrons
Cascade biophysique : N0 Eau → N5 Plante saine (colonne vertébrale du corpus)
C'est l'image centrale.
En bas, l'eau. Puis la structure physique, qui offre des abris ; puis la chimie, qui règle l'énergie des réactions ; puis la matière organique et la plante, qui nourrissent ; puis le microbiome, qui s'installe pleinement ; enfin, tout en haut, la plante saine, résultat des cinq marches.
La règle : un problème sur une marche signale le plus souvent un problème plus bas. — un pathogène ou un accident climatique peut aussi frapper la plante directement, sans défaut des marches du dessous. On ne soigne pas un symptôme sans redescendre l'escalier. Chaque niveau reprend, à sa propre échelle, cette même architecture.
Illustration : Fig. card 77-A · Cascade biophysique — N0 Eau → N5 Plante saine (colonne vertébrale du corpus)…
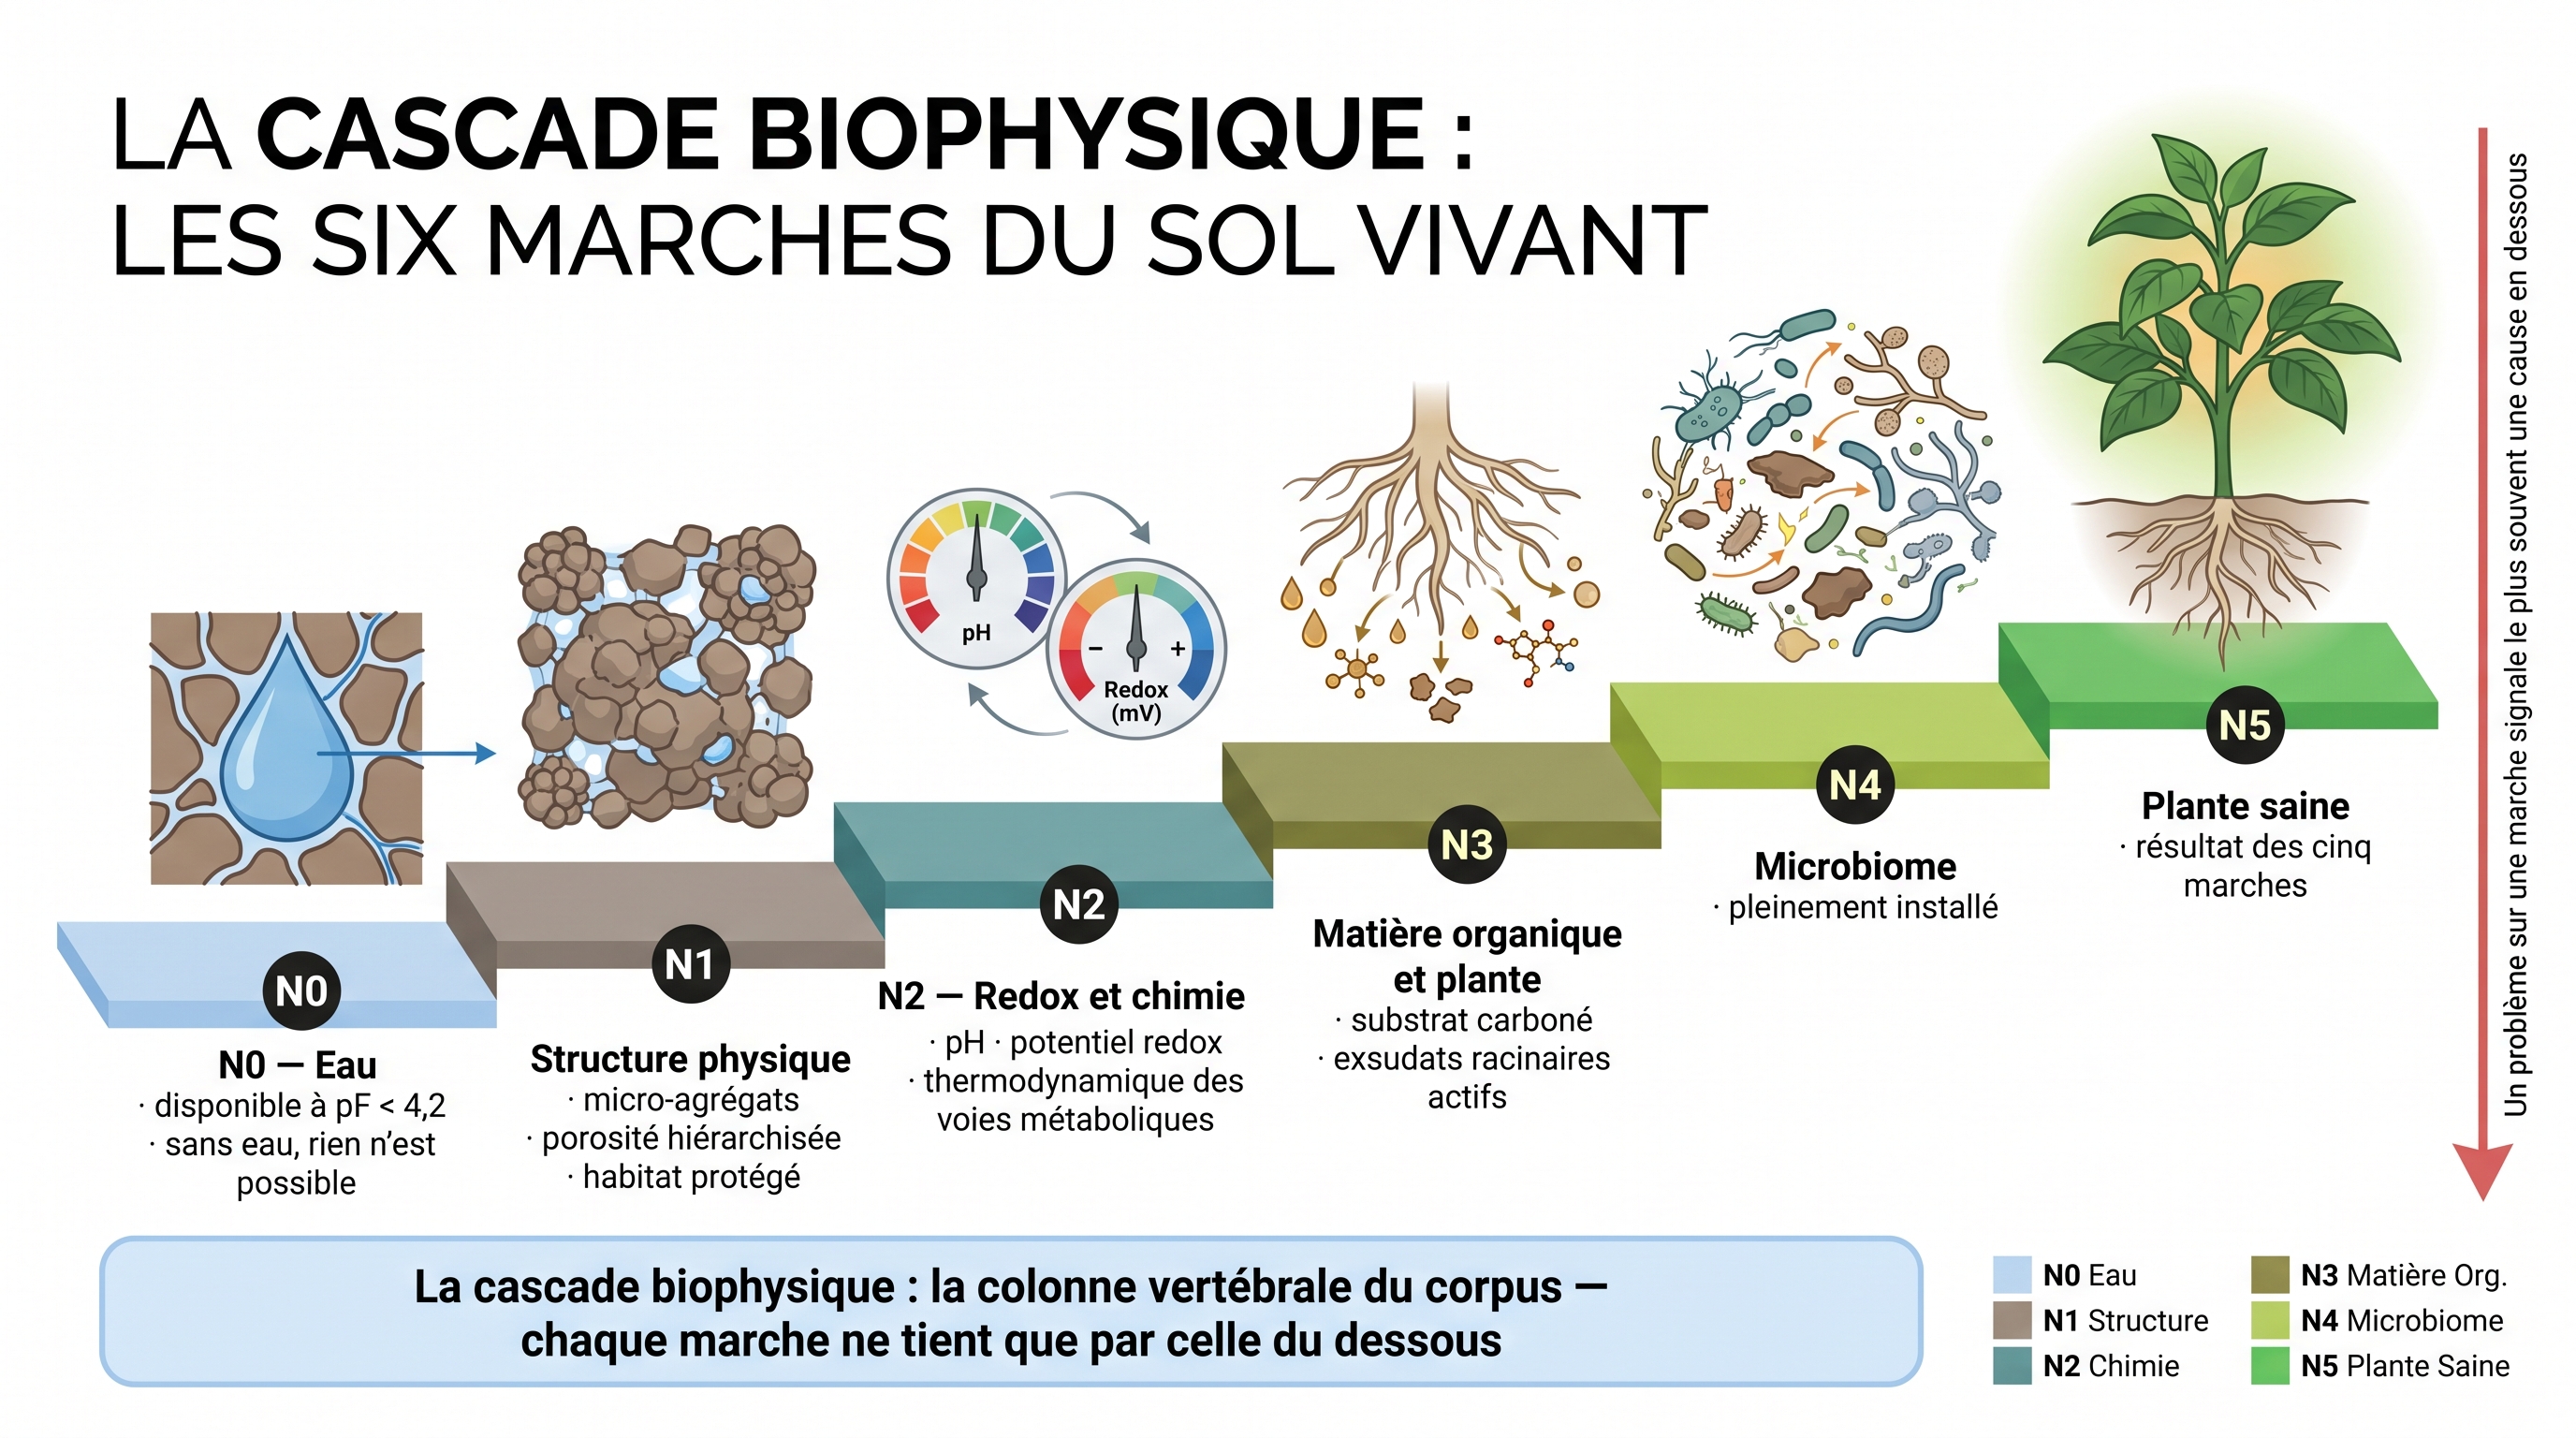
Science
La cascade biophysique est la notion maîtresse du Sol Vivant, la colonne vertébrale qui ordonne verticalement les prérequis du vivant du sol.
Niveaux
- N0 — Eau : disponible à pF < 4,2. Sans eau, rien n'est possible.
- N1 — Structure physique : micro-agrégats, porosité hiérarchisée, habitat protégé.
- N2 — Redox & Chimie : pH, Eh, thermodynamique des voies métaboliques.
- N3 — MO & Plante : substrat carboné + exsudats racinaires actifs.
- N4 — Microbiome : pleinement installé si N0-N3 satisfaits (des communautés pionnières s'établissent en conditions sub-optimales, mais rudimentaires).
- N5 — Plante saine : résultat global des 5 niveaux précédents.
Règle absolue
Une défaillance à un niveau est le plus souvent le signal d'une défaillance à un niveau antérieur (les stress biotiques directs — pathogènes, accidents climatiques aigus — pouvant frapper N5 sans défaillance amont). Jamais traiter un symptôme sans remonter la cascade.
Fractalité
Chaque niveau de cette cascade est isomorphe, à son échelle (diagnostic terrain, pratique, mécanisme, stratégie écologique K/r).
Cards en dialogue (5)
- Donne naissance à
- Voir aussi (4)
-
- Cascade temporelle : T0 instantané → T5 géologique (à quelle échelle ça se joue)
- Cascade des coûts cachés : €0 direct → €5 civilisationnel (qui paye, et quand)
- Cascade des conséquences : E0 parcelle → E5 planétaire (jusqu'où ça ricoche)
- Couplages biogéochimiques Fe-P-S-N sous alternance redox : vivianite, NDFO et gouvernance des nutriments
Cascade temporelle : T0 instantané → T5 géologique (à quelle échelle ça se joue)
À court terme, quelques jours à quelques semaines, on observe les effets immédiats : amorçage de la décomposition, fermentation, activité des enzymes. Viennent ensuite l'échelle de la saison — minéralisation, croissance de la culture — puis l'année, avec la rotation et le couvert. Suivent les horizons lents : la décennie, qui stabilise la matière organique, le siècle, qui forme le sol, et le temps géologique. La règle : intervenir à court terme est réversible ; dès la décennie, l'effet devient lentement réversible à l'échelle d'une vie.
Science
Cascade sœur de la cascade biophysique sur l'axe du temps. Elle répond à la question : « à quelle échelle temporelle l'effet observé ou recherché se joue-t-il ? »
Niveaux
- T0 — Instantané (jour, semaine) : effet d'amorçage, fermentation, activité enzymatique.
- T1 — Saisonnier (mois) : minéralisation, cycle cultural, croissance végétale.
- T2 — Annuel : rotation, couvert, bilan k₁/k₂ (Hénin-Dupuis, 1945).
- T3 — Décennal (10-30 ans) : stabilisation organo-minérale (MAOM, voie nécromasse), succession microbienne.
- T4 — Séculaire (100-500 ans) : pédogenèse, forêts matures, effet cumulé de pratiques.
- T5 — Géologique (millénaires+) : tectonique, évolution, climat de fond.
Règle
Intervenir à T0-T1 est réversible. À partir de T3, l'effet devient lentement réversible à l'échelle humaine. Une même pratique donne des bilans très différents selon l'horizon où on la lit.
Cards en dialogue (5)
- Voir aussi (5)
-
- Cascade des coûts cachés : €0 direct → €5 civilisationnel (qui paye, et quand)
- Cascade des conséquences : E0 parcelle → E5 planétaire (jusqu'où ça ricoche)
- Temporalité, irréversibilités et entropie des pratiques humaines
- Cascade biophysique : N0 Eau → N5 Plante saine (colonne vertébrale du corpus)
- Pédogenèse et CLORPT : les cinq facteurs de formation des sols
Cascade des coûts cachés : €0 direct → €5 civilisationnel (qui paye, et quand)
Derrière, une cascade de coûts s'empile en silence, et quelqu'un finit toujours par la payer.
Tout commence par le coût direct (intrants, carburant, main-d'œuvre) et son usure différée (un sol qu'on épuise). Viennent ensuite les coûts pour la santé — dont certains effets chroniques restent débattus —, puis l'environnement (eau, air, climat), le social (filières, emplois), et enfin notre résilience alimentaire et notre indépendance.
La règle est simple : ce qui est sur la facture est payé ; ce qui en est absent est déplacé vers la collectivité. Une politique qui ne compte que les premières lignes refile mécaniquement le reste aux générations suivantes.
Science
Cascade sœur sur l'axe économique et systémique. Elle répond à la question : « qui paye le vrai coût d'une pratique, et à quel horizon ? »
Niveaux
- €0 — Direct immédiat : intrants, main-d'œuvre, carburant, semences.
- €1 — Différé exploitation : usure du capital sol, dépendance aux intrants.
- €2 — Santé : humaine, animale, pollinisateurs (résidus pesticides, nitrates eau — effets aigus documentés, effets chroniques aux doses réglementaires débattus : controverse d'expertise autour du glyphosate).
- €3 — Environnemental : eau, air, biodiversité, climat (eutrophisation, GES, érosion).
- €4 — Social : filière, emploi, transmission savoir (concentration, dépossession).
- €5 — Civilisationnel : résilience alimentaire, dépendance géopolitique.
Règle
Les €0 sont visibles sur facture ; les €3-€5 sont externalisés. Le prix du marché ne dit pas le coût réel (externalités non internalisées). Une politique agricole qui n'internalise que €0-€1 déplace mécaniquement les autres vers le collectif.
Cards en dialogue (13)
- Approfondi par
- Voir aussi (11)
-
- Cascade des conséquences : E0 parcelle → E5 planétaire (jusqu'où ça ricoche)
- Coût réel de l'énergie fossile et 'esclaves énergétiques'
- Cascade biophysique : N0 Eau → N5 Plante saine (colonne vertébrale du corpus)
- Cascade temporelle : T0 instantané → T5 géologique (à quelle échelle ça se joue)
- Cycle 5 étapes d'érosion civilisationnelle (200-2000 ans)
- MRV crédits carbone biominéraux : certification de la séquestration C inorganique pérenne
- Modèle brésilien FBN soja : enseignements et limites d'une transition continentale réussie ET ambivalente
- Souveraineté azote-fertilisation : l'autonomie nationale face à la dépendance Haber-Bosch
- Autonomie et low-tech : réduire la dépendance aux intrants et technologies externes
- Métabolisme sociétal : régimes minier vs circulaire
- Eutrophisation et zones mortes : du double effet azote-phosphore à l'hypoxie
Cascade des conséquences : E0 parcelle → E5 planétaire (jusqu'où ça ricoche)
Tout part de ce qui se voit : la parcelle, son rendement, ses racines. Puis les effets s'élargissent en cercles — la ferme et son bassin versant, la chaîne alimentaire, la santé humaine, la société, et enfin le climat et la biosphère entière.
Des enchaînements causaux relient ces cercles entre eux — par exemple du couvert végétal d'un champ jusqu'à l'immunité de notre intestin. Ce sont des enchaînements plausibles, non des preuves bout à bout : l'échelle sert à voir les liens, pas à les durcir.
Science
Cascade sœur sur l'axe des conséquences et implications. Elle répond à la question : « jusqu'où les effets d'une pratique se propagent-ils, directs et indirects ? »
Niveaux
- E0 — Direct observable : parcelle — rendement, vigueur, profondeur racines.
- E1 — Écosystémique local : ferme, bassin versant — faune, hydrologie, microbiome sol.
- E2 — Chaîne alimentaire : qualité nutritionnelle, mycotoxines, composés secondaires.
- E3 — Santé humaine : microbiome intestinal, résistance antimicrobienne.
- E4 — Sociétal : coûts santé publique, filières, politiques agricoles.
- E5 — Planétaire : climat, biodiversité, résilience biosphère.
Règle
Des enchaînements causaux traversent précisément cette cascade : de E0 (photosynthèse du couvert) à E3 (immunité intestinale humaine), un lien plausible (One Health), non une causalité démontrée bout à bout. La compartimentation des enjeux (agriculture / santé / environnement) ignore cette cascade.
Cards en dialogue (6)
- Voir aussi (6)
-
- Cascade biophysique : N0 Eau → N5 Plante saine (colonne vertébrale du corpus)
- Cascade temporelle : T0 instantané → T5 géologique (à quelle échelle ça se joue)
- Cascade des coûts cachés : €0 direct → €5 civilisationnel (qui paye, et quand)
- Triangle des maladies végétales × extrêmes climatiques : cadre diagnostique renouvelé
- Mycobiome intestinal et axe gut-brain fongique : le 3ᵉ domaine oublié de la santé humaine
- Modèle brésilien FBN soja : enseignements et limites d'une transition continentale réussie ET ambivalente
Archées : troisième domaine écologiquement distinct dans le sol
Elles forment un groupe du vivant aussi ancien que les bactéries, mais sous-estimé car les analyses courantes visent ces dernières. Deux lignées comptent : l'une oxyde l'ammoniac dans les sols pauvres et acides, l'autre produit du méthane sans oxygène, comme dans les rizières ; une troisième, préférant la chaleur, est marginale sous nos climats. Leur intérêt est diagnostique : leur rapport avec les oxydants bactériens révèle le régime de fertilité, et les producteurs de méthane signalent un sol durablement privé d'air. En agriculture régénérative, à faible apport d'azote, ces archées prennent le relais : il faut changer de grille.
Science
Les Archées forment le 3ᵉ domaine du vivant, distinct des Bacteria et des Eukarya (Woese 1977). Dans les sols, elles sont systématiquement sous-évaluées par les méthodes microbiennes standard, calibrées sur les bactéries. Deux lignées dominent en pédologie, une troisième étant marginale en sols tempérés :
- Thaumarchaeota : AOA, nitrification des sols oligotrophes et acides (amoA archéen) ;
- Euryarchaeota : méthanogènes en anaérobiose stricte (rizières, tourbes, intestins) ;
- Crenarchaeota sensu stricto — essentiellement thermophiles, faiblement représentés en sols tempérés (les « créarchéotes » mésophiles du sol ont été reclassés en Thaumarchaeota — Brochier-Armanet et al. 2008).
Rôle diagnostique : le ratio AOA/AOB révèle le régime de fertilité ; la présence de méthanogènes signale une anaérobiose persistante. Implication : en systèmes régénératifs à faible pression azotée, les AOA prennent le relais des AOB pour la nitrification — il faut changer la grille d'analyse microbienne.
Cards en dialogue (12)
- Approfondit
- Approfondi par
- Voir aussi (9)
-
- Redox central : gradients, microzones et 'redox ladder'
- Profil sol hydromorphe/organique : redox bas, émissions, gestion de l'eau centrale
- Azote (formes, pertes) → stœchiométrie → stratégies microbiennes
- Cycle de l'azote : fixation, minéralisation, nitrification, pertes
- Continuum sol-plante-humain : le fil rouge du corpus
- rH2, capacité redox et poising capacity : au-delà de l'Eh ponctuel
- Voies aérobie (cob) et anaérobie (cbi) de biosynthèse de la vitamine B12 : architecture évolutive divergente
- Bactéries ferro-réductrices : Geobacter, Shewanella et la respiration dissimilatoire du fer
- Couplages biogéochimiques Fe-P-S-N sous alternance redox : vivianite, NDFO et gouvernance des nutriments
Biochar : architecte de sol (habitat, CEC, C stable)
La température de fabrication arbitre tout : chauffé doux, il retient mieux les nutriments ; chauffé fort, il devient un carbone quasi éternel. On choisit selon l'objectif.
Les sols noirs d'Amazonie, enrichis de charbon pendant des siècles, restent fertiles aujourd'hui : la preuve que l'effet s'accumule sur la très longue durée.
Science
Le biochar est un matériau carboné poreux issu de la pyrolyse de biomasse en conditions pauvres en oxygène ; sa haute surface spécifique et ses groupes fonctionnels abondants en font un matériau multifonctionnel : stockage de carbone, fertilité, sorption des polluants, habitat microbien (Bolan et al., 2021). Ses propriétés physico-chimiques sont gouvernées par le choix de la matière première, de la température et du type de pyrolyse (Ippolito et al., 2020), qui arbitrent entre trois fonctions :
- habitat microbien : porosité et surface spécifique élevées offrant niches et support aux micro-organismes (Bolan et al., 2021) ;
- CEC : portée par ses groupes fonctionnels abondants (Bolan et al., 2021), modulés par la température de pyrolyse (Ippolito et al., 2020) ;
- séquestration du carbone : à haute température (Ippolito et al., 2020), condensation en structures polyaromatiques stables (Schmidt et al., 2025).
La stabilité du carbone s'inscrit dans la très longue durée : temps de résidence moyens supérieurs à 1000 ans, la persistance dépendant des propriétés du matériau comme des facteurs environnementaux (Schmidt et al., 2025). Des biochars centenaires présents en sous-sol contribuent au stockage et à la stabilisation du carbone profond, le turnover du carbone décroissant en profondeur (Fouché et al., 2023). Les systèmes industriels biochar sont fortement carbon-négatifs, avec une séquestration estimée entre 0,3 et 2 Gt CO₂/an à l'horizon 2050 (Fawzy et al., 2021).
Cards en dialogue (16)
- Approfondi par
- Voir aussi (13)
-
- Histoire des sols : désastres et réussites (Croissant fertile, Nil, Terra Preta, Milpa)
- Profil sol sableux : plafond MAOM bas, marge structurale maximale, métastabilité biologique
- Cycle du carbone : de la photosynthèse à la MAOM
- Glomaline : glycoprotéine fongique et stockage C profond
- Bascule paradigme microzones anoxiques : demande biologique vs géométrie de l'agrégat
- Paradoxe du ruissellement en ACS : accumulation surface vs matrice diluée
- Microorganismes prédateurs indigènes (IPMO) : la capture ciblée par appât insecte
- PNSB (Purple Non-Sulfur Bacteria) : Rhodopseudomonas et la biofertilisation photosynthétique multi-fonctionnelle
- Enhanced Rock Weathering (ERW) : altération minérale accélérée
- Agroforesterie biominérale tropicale : design des systèmes oxalogènes pour séquestration C pérenne
- Soufre : co-limitation N:S, acides aminés soufrés et antagonisme S-Se : pendant S du continuum sol-aliment-santé
- Adsorption
- Microbiome du sol
Éliciteurs biologiques exogènes : chitosane et oligogalacturonides (priming PTI/SAR)
Le chitosane, tiré de carapaces de crustacés, imite la chitine des champignons ; des fragments de pectine signalent une blessure ; la laminarine des algues brunes arme contre certains parasites. La plante « pré-arme » ses défenses sans se fatiguer en permanence.
L'effet est ponctuel, à renouveler — contrairement aux champignons qui colonisent durablement. Combiné aux couverts et aux rotations, cela construit une protection intégrée sans pesticide.
Science
Les éliciteurs exogènes sont des molécules biologiques qui déclenchent l'immunité végétale sans pathogène réel. Trois familles :
- chitosane (dérivé de chitine de crustacés/champignons) — MAMP mimétique ; sa reconnaissance par les récepteurs canoniques de la chitine CERK1/LYK5 est débattue (effets membranaires et ROS propres), et la séquence PTI→SAR est mieux établie pour la chitine ;
- oligogalacturonides (fragments de pectine) — DAMP endogène ;
- laminarine (β-glucane d'algues brunes) — défenses contre les pathogènes nécrotrophes.
Mécanisme : un priming immunitaire — la plante « pré-arme » ses voies de l'acide salicylique (SA) et du jasmonate (JA) sans surcoût énergétique permanent. Action ponctuelle, à renouveler (contrairement aux champignons entomopathogènes qui colonisent durablement). Combinable avec couverts et rotations pour une protection intégrée sans pesticide.
Cards en dialogue (18)
- Voir aussi (17)
-
- CEP : double identité entomopathogène/endophyte et CBC
- Continuum sol-plante-humain : le fil rouge du corpus
- Redondance fonctionnelle et résilience coévolutive (H5/DP4)
- Mémoire transgénérationnelle plante-microbiome
- Quorum sensing dans la rhizosphère : communication bactérienne, perception végétale, biofilms
- Extraits d'algues marines : phycocolloïdes, bétaïnes et mimétiques phytohormonaux
- Strigolactones : signal à triple fonction (architecture, mycorhize, parasitisme)
- Chélation organique et biostimulation foliaire : acides aminés, hydrolysats et mobilité des oligoéléments
- Triangle des maladies végétales × extrêmes climatiques : cadre diagnostique renouvelé
- Mycobiome intestinal et axe gut-brain fongique : le 3ᵉ domaine oublié de la santé humaine
- Gestion systémique des nématodes à galles : rotations, cultures-pièges et régulation trophique
- Lutte intégrée bio-mimétique 4 piliers : cadre stratégique unifié pour la gestion des bioagresseurs
- Code des histones et marques permissives/répressives : architecture épigénétique de la mémoire immunitaire végétale
- Biostimulants microbiens vs non-microbiens : cadre fonctionnel de la biostimulation
- Biofumigation : glucosinolates des Brassica → isothiocyanates, suppression des bioagresseurs telluriques
- Crosstalk JA-SA : le dispatcher hormonal de la défense végétale
- Priming immunitaire végétal : opérateur cellulaire commun aux voies endogène (rhizosphère/ISR) et exogène (éliciteurs/PTI-SAR)
Extraits d'algues marines : phycocolloïdes, bétaïnes et mimétiques phytohormonaux
Leurs effets sont multiples : mieux germer, s'enraciner plus profond, tenir la sécheresse, le sel et le froid, et produire des fruits plus sucrés et qui se gardent mieux.
Les teneurs en hormones sont faibles ; une bonne part de l'effet vient des autres composants, notamment les bétaïnes qui protègent les cellules en stress hydrique. C'est un biostimulant parmi les plus étudiés.
Science
Les extraits d'algues marines (Ascophyllum nodosum, Ecklonia maxima, Ulva lactuca, Laminaria spp.) comptent parmi les biostimulants les plus étudiés. Principes actifs multiples :
- phycocolloïdes (alginates, laminarine, fucoïdane) — rétention d'eau et élicitation des défenses ; les carraghénanes, polysaccharides sulfatés, sont propres aux algues rouges (Rhodophyta), absentes de cette liste ;
- mimétiques phytohormonaux : teneurs mesurables mais faibles en auxines (IAA), cytokinines (zéatine), gibbérellines, ABA — une partie des effets étant attribuée aux autres composés (bétaïnes, polysaccharides) ;
- bétaïnes (glycine-bétaïne) — osmoprotecteurs majeurs en stress hydrique ou salin ;
- oligoéléments chélatés (Fe, Zn, Mo) biodisponibles.
Effets : stimulation de la germination et de l'enracinement, résistance aux stress abiotiques (sec, salin, froid), amélioration de la qualité des fruits (°Brix, conservation). Ulva et Ascophyllum dominent le marché européen en agriculture régénérative.
Cards en dialogue (13)
- Approfondit
- Voir aussi (9)
-
- Biostimulation indigène KNF/JADAM et thermodynamique redox
- Couverts végétaux : design, biomasse et services rendus
- Co-inoculation Bradyrhizobium + Azospirillum : synergie physiologique au-delà de la FBN
- PNSB (Purple Non-Sulfur Bacteria) : Rhodopseudomonas et la biofertilisation photosynthétique multi-fonctionnelle
- Éliciteurs biologiques exogènes : chitosane et oligogalacturonides (priming PTI/SAR)
- Cycle du potassium : minéraux primaires, KSB et biodisponibilité dans les sols vivants
- Strigolactones : signal à triple fonction (architecture, mycorhize, parasitisme)
- Chélation organique et biostimulation foliaire : acides aminés, hydrolysats et mobilité des oligoéléments
- Le marché de la résilience : produits miracles, gourous du sans-arrosage et promesse sans preuve
Bactéries ferro-réductrices : Geobacter, Shewanella et la respiration dissimilatoire du fer
Sans oxygène ni nitrate, ces bactéries utilisent le fer pour oxyder la matière organique — un rôle central longtemps sous-estimé. Elles ont développé des astuces pour transférer leurs électrons hors de la cellule : des protéines à la surface, des filaments conducteurs — dont la nature exacte reste débattue —, ou des molécules navettes qui transportent les électrons à distance. Conséquences concrètes : en présence de fer, le carbone est dégradé sans produire de méthane ; et ces mécanismes laissent des traces dans le sol, comme les taches rouille ou gris-bleu des horizons gorgés d'eau. Ils servent aussi à dépolluer certains sols contaminés.
Science
Les bactéries ferro-réductrices (IRB/DIRB — surtout Geobacter, Shewanella, Geothrix) utilisent le Fe(III) comme accepteur d'électrons terminal en anaérobiose, oxydant la matière organique sans O₂ ni NO₃⁻ (le sulfate, souvent encore présent, n'est réduit qu'après le Fe(III) dans la séquence thermodynamique — certains Geobacter pouvant néanmoins le réduire) — un rôle central longtemps sous-estimé.
Transfert d'électrons extracellulaire (TEE) :
- cytochromes c multi-hèmes (MtrCAB chez Shewanella, OmcS/OmcZ chez Geobacter) en surface cellulaire ;
- pili conducteurs (« nanowires » de Geobacter) transportant les électrons à distance — la nature exacte et la portée de cette conductivité (protéine vs filaments de cytochromes) restent débattues ;
- navettes redox solubles (substances organiques, AQDS, riboflavine).
Implications : cycle du carbone anaérobie sans méthanogenèse en présence de Fe(III) (compétition thermodynamique avec les méthanogènes) ; signatures pédologiques (gleyfication, concrétions ferro-manganiques, horizons rédoximorphes) ; bioremédiation (réduction de Cr(VI), U(VI), hydrocarbures couplée au Fe(III)) ; convergence fonctionnelle avec les cable bacteria (Desulfobulbaceae), qui transfèrent des électrons sur 1-3 cm par un mécanisme distinct (fibres conductrices périplasmiques partagées, non pili).
Cards en dialogue (15)
- Approfondit
- Approfondi par
- Voir aussi (12)
-
- Asphyxie / anaérobie locale (odeurs, horizons réduits)
- Cycle du carbone : de la photosynthèse à la MAOM
- Continuum sol-plante-humain : le fil rouge du corpus
- rH2, capacité redox et poising capacity : au-delà de l'Eh ponctuel
- Archées : troisième domaine écologiquement distinct dans le sol
- Couplages biogéochimiques Fe-P-S-N sous alternance redox : vivianite, NDFO et gouvernance des nutriments
- Toxicité ferreuse en sols hydromorphes : stress oxydatif, mobilité Cd/As et stratégies AWD
- Films IRIS et imagerie redox 2D : cartographier les microzones réductrices au-delà des électrodes ponctuelles
- Couplage Méthane-Fer-Soufre archéen : oxydation anaérobie du méthane (AOM) et puits CH4 globaux
- Chélation organique et biostimulation foliaire : acides aminés, hydrolysats et mobilité des oligoéléments
- PNSB (Purple Non-Sulfur Bacteria) : Rhodopseudomonas et la biofertilisation photosynthétique multi-fonctionnelle
- Cobalt, vitamine B12 et fixation biologique de l'azote : la chaîne oligoélémentaire oubliée
Cycle du potassium : minéraux primaires, KSB et biodisponibilité dans les sols vivants
Il y existe sous quatre formes : l'immense majorité enfermée dans les minéraux, une part coincée entre les feuillets des argiles, une petite part adsorbée et disponible, et une infime partie dissoute. La clé, en sols vivants, ce sont des bactéries solubilisatrices : par leurs acides, aidées par les racines, elles dissolvent lentement la roche et libèrent le potassium. Le potassium n'est pas un constituant de la matière vivante mais un régulateur d'eau et un activateur d'enzymes, découplé des autres éléments. L'enjeu : réduire la dépendance aux engrais miniers, concentrés dans quelques pays — même si l'efficacité des inoculants reste variable.
Science
Le potassium du sol se répartit en quatre formes en équilibre dynamique :
- K structural : dans les minéraux primaires (feldspath potassique, biotite, muscovite) : 90-98 % du K total, libération géologique lente ;
- K interfeuillets : fixé entre les feuillets d'illite/vermiculite (argiles 2:1), pool tampon mobilisable progressivement ;
- K échangeable : adsorbé sur la CEC des colloïdes, directement biodisponible (< 2 % du total) ;
- K en solution : assimilable par les plantes, fraction instantanée mais minime.
Flux dominant en sols régénératifs : la biolixiviation microbienne par les KSB (Bacillus mucilaginosus, B. edaphicus, Enterobacter, Paenibacillus) mobilise le K structural via des acides organiques (citrique, oxalique), acidification locale et chélation ; les exsudats racinaires accélèrent l'altération des micas.
Spécificité : le K n'est pas un constituant biomoléculaire mais un régulateur osmotique et activateur enzymatique (> 60 enzymes) — sa dynamique est découplée de la stœchiométrie C:N:P:S de Kirkby.
KSB : biofertilisation du potassium
La biofertilisation du potassium (K) est un levier émergent pour réduire la dépendance aux engrais potassiques miniers (extraction de sylvite, carnallite). Le potassium du sol existe sous trois pools opérationnels (le K interfeuillets étant alors fondu dans le structurel — cf. les quatre formes de la section précédente) : (1) K soluble (ions K⁺ en solution, directement assimilable, <1% du total), (2) K échangeable (adsorbé sur les sites d'échange, libérable rapidement, 1-2%), et (3) K structurel (emprisonné dans les minéraux silicatés — feldspaths potassiques, micas, illite — 98% du total).
Les KSB (Potassium Solubilizing Bacteria), principalement des genres Bacillus, Pseudomonas, Paenibacillus et Acidithiobacillus, libèrent le K structurel par deux mécanismes : (1) acidification locale (production d'acides organiques — oxalique, citrique, tartrique — qui protonent les sites d'échange des minéraux), et (2) chélatisation (complexation des cations de structure — Al³⁺ en tête, le Fe n'étant pas un stabilisateur majeur de ces silicates potassiques). Ce processus est le pendant microbiologique de l'altération biologique des silicates.
L'enjeu agronomique est de réduire les apports d'engrais K (dont le gisement mondial est concentré au Canada, Russie, Biélorussie — une dépendance géopolitique). Les KSB peuvent libérer plusieurs dizaines de kg K/ha/an (Etesami et al., 2017 ; Olaniyan et al., 2022) dans les sols riches en minéraux potassiques, suffisants pour couvrir une part significative des exportations culturales. Les inoculants KSB commerciaux existent (ex. Bacillus mucilaginosus) mais leur efficacité est variable selon la minéralogie du sol et la souche — un défi classique de co-inoculation et de coalescence asymétrique.
Cards en dialogue (18)
- Approfondit
- Approfondi par
- Voir aussi (12)
-
- Profil sol argileux : potentiel élevé mais risques redox si enfouissement et excès d'eau
- Structure du sol (agrégats/EPS) → habitats → stabilité/résilience
- Cycle de l'azote : fixation, minéralisation, nitrification, pertes
- Cycle du phosphore : fixation, solubilisation biologique, mycorhizes
- Cycle du carbone : de la photosynthèse à la MAOM
- Extraits d'algues marines : phycocolloïdes, bétaïnes et mimétiques phytohormonaux
- BCSR vs SLAN : doctrine équilibre cationique et limites du système Albrecht
- Diagnostic plante : pH et EC de sève foliaire/pétiolaire comme signatures nutritionnelles précoces
- Cobalt, vitamine B12 et fixation biologique de l'azote : la chaîne oligoélémentaire oubliée
- Magnésium : chlorophylle, antagonisme cationique et déclin cardiovasculaire : pendant Mg du continuum sol-aliment-santé
- Antagonismes et synergies cationiques (Ca-Mg-K-Na) : la doctrine de l'équilibre ionique
- Le saule (Salix), arbre-ressource multi-services
Couplages biogéochimiques Fe-P-S-N sous alternance redox : vivianite, NDFO et gouvernance des nutriments
Tout ce qui arrive au fer se répercute sur les trois autres.
Quand le sol s'aère, le fer verrouille le phosphore ; quand il s'asphyxie, le fer se dissout et libère ce phosphore d'un coup. Certaines bactéries oxydent même le fer dissous en rejetant de l'azote gazeux, d'autres le transforment en minéraux soufrés. En rizière, en zone humide ou en sol drainé, ces bascules s'enchaînent comme une pompe.
Résultat : selon la gestion de l'eau, un même sol peut enrichir fortement sa disponibilité en phosphore ou au contraire la laisser prisonnière. Gérer l'aération et l'humidité, c'est piloter ce carrefour — et recycler les nutriments sans apport extérieur.
Illustration : Fig. card 87-A · Cycle redox Fe comme shuttle P…
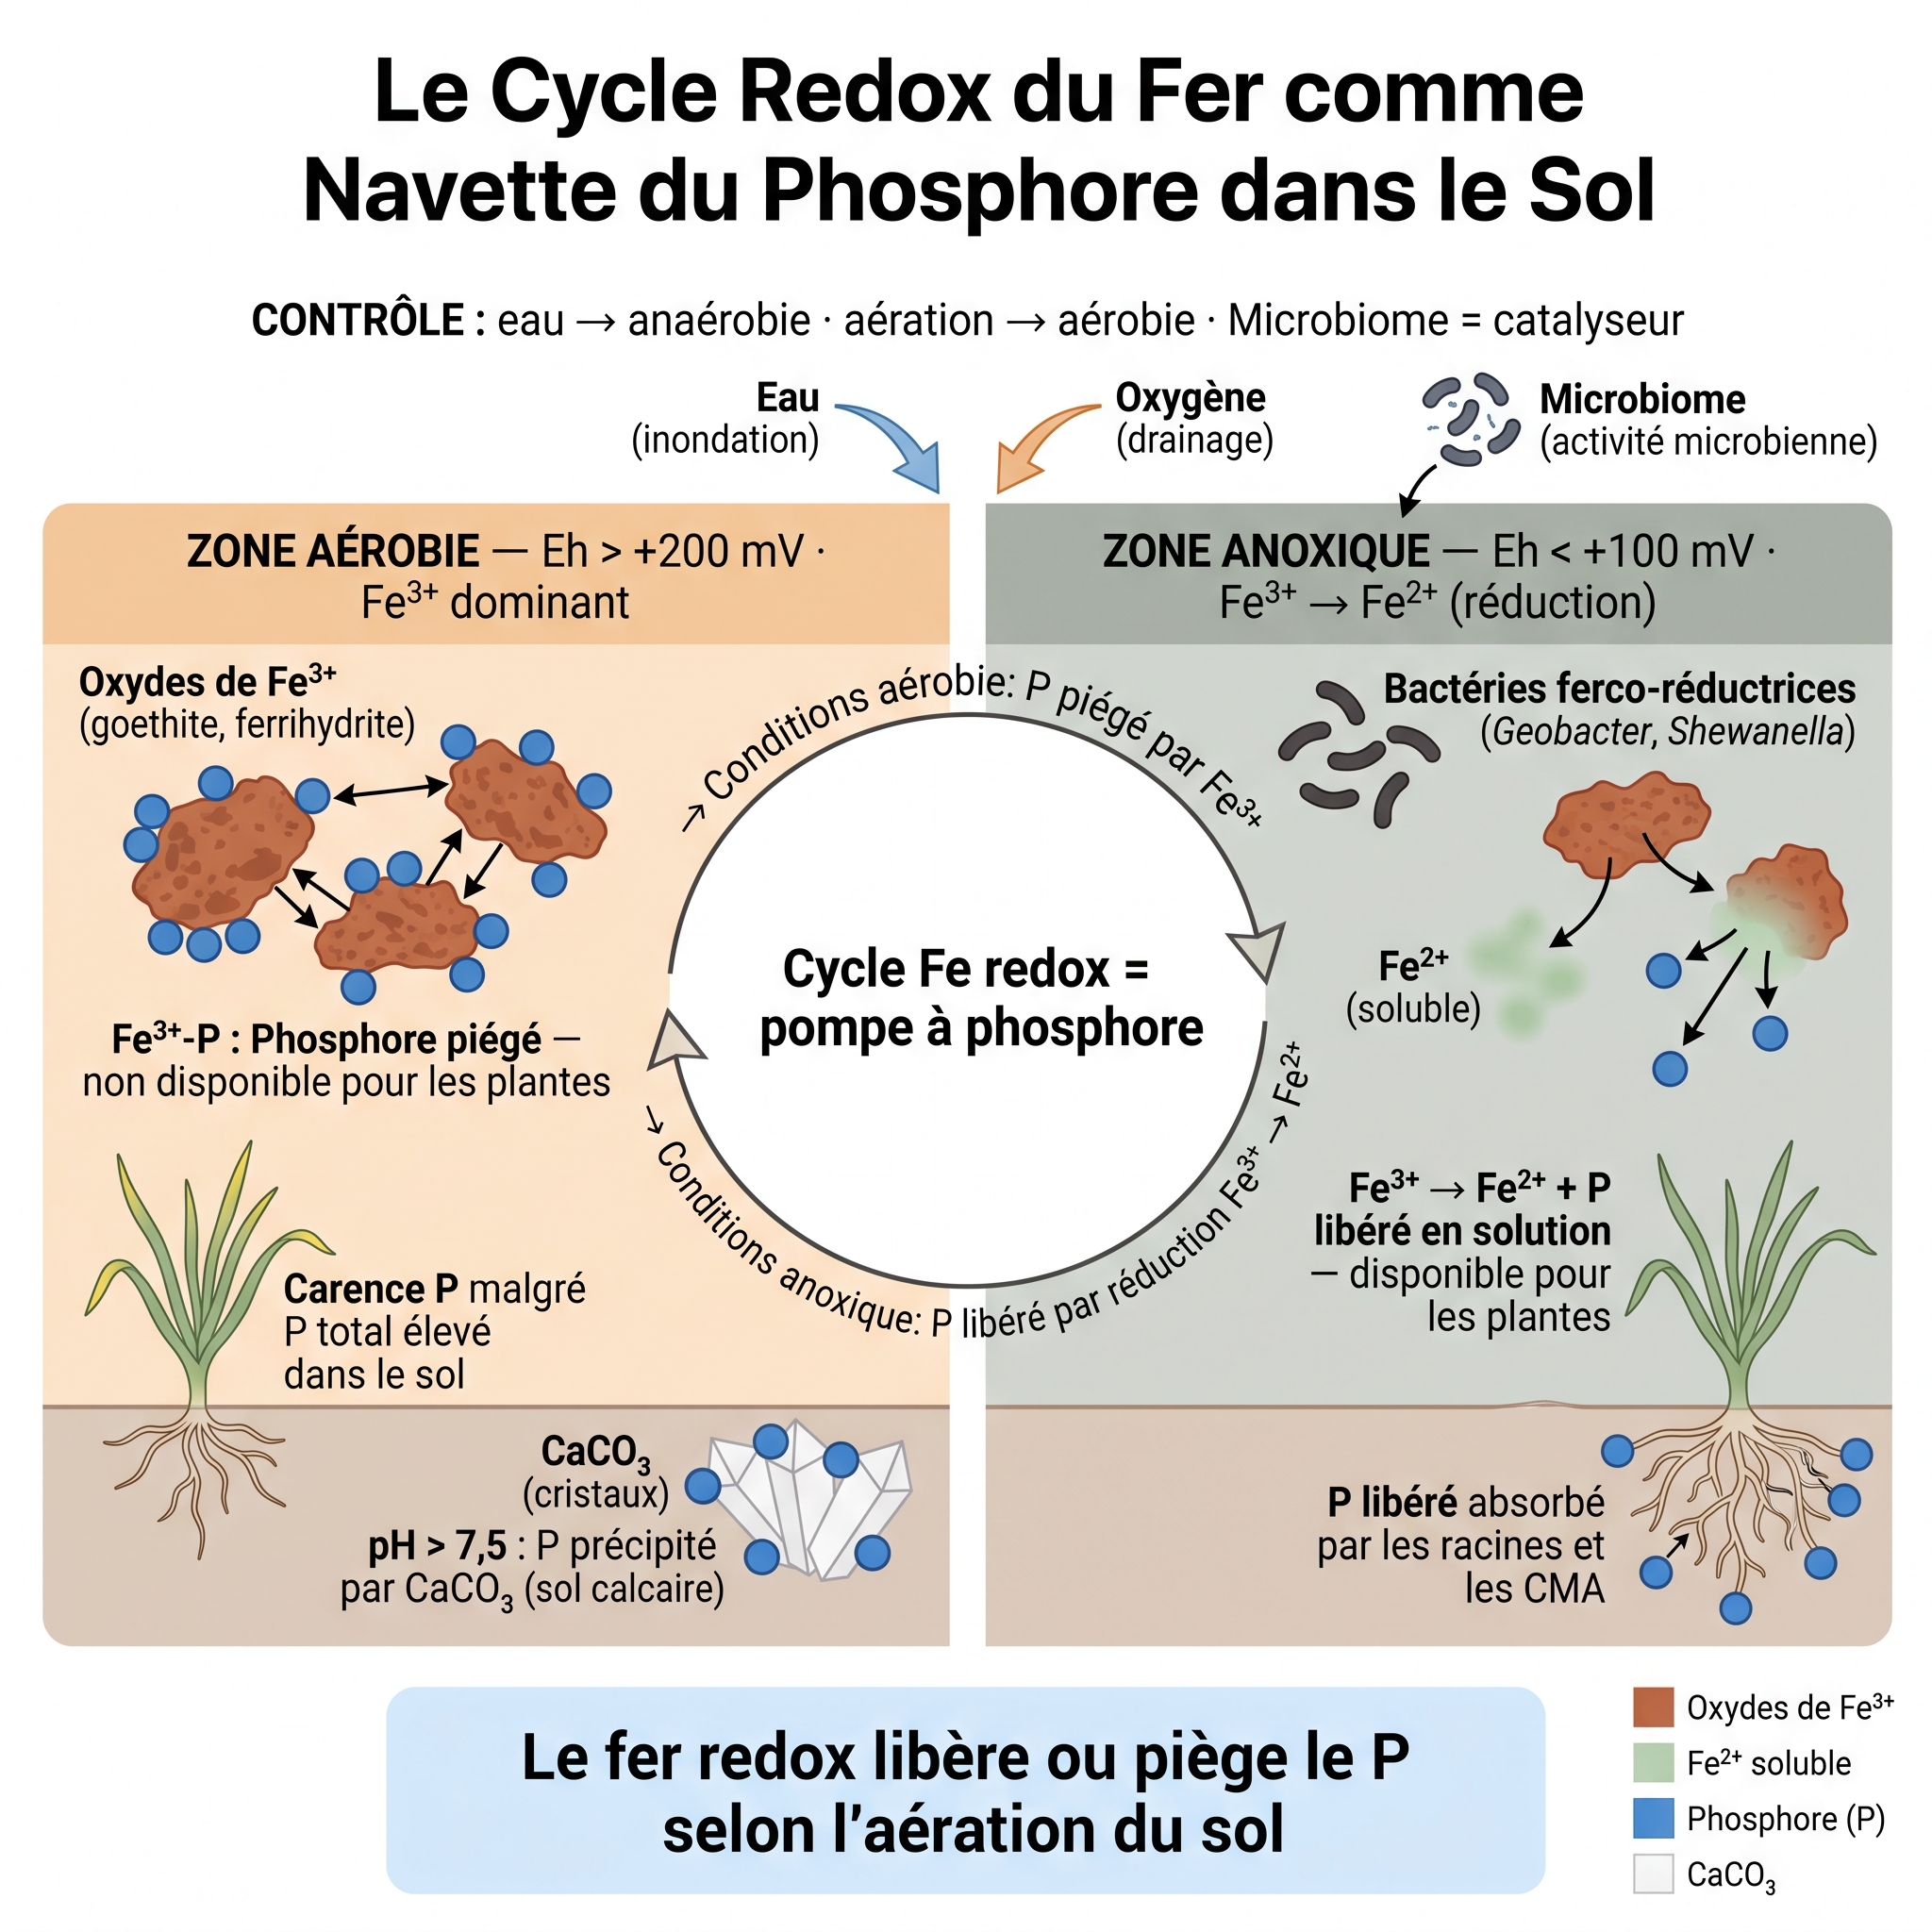
Science
Les cycles C-N-P-S-Fe ne sont pas indépendants : l'alternance redox (humectation/dessiccation, battement de nappe, pratiques hydriques) couple leurs dynamiques, avec le fer comme hub central. Trois couplages majeurs :
- Fe-P : en oxique, le P est adsorbé sur les oxyhydroxydes de Fe(III) ; en anoxique, la ferro-réduction libère Fe(II) et P, qui peuvent précipiter en vivianite (Fe₃(PO₄)₂·8H₂O), pool stable remobilisable par ré-oxydation ;
- N-Fe (NDFO) : en microaérobie, des bactéries oxydent le Fe(II) en couplant à la réduction NO₃⁻ → N₂ (dénitrification alternative, piégeant le Fe en oxyhydroxydes) ;
- S-Fe : en anaérobiose soufreuse, formation de FeS (mackinawite) puis FeS₂ (pyrite), immobilisant S et Fe ; la ré-oxydation relibère SO₄²⁻ et Fe(II).
Mode pompe cyclique : les sols à redox fluctuant (rizières, zones humides saisonnières, ACS, sols drainés) enchaînent ces couplages. Selon le contexte, cela peut fortement accroître la biodisponibilité annuelle du P (jusqu'à la doubler dans certaines rizières ou zones humides — ordre de grandeur conditionnel), stocker S (le N étant au contraire perdu par dénitrification NDFO — sauf la part immobilisée en biomasse), et optimiser la fertilité par recyclage interne (les pertes — dénitrification, lessivage — nécessitant à terme compensation).
Cards en dialogue (21)
- Approfondit
- Approfondi par
- Voir aussi (17)
-
- Stœchiométrie CNPS et modèle AMG
- Cycle de l'azote : fixation, minéralisation, nitrification, pertes
- rH2, capacité redox et poising capacity : au-delà de l'Eh ponctuel
- Cascade biophysique : N0 Eau → N5 Plante saine (colonne vertébrale du corpus)
- Archées : troisième domaine écologiquement distinct dans le sol
- Cobalt, vitamine B12 et fixation biologique de l'azote : la chaîne oligoélémentaire oubliée
- Eh terrain : sondes redox, gradient mV/cm et méthode in situ
- Bactéries ferro-réductrices : Geobacter, Shewanella et la respiration dissimilatoire du fer
- Soil Continuum Model (SCM) : fin du paradigme de l'humification, necromasse microbienne et fractions fonctionnelles MAOM/POM
- Calcaire actif : protocole et interprétation pour sols calcaires
- Toxicité ferreuse en sols hydromorphes : stress oxydatif, mobilité Cd/As et stratégies AWD
- Fenton-like et radicaux hydroxyles dans les sols : oxydation abiotique de la MAOM et flux CO₂ non microbien
- Bascule paradigme microzones anoxiques : demande biologique vs géométrie de l'agrégat
- Triade Fe/Mo/Co pour la nitrogénase : stoechiométrie micronutritionnelle de la fixation biologique de l'azote
- Couplage Méthane-Fer-Soufre archéen : oxydation anaérobie du méthane (AOM) et puits CH4 globaux
- Effet Birch : pulse de minéralisation à la réhumectation des sols secs
- Soufre : co-limitation N:S, acides aminés soufrés et antagonisme S-Se : pendant S du continuum sol-aliment-santé
Strigolactones : signal à triple fonction (architecture, mycorhize, parasitisme)
Ces hormones, les strigolactones, ont une triple fonction : dans la plante, elles règlent l'architecture (moins de ramifications, plus de racines) ; dans le sol, à doses infimes, elles font ramifier les filaments des champignons mycorhiziens. Mais des plantes parasites, comme les strigas qui ravagent les céréales en Afrique, détournent ce signal pour germer au contact de leur victime. Le manque de phosphore pousse la plante à en émettre davantage, renforçant le recrutement des champignons ; l'engrais phosphaté casse cette boucle. On peut s'appuyer sur cette chimie pour favoriser la symbiose ou piéger les parasites.
Illustration : Fig. card 88-A · Strigolactones : signal à triple fonction (architecture, mycorhize, parasitisme)…
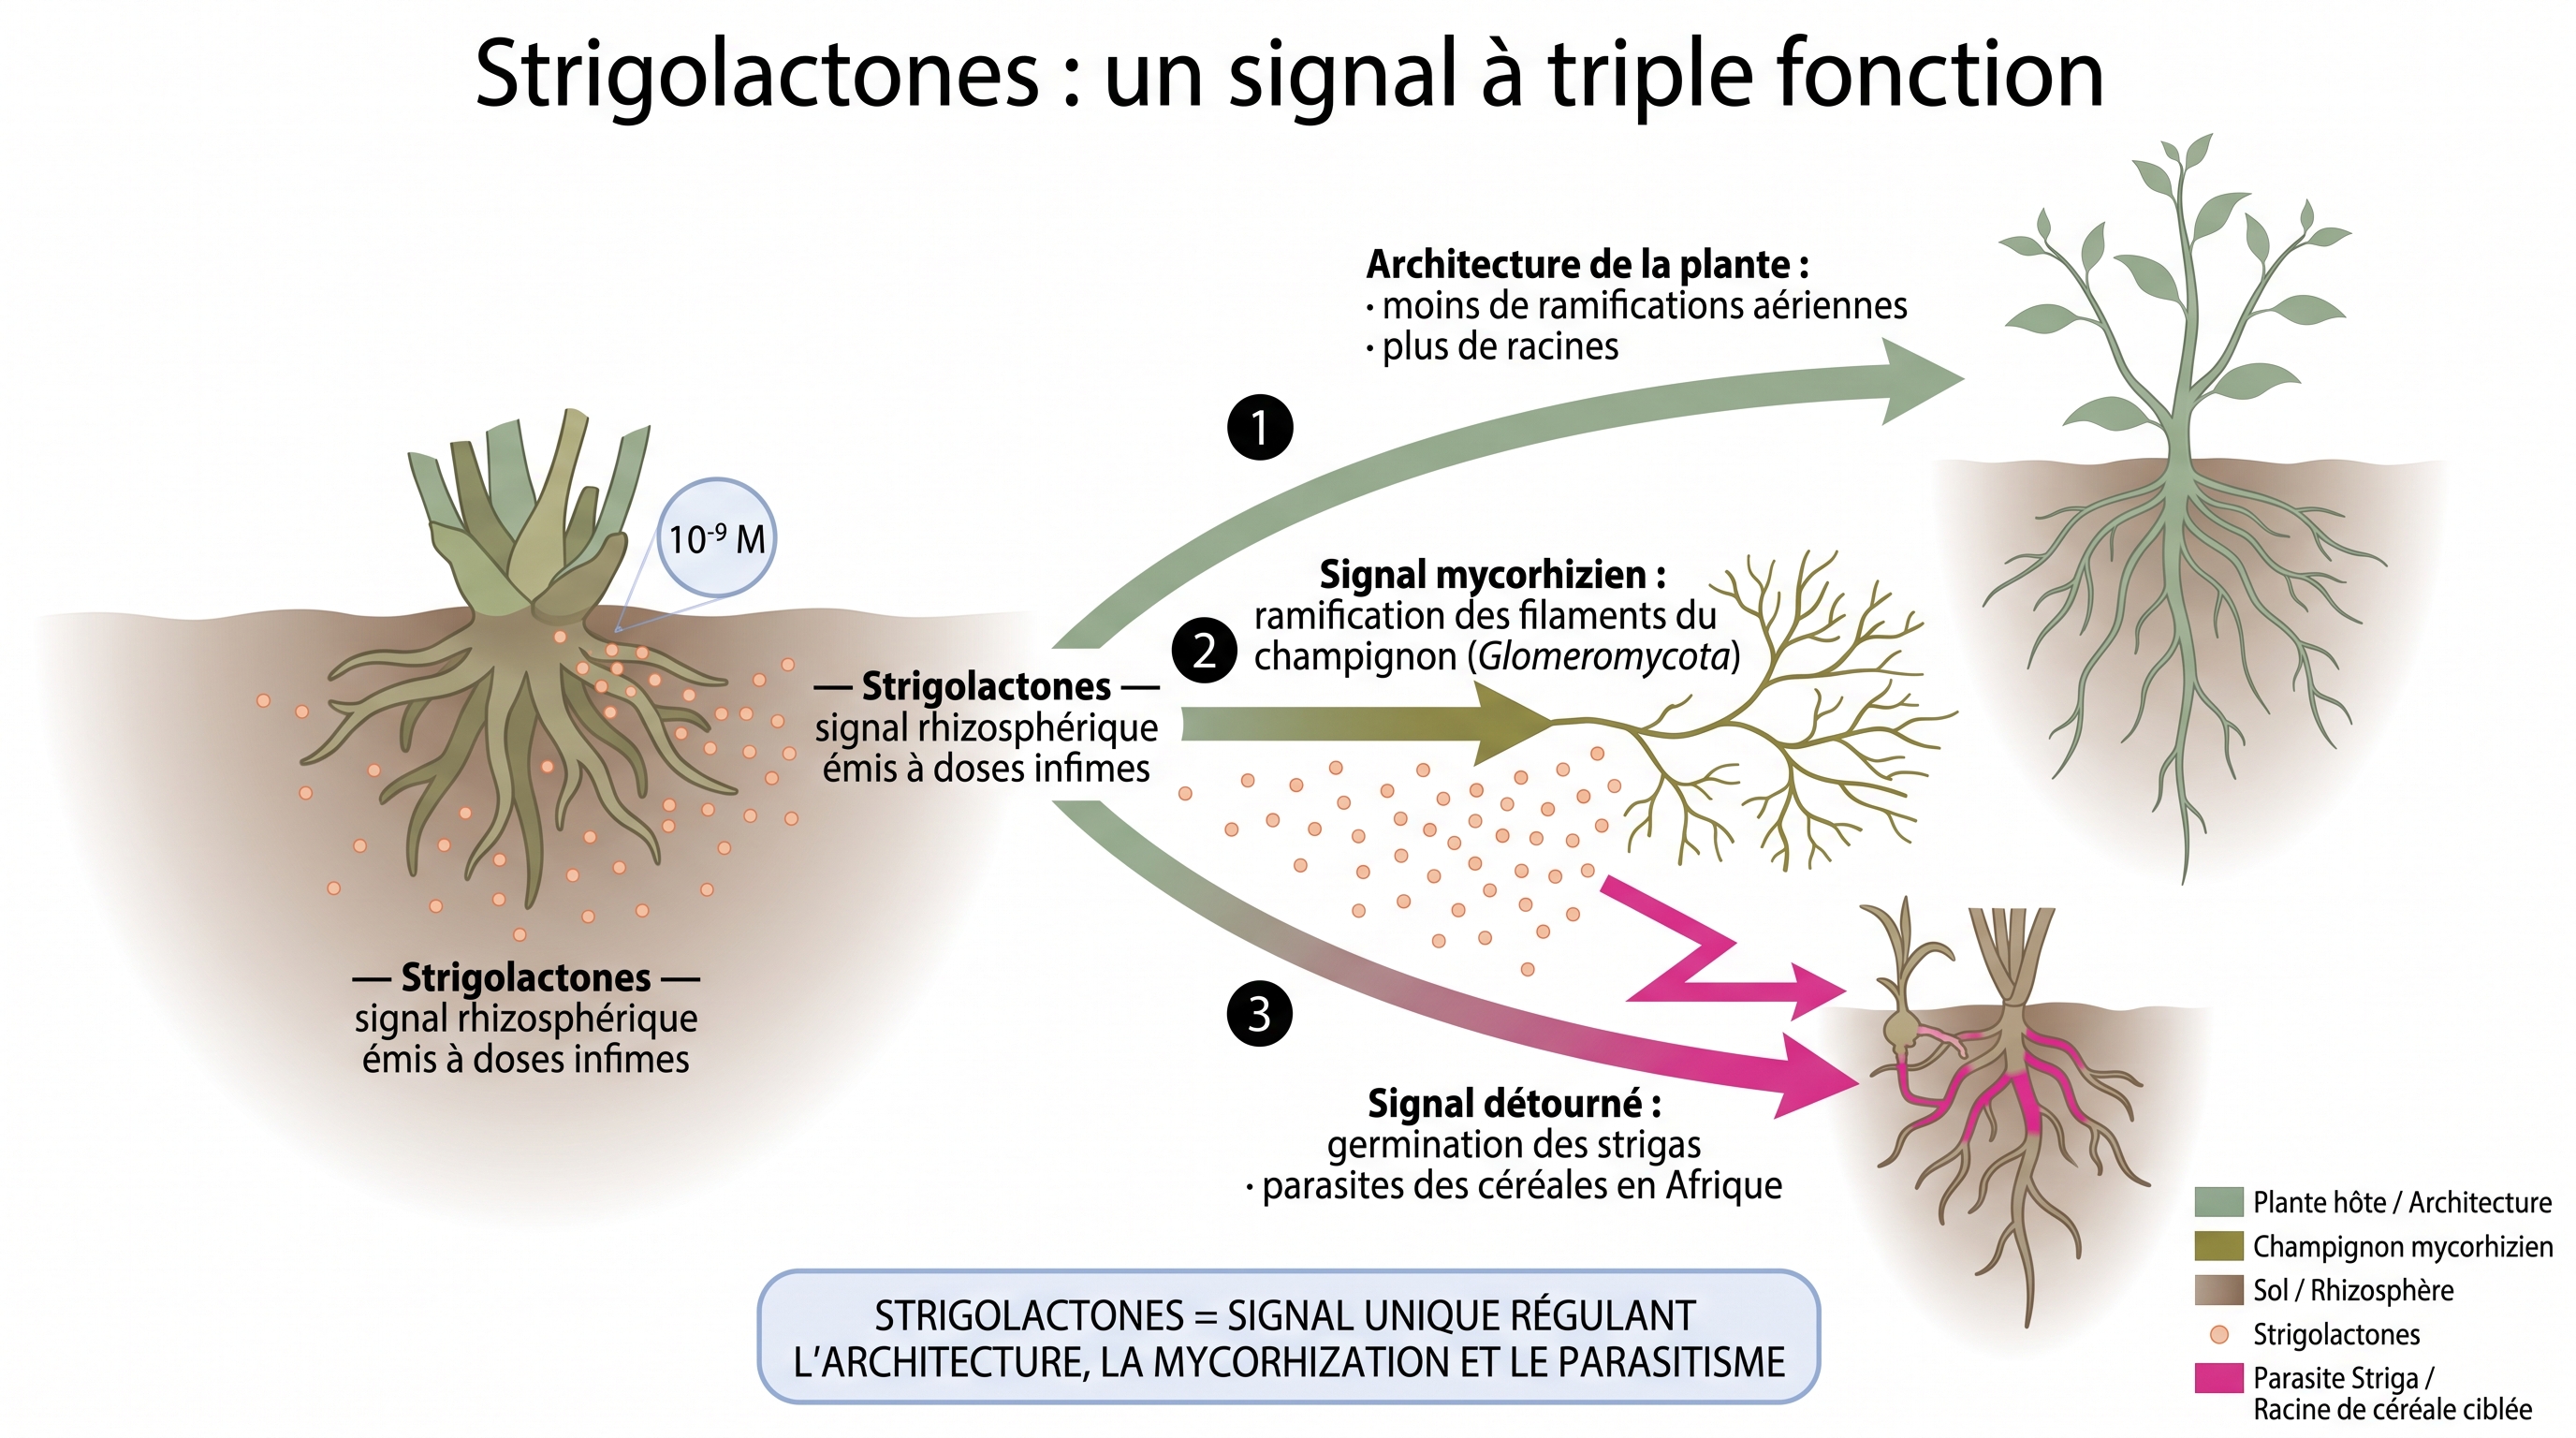
Science
Les strigolactones (SL) sont des phytohormones caroténoïdes dérivées du β-carotène (voie CCD7/CCD8/MAX1). Une même classe moléculaire exerce trois fonctions distinctes :
- hormone endogène : architecture de la plante : inhibition de la ramification des tiges (tallage), élongation racinaire, sénescence ; perception par D14 (α/β-hydrolase) ;
- signal rhizosphérique mycorhizien : induction de la ramification hyphale des Glomeromycota à des concentrations infimes (10⁻⁹ M), étape clé du contact pré-symbiotique ;
- signal de germination des plantes parasites : Striga, Orobanche utilisent les SL comme indicateur d'hôte (récepteur D14L/KAI2 détourné).
Régulation par le statut en phosphore : une carence en P → surproduction de SL → intensification du recrutement mycorhizien (boucle homéostatique) ; la fertilisation P minérale casse cette boucle. Levier agronomique : analogues GR24 pour le diagnostic et l'induction de la symbiose ; inhibiteurs de SL contre Striga en Afrique subsaharienne (pertes de rendement pouvant atteindre 100 % sous infestation sévère — Dossa et al., 2023).
Cards en dialogue (24)
- Contredit
- Approfondit
-
- Cycle du phosphore : fixation, solubilisation biologique, mycorhizes
- 450 Ma de coévolution plante-microbe : cadre temps-profond trois piliers
- Module D14-MAX2-SMXL : architecture moléculaire de la signalisation des strigolactones
- Récepteurs ancestraux et détournement évolutif (exaptation) : KAI2, le cas-type des Orobanchacées
- Germination suicide : lutte intégrée bio-mimétique contre les parasites racinaires (Striga, Orobanche)
- Approfondi par
- Voir aussi (15)
-
- Évolution des plantes et construction du sol : racines, mycorhizes, rhizosphère, boucles plante–microbiome
- Continuum sol-plante-humain : le fil rouge du corpus
- Redondance fonctionnelle et résilience coévolutive (H5/DP4)
- Cry-for-help : recrutement stress-induit du microbiome
- Éliciteurs biologiques exogènes : chitosane et oligogalacturonides (priming PTI/SAR)
- Extraits d'algues marines : phycocolloïdes, bétaïnes et mimétiques phytohormonaux
- Seuils nutritionnels et bascule mutualisme-parasitisme (H1 Shelake 2026)
- Triangle des maladies végétales × extrêmes climatiques : cadre diagnostique renouvelé
- Wood Wide Web : critique scientifique du paradigme des réseaux mycorhiziens communs (CMN)
- Voie de symbiose commune (CSSP) : SYMRK, CCaMK, CYCLOPS comme modules universels conservés
- Exsudats racinaires
- Rhizosphère
- Legacy phosphorus : le trésor enfoui des sols agricoles
- BNI : quand la plante freine sa propre nitrification
- MHB : les bactéries auxiliaires de la mycorhization
Chélation organique et biostimulation foliaire : acides aminés, hydrolysats et mobilité des oligoéléments
Les acides aminés sont des chélateurs naturels de choix : selon leur forme, ils s'accrochent à des métaux différents — certains petits et passe-partout, d'autres spécialisés sur le cuivre ou le calcium. Ils protègent aussi des antagonismes, quand un excès de phosphore bloque le fer, par exemple.
On les fabrique à la ferme pour presque rien, en fermentant du poisson ou des protéines. Attention aux chélates de synthèse trop stables, qui ne lâchent plus le métal et s'accumulent dans l'environnement.
Science
La chélation organique consiste à piéger un cation métallique (Fe, Mg, Ca, Zn, Cu) dans un complexe avec un ligand organique — le bore (acide borique B(OH)₃, molécule neutre) et le molybdène (molybdate MoO₄²⁻, anion) ne sont pas des cations métalliques et obéissent à d'autres voies d'absorption — acides aminés libres, acides organiques, peptides d'hydrolysats protéiques. Ce complexe :
- stabilise le cation en solution en évitant oxydation/précipitation ;
- facilite son absorption foliaire à travers la cuticule cireuse ;
- protège des antagonismes ioniques (ex : excès de P bloquant Fe ; Ca vs Mg).
Spécificités des AA comme chélatants :
- glycine (petit, générique pour cations divalents) ;
- histidine (cycle imidazole, haute affinité Cu/Zn) ;
- cystéine (thiol, affinité métaux mous Hg/Cd) ;
- méthionine (Cu/Zn) ;
- acide aspartique/glutamique (carboxyles, affinité Ca/Mg).
Constantes de stabilité (log K, gammes indicatives — Ram et al., 2024 ; Jacob et al., 2022) :
- sels minéraux ≈ 0-2 (mobiles mais précipitent vite) ;
- chélates aa naturels ≈ 1-16 selon le métal (glycine-Cu 8-16, glycine-Zn 5-9, glycine-Ca/Mg 1-2) ;
- EDTA synthétique ≈ 20-25 (trop stable, pollution cumulative).
Hydrolysats protéiques :
- lacto-fermentation (FAA KNF, JMS JADAM) ;
- hydrolyse acide (HCl) ;
- hydrolyse enzymatique (protéases).
Fournissent un mix d'aa libres + oligopeptides à très faible coût ferme.
Triple fonction : nutritive (N aa) + chélatrice (cations) + élicitatrice (oligopeptides à activité élicitrice hypothétique — plutôt de type DAMP, non établis comme MAMPs).
Synergie avec PGPR : ces derniers produisent sidérophores et acides organiques complémentaires ; combinaison hydrolysat + inoculation PGPR = spectre chélatation étendu.
Cards en dialogue (16)
- Voir aussi (15)
-
- Fermentations appliquées : bokashi, EM, KNF, JADAM, LiFoFer
- Cycle du phosphore : fixation, solubilisation biologique, mycorhizes
- Co-inoculation Bradyrhizobium + Azospirillum : synergie physiologique au-delà de la FBN
- Éliciteurs biologiques exogènes : chitosane et oligogalacturonides (priming PTI/SAR)
- Extraits d'algues marines : phycocolloïdes, bétaïnes et mimétiques phytohormonaux
- Bactéries ferro-réductrices : Geobacter, Shewanella et la respiration dissimilatoire du fer
- Cobalt, vitamine B12 et fixation biologique de l'azote : la chaîne oligoélémentaire oubliée
- Filtre mycorhizien ETM : exclusion métaux lourds et sécurité alimentaire
- Carence silencieuse en cobalt et transfert trophique sol-plante-microbiome humain : pendant Co du continuum sol-aliment-santé
- Paradoxe P-Zn et biofortification du zinc : pendant Zn du continuum sol-aliment-santé
- Diagnostic plante : pH et EC de sève foliaire/pétiolaire comme signatures nutritionnelles précoces
- Sidérophores et voie de capture mycorhizienne : mobilisation biologique des micronutriments métalliques
- Exsudats racinaires
- Biodisponibilité
- Procédés doux et matrices complexes : la synergie plutôt que l'isolat
Diagnostic plante : pH et EC de sève foliaire/pétiolaire comme signatures nutritionnelles précoces
Lire la sève, c'est écouter la plante en direct, des jours avant qu'elle ne montre des symptômes.
Deux lectures simples et peu coûteuses : l'acidité de la sève, qui reflète l'équilibre entre les ions absorbés, et sa conductivité électrique, qui mesure la richesse globale en sels. C'est une boussole utile, pas une mesure parfaite — l'acidité de sève reste une lecture pratique, pas un mécanisme strict.
On compare un pétiole à une feuille, une feuille jeune à une feuille âgée, et on suit l'évolution dans le temps. Un signal précoce, à confirmer par d'autres indices.
Science
La sève foliaire/pétiolaire (extraite à la pince à sève) reflète l'état nutritionnel intra-plante en temps réel — complément essentiel de l'analyse de sol, qui ne donne que le potentiel disponible. Outil low-cost : pH-mètre + conductimètre + pince à sève.
Deux paramètres :
- pH de sève : lu par les praticiens (Kempf/BASTA) comme un indice du ratio cations/anions assimilés (pH bas ~5,5 → dominance d'anions ; pH haut ~6,5-7 → dominance de cations). C'est une heuristique : le pH de sève est tamponné et reflète aussi l'acidité vacuolaire et la charge organique — corrélation utile, pas mécanisme strict ;
- EC de sève (µS/cm) — charge totale en ions (EC haute = nutrition riche ou stress osmotique ; basse = carence ou dilution) ; typiquement 2000-6000 µS/cm en maraîchage sain (repère praticien).
Différentiels : pétiole vs limbe (translocation), jeune vs vieille feuille (mobilité : K mobile, Ca immobile). Signatures précoces : les variations apparaissent jours/semaines avant les symptômes visuels — un indicateur (non une preuve) de glissement vers la susceptibilité. Méthodes associées : rH₂ de sève (Husson, Cirad) pour la capacité redox interne, méthode BASTA en maraîchage bio et viticulture.
Cards en dialogue (15)
- Approfondit
- Approfondi par
- Voir aussi (12)
-
- Cycle de l'azote : fixation, minéralisation, nitrification, pertes
- Cycle du phosphore : fixation, solubilisation biologique, mycorhizes
- Amendements minéraux structurants : levier minéral vs levier organique
- Seuils nutritionnels et bascule mutualisme-parasitisme (H1 Shelake 2026)
- rH2, capacité redox et poising capacity : au-delà de l'Eh ponctuel
- Cycle du potassium : minéraux primaires, KSB et biodisponibilité dans les sols vivants
- Chélation organique et biostimulation foliaire : acides aminés, hydrolysats et mobilité des oligoéléments
- Brix réfractomètre : seuils opérationnels et interprétation agronomique
- BCSR vs SLAN : doctrine équilibre cationique et limites du système Albrecht
- Immunité nutritionnelle : forme d'azote (NH₄⁺/NO₃⁻) → protéosynthèse → signalisation JA-SA
- Diagnostic par la sève : doctrine de calibration et limites des seuils « absolus »
- Croix redox : lire la santé végétale en diagonale (pe+pH)
Microorganismes prédateurs indigènes (IPMO) : la capture ciblée par appât insecte
C'est le principe de l'IPMO : capturer un commando de champignons tueurs d'insectes et de bactéries antagonistes, là où l'inoculum classique ne récolte qu'une flore généraliste. On cible une guilde de prédateurs, pas un engrais.
La pratique est récente et encore peu documentée, et l'efficacité des mélanges sauvages varie : l'idée reste une inspiration plus qu'une recette garantie. L'important est la logique écologique — sélectionner une fonction par l'appât.
Science
Les microorganismes prédateurs indigènes (Indigenous Predatory Microorganisms, IPMO) désignent une évolution récente du Natural Farming — hors KNF officiel — popularisée par Chris Trump : capturer un consortium de micro-organismes entomopathogènes en mélangeant un insecte au grain (riz mi-cuit), l'insecte servant d'appât sélecteur des champignons qui le parasitent (pratique KNF documentée en littérature grise paysanne). Différence clé avec l'inoculum microbien indigène classique (IMO, microflore généraliste de la litière — effet nutritif/structural) : l'IPMO vise une guilde prédatrice (effet régulateur biotique).
Généalogie : les microbes chitinase — cibles de la sélection par appât chitineux (insecte, frass, carapaces de crevettes) — sont connus de longue date ; des ensembles cultivés (GCM, gelatinase and chitinase microbes) sont étudiés en Corée depuis 2019. Trump et Steven Raisner (Potent Ponics) ont popularisé la formulation IPMO — qui inocule aussi les acides aminés de poisson (FAA) avec IPMO pour ses champignons chitinolytiques — plutôt qu'ils ne l'ont inventée (drake, 2024). On distingue ici la pratique récente (non répertoriée dans les neuf solutions du KNF) du mécanisme générique : sélection d'une guilde fonctionnelle par appât substrat.
Composition typique : champignons entomopathogènes (Beauveria, Metarhizium, Lecanicillium), protozoaires prédateurs, bactéries antagonistes (Bacillus, Pseudomonas, Streptomyces). Remarque : les nématodes entomopathogènes (Steinernema, Heterorhabditis) sont parfois cités, mais ce sont des parasites obligatoires produits in vivo ou en fermentation spécialisée — non multipliables par une simple fermentation solide humifère à la ferme.
Applications : soil drench (ravageurs souterrains), pulvérisation foliaire (acariens, thrips, pucerons), incorporation au semis.
Logique écologique : s'inspirer de la régulation observée en forêt mature — où les pullulations de ravageurs restent rares, sans être absentes — pour remplacer le réflexe « un pathogène → un pesticide » par « un consortium → régulation systémique » (l'efficacité agronomique des consortiums sauvages non caractérisés restant variable et peu documentée).
Cards en dialogue (20)
- Approfondit
- Voir aussi (17)
-
- CEP : double identité entomopathogène/endophyte et CBC
- Nématodes : guildes trophiques, indice de Bongers et diagnostic
- Redondance fonctionnelle et résilience coévolutive (H5/DP4)
- Cry-for-help : recrutement stress-induit du microbiome
- Biochar : architecte de sol (habitat, CEC, C stable)
- Boucle microbienne du sol : protozoaires, paradoxe fonctionnel et minéralisation pilotée
- Top-down vs bottom-up : doctrine de régulation des communautés microbiennes du sol
- PNSB (Purple Non-Sulfur Bacteria) : Rhodopseudomonas et la biofertilisation photosynthétique multi-fonctionnelle
- Triangle des maladies végétales × extrêmes climatiques : cadre diagnostique renouvelé
- Mycobiome intestinal et axe gut-brain fongique : le 3ᵉ domaine oublié de la santé humaine
- Gestion systémique des nématodes à galles : rotations, cultures-pièges et régulation trophique
- Synthetic Communities (SynComs) : ingénierie rationnelle de consortia microbiens pour l'agriculture régénérative
- Code des histones et marques permissives/répressives : architecture épigénétique de la mémoire immunitaire végétale
- Capture indigène vs inoculum standardisé : doctrine de l'origine du consortium microbien
- Doctrines fermentaires KNF vs JADAM : matrice des oppositions de Cho Han Kyu et Cho Youngsang
- Trichoderma
- Biocontrôle
PNSB (Purple Non-Sulfur Bacteria) : Rhodopseudomonas et la biofertilisation photosynthétique multi-fonctionnelle
Elle fixe de l'azote sans nodosités, fabrique des hormones qui stimulent la plante, produit des pigments protecteurs, et nettoie même les polluants comme les métaux lourds. Quatre modes de vie interchangeables, du plus simple au plus complexe.
Sa niche : les zones sans air mais éclairées, comme les rizières et les sédiments. C'est un témoin vivant des toutes premières façons de capter l'énergie, bien avant l'oxygène de l'atmosphère.
Science
Les PNSB (Purple Non-Sulfur Bacteria — surtout Rhodopseudomonas palustris, Rhodobacter sphaeroides, Rhodospirillum rubrum) sont des bactéries photosynthétiques anoxygéniques au métabolisme exceptionnellement plastique. R. palustris possède quatre modes interchangeables : photoautotrophie, photohétérotrophie (dominant en agriculture), chimioautotrophie (H₂ + CO₂), chimiohétérotrophie (respiration aérobie).
Multi-fonctionnalité agricole :
- fixation d'azote (nifH) sans nodulation, indépendamment de la plante — contribution rapportée notable en riziculture (à pondérer selon souche et milieu) ;
- production de H₂ photosynthétique ;
- biostimulation (caroténoïdes, sidérophores, phytohormones IAA/GA₃) ;
- bioremédiation (réduction de Cr⁶⁺, Hg²⁺, U⁶⁺ ; dégradation d'hydrocarbures) ;
- protéine unicellulaire (SCP, de l'ordre de 60-70 % de protéines en biomasse sèche selon conditions).
Niche : zones anoxiques éclairées (sédiments, rizières, biofilms). Cadre Natural Farming : composant central de l'EM-1 (Higa, 1991), en consortium avec lactobacilles et levures — équipe couvrant un large spectre de régimes redox (cadrage EM, plus que fait établi), les préparations KNF/JADAM couvrant aussi partiellement d'autres niches (LAB notamment). Intérêt évolutif : la photosynthèse anoxygénique est bien antérieure à la Grande Oxydation ; R. palustris (taxon actuel, non un fossile daté) en est un témoin métabolique vivant des voies énergétiques primordiales.
Cards en dialogue (14)
- Approfondit
- Voir aussi (11)
-
- Redox central : gradients, microzones et 'redox ladder'
- Évolution du vivant : monde anaérobie → photosynthèse → oxygénation → respiration (cadre redox)
- Cycle de l'azote : fixation, minéralisation, nitrification, pertes
- Cycle du carbone : de la photosynthèse à la MAOM
- rH2, capacité redox et poising capacity : au-delà de l'Eh ponctuel
- Biochar : architecte de sol (habitat, CEC, C stable)
- Bactéries ferro-réductrices : Geobacter, Shewanella et la respiration dissimilatoire du fer
- Microorganismes prédateurs indigènes (IPMO) : la capture ciblée par appât insecte
- Extraits d'algues marines : phycocolloïdes, bétaïnes et mimétiques phytohormonaux
- Cobalt, vitamine B12 et fixation biologique de l'azote : la chaîne oligoélémentaire oubliée
- Successions microbiennes de la fermentation lactique : continuum sol -> récipient -> tube digestif
Triangle des maladies végétales × extrêmes climatiques : cadre diagnostique renouvelé
C'est le triangle des maladies.
Les extrêmes climatiques frappent les trois sommets en même temps : la chaleur affaiblit l'immunité de la plante, l'humidité et la chaleur dopent le parasite, et l'environnement déstabilise les microbes protecteurs. Le triangle devient déséquilibré.
La parade change de logique : au lieu de traiter un seul sommet réactivement, on renforce les trois ensemble — diversité, défenses pré-armées, diagnostic précoce, microbiome résilient.
Science
Le Triangle des Maladies (Agrios 1969) : une maladie apparaît à la convergence de trois conditions — un hôte sensible, un pathogène virulent, un environnement favorable.
Sous extrêmes climatiques, les trois sommets sont modifiés simultanément :
- hôte affaibli : les canicules dépriment l'immunité (forte baisse de la PTI vers 35-40 °C, altération des gènes R, sénescence accélérée, production de HSP au détriment des défenses) ;
- pathogène boosté : les inondations dispersent les spores, la chaleur favorise la multiplication (tropicalisation : Xylella fastidiosa, Ca. Liberibacter) ;
- environnement déstabilisant : les extrêmes sortent plante et microbiome de leurs fenêtres optimales en même temps, cassant les équilibres mutualistes protecteurs.
Le triangle devient asymétrique : l'angle « environnement » prend un poids disproportionné. Cadres étendus : Disease Triangle 2.0 (microbiome comme 4ᵉ sommet, Velásquez 2018), Disease Pyramid (facteurs humain et temps, Scholthof 2007), et sa formalisation 2026 HPME (Hôte-Pathogène-Microbiome-Environnement, Wang 2026) intégrant l'enviromique : les variables abiotiques restructurent simultanément la physiologie de l'hôte et les communautés microbiennes, précipitant la rupture de l'antagonisme équilibré.
Implication : robustifier simultanément les sommets plutôt que traiter réactivement un seul — diversité fonctionnelle, priming préventif, diagnostic précoce, résilience du microbiome, cry-for-help entretenu par une exsudation optimale.
Cards en dialogue (16)
- Approfondit
- Approfondi par
- Voir aussi (13)
-
- Hydrique & redox → stress / microzones → stratégies
- CEP : double identité entomopathogène/endophyte et CBC
- Seuils nutritionnels et bascule mutualisme-parasitisme (H1 Shelake 2026)
- Cry-for-help : recrutement stress-induit du microbiome
- Cascade des conséquences : E0 parcelle → E5 planétaire (jusqu'où ça ricoche)
- Éliciteurs biologiques exogènes : chitosane et oligogalacturonides (priming PTI/SAR)
- Strigolactones : signal à triple fonction (architecture, mycorhize, parasitisme)
- Microorganismes prédateurs indigènes (IPMO) : la capture ciblée par appât insecte
- Brix réfractomètre : seuils opérationnels et interprétation agronomique
- Immunité nutritionnelle : forme d'azote (NH₄⁺/NO₃⁻) → protéosynthèse → signalisation JA-SA
- Diagnostic par la sève : doctrine de calibration et limites des seuils « absolus »
- Crosstalk JA-SA : le dispatcher hormonal de la défense végétale
- Croix redox : lire la santé végétale en diagonale (pe+pH)
Cobalt, vitamine B12 et fixation biologique de l'azote : la chaîne oligoélémentaire oubliée
Il est le cœur d'une vitamine que seules les bactéries savent fabriquer, et qui leur permet de produire la molécule protégeant de l'oxygène l'enzyme de fixation d'azote. La plante, elle, ne fabrique pas cette vitamine : elle dépend entièrement de ses alliés. Or le cobalt est souvent absent des analyses de sol courantes ; des seuils indicatifs existent, de l'ordre du dixième de milligramme par kilo. On peut y remédier par un apport ciblé, un enrobage des semences, ou des hydrolysats de poisson riches en cobalt, transposables en autonomie.
Science
Le cobalt (Co²⁺) est un oligoélément essentiel au diazotrophe (et donc indirectement bénéfique à la légumineuse), régulièrement négligé en agronomie. Chaîne métabolique :
- le Co est le cœur métallique de la vitamine B12 (cobalamine), cofacteur d'une quinzaine d'enzymes bactériennes B12-dépendantes connues (méthionine synthase, méthylmalonyl-CoA mutase, ribonucléotide réductase B12-dépendante…) ;
- chez Rhizobium/Bradyrhizobium, la B12 permet la synthèse de la leghémoglobine (qui protège la nitrogénase de l'O₂) et la régulation du métabolisme nodulaire ;
- la nitrogénase elle-même ne contient pas de Co (Mo-Fe, V-Fe ou Fe-Fe selon les variants), mais sa fonctionnalité dépend de la santé des symbiotes B12-dépendants. Sans Co → pas de Rhizobium fonctionnel → pas de FBN effective.
La plante ne synthétise pas la B12 et n'a pas les enzymes B12-dépendantes usuelles : elle dépend de ses symbiotes. Le cobalt est souvent absent des analyses de sol standard (NPK + CaMgS) — angle mort diagnostique. Seuils indicatifs : de l'ordre de 0,1 mg Co/kg minimum, carence rapportée sous ~0,05 mg/kg (sols sableux, acides ou calcaires bloquants ; Hu et al., 2021).
Gestion, quatre voies :
- amendement direct (CoSO₄·7H₂O, chélates, 0,5-2 kg/ha) ;
- enrichissement de semence Co+Mo (modèle brésilien des légumineuses) ;
- biofertilisation par hydrolysats de poisson (FAA, source Co marine, transposable en DIY) ;
- apport indirect de B12 active via PNSB (Rhodopseudomonas).
S'inscrit dans une famille « cycles des oligoéléments » (Co, Mo, Fe, Zn, Cu, Mn) à biodisponibilité pilotée par l'activité microbienne rhizosphérique.
Cards en dialogue (16)
- Approfondit
- Approfondi par
- Voir aussi (12)
-
- Stœchiométrie CNPS et modèle AMG
- Cycle du phosphore : fixation, solubilisation biologique, mycorhizes
- Co-inoculation Bradyrhizobium + Azospirillum : synergie physiologique au-delà de la FBN
- Bactéries ferro-réductrices : Geobacter, Shewanella et la respiration dissimilatoire du fer
- Cycle du potassium : minéraux primaires, KSB et biodisponibilité dans les sols vivants
- PNSB (Purple Non-Sulfur Bacteria) : Rhodopseudomonas et la biofertilisation photosynthétique multi-fonctionnelle
- Profil sol calcaire/argilo-calcaire : calcium structurant, risques de blocages P/oligo
- Couplages biogéochimiques Fe-P-S-N sous alternance redox : vivianite, NDFO et gouvernance des nutriments
- Chélation organique et biostimulation foliaire : acides aminés, hydrolysats et mobilité des oligoéléments
- Triade Fe/Mo/Co pour la nitrogénase : stoechiométrie micronutritionnelle de la fixation biologique de l'azote
- Immunité nutritionnelle : forme d'azote (NH₄⁺/NO₃⁻) → protéosynthèse → signalisation JA-SA
- Symbiose Azolla-Anabaena
Mycobiome intestinal et axe gut-brain fongique : le 3ᵉ domaine oublié de la santé humaine
Ils produisent des métabolites très actifs : des sucres qui modulent notre immunité, des molécules qui miment nos hormones, et des toxines. Par trois chemins — le nerf vague, la circulation sanguine et le métabolisme — ils dialogueraient avec notre cerveau.
Les liens avec les maladies neurodégénératives restent des hypothèses, certaines vivement contestées. Et un angle mort demeure : on étudie bien moins les champignons que les bactéries de notre tube digestif. Or ces champignons nous arrivent largement du sol et de l'air que nos pratiques agricoles façonnent.
Illustration : Fig. card 95-A · Mycobiome intestinal et axe gut-brain fongique : le 3ᵉ domaine oublié de la santé humaine…
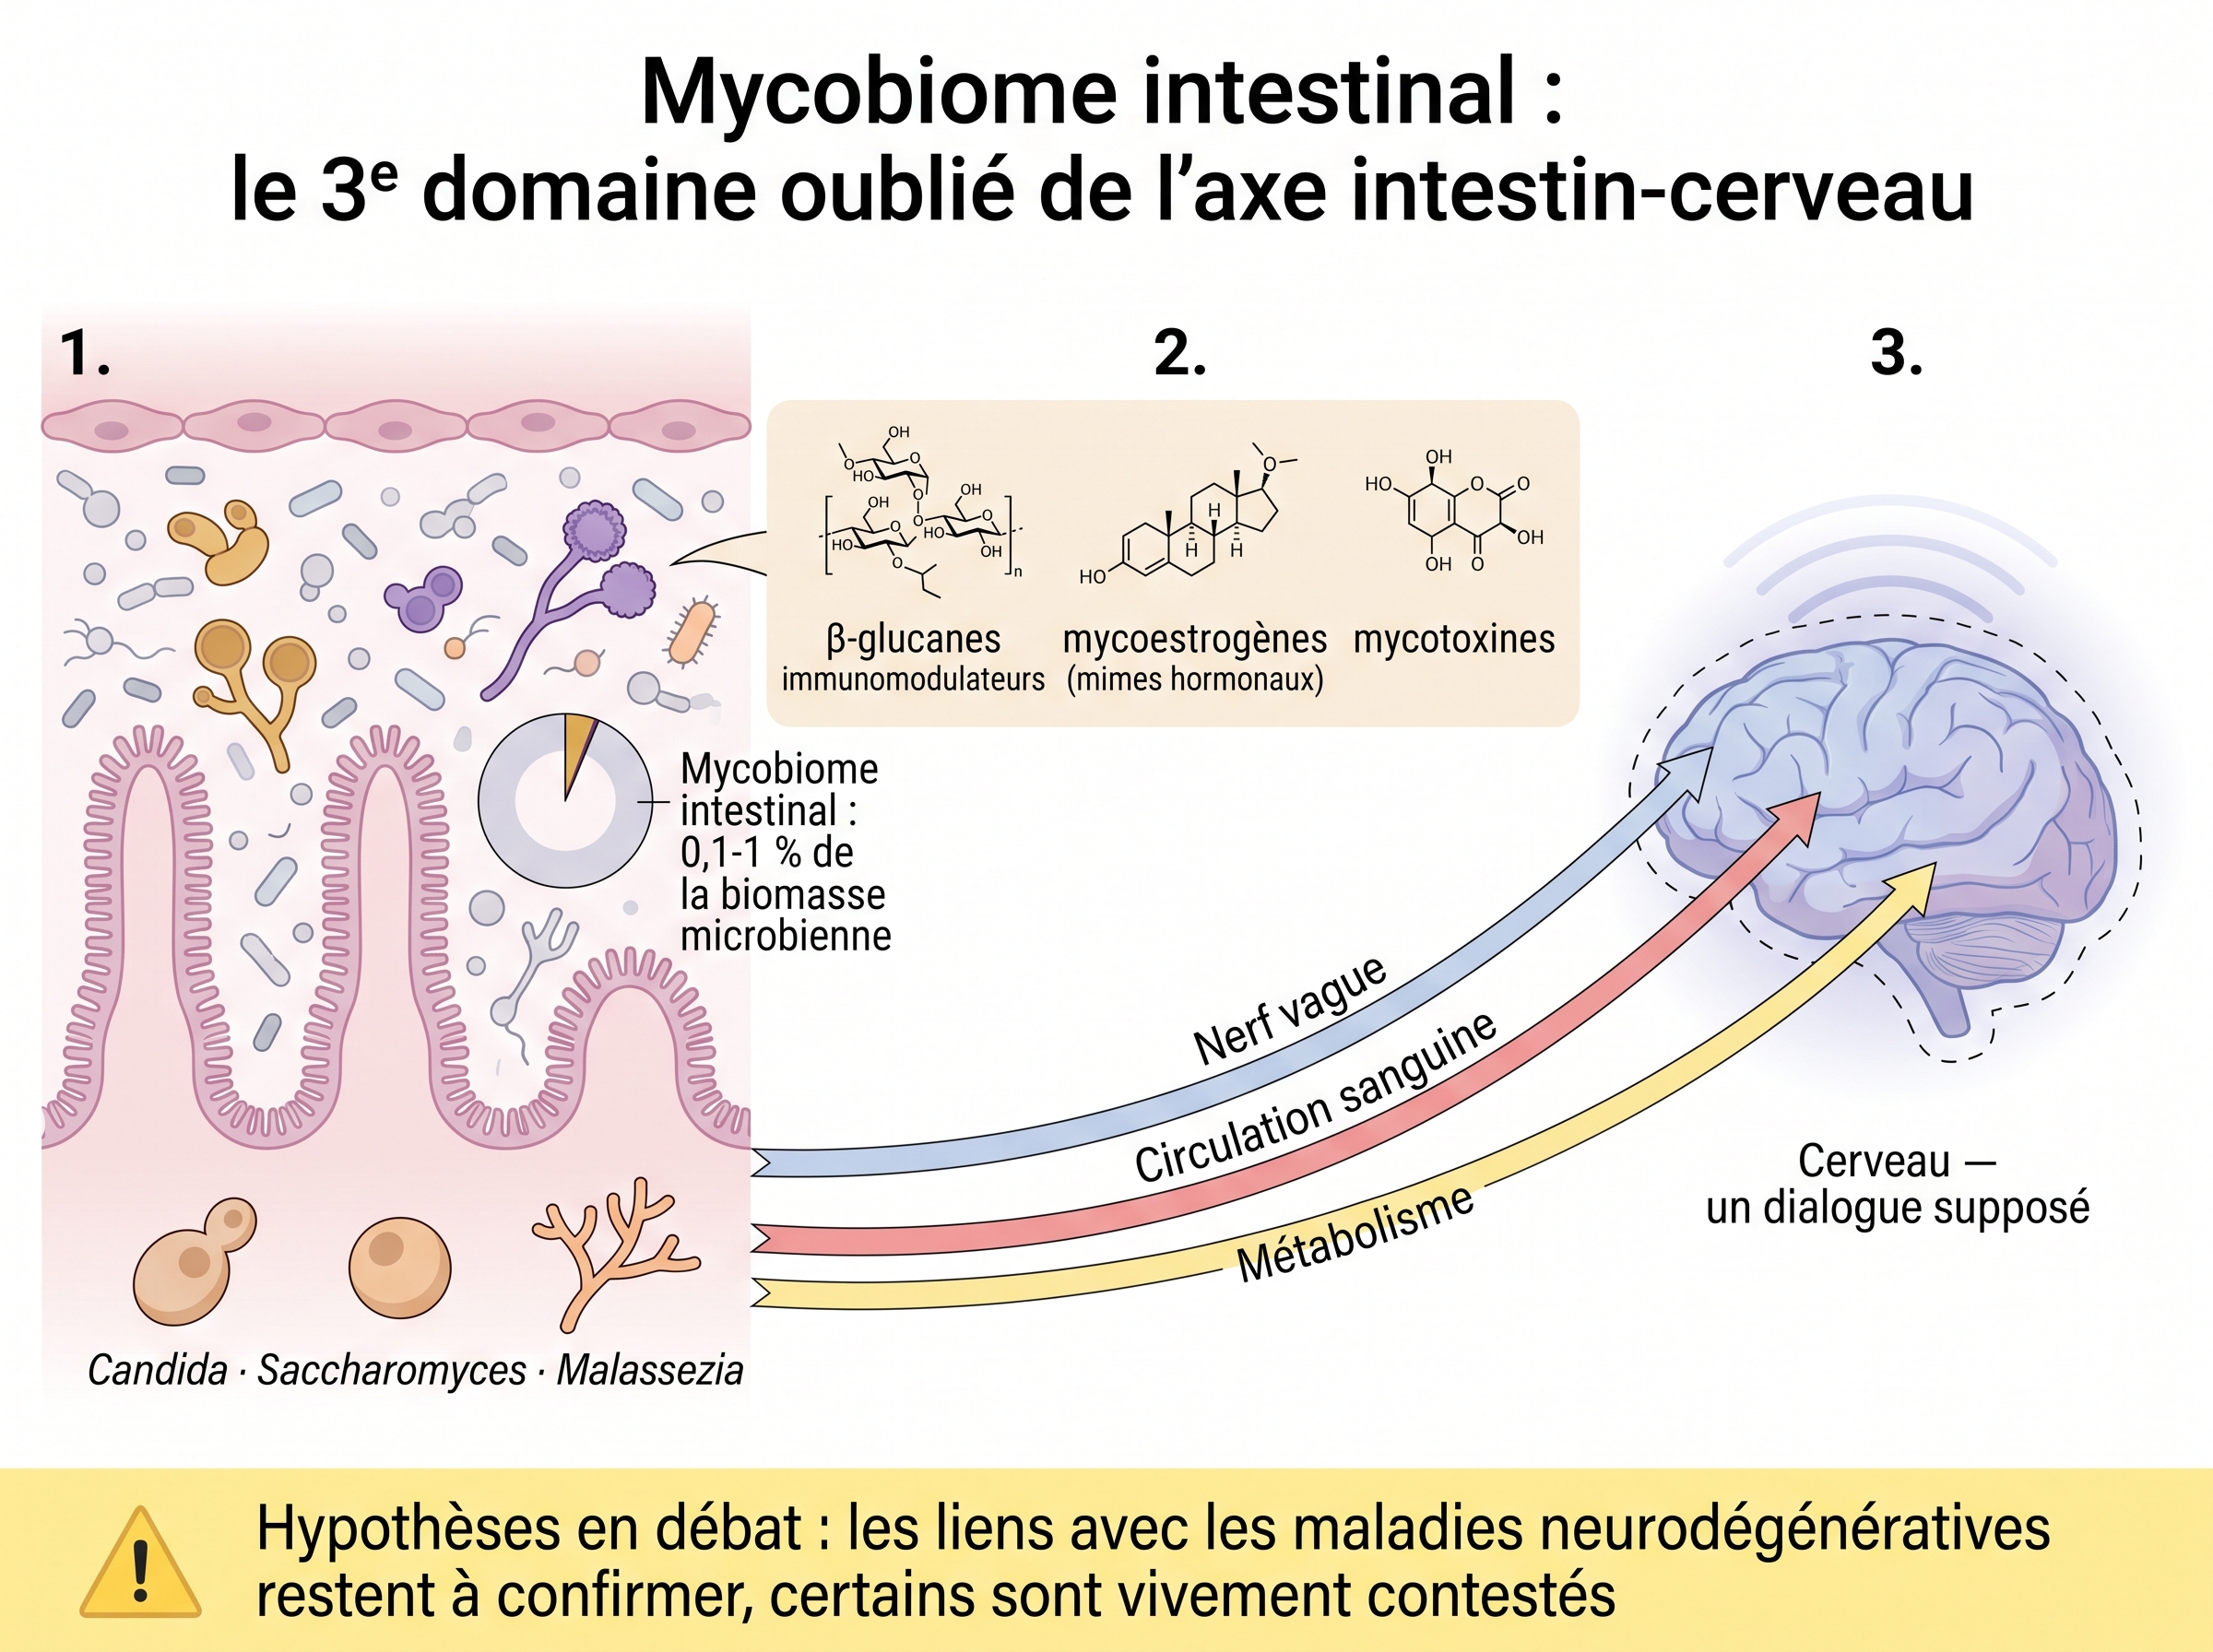
Science
Le mycobiome intestinal ne représente que 0,1-1 % de la biomasse microbienne intestinale mais contribue de façon disproportionnée à la physiologie via des métabolites très actifs (β-glucanes immunomodulateurs, mycoestrogènes, mycotoxines).
Acteurs principaux : Candida (C. albicans commensal/opportuniste, C. glabrata résistante aux azolés, C. auris multirésistante émergente) ; Saccharomyces (cerevisiae, et boulardii probiotique) ; Malassezia ; Aspergillus, Penicillium (transitoires alimentaires) ; Mucor, Rhizopus.
Axe gut-brain fongique, trois voies :
- vagale : le nerf vague détecte la dysbiose et module les circuits cérébraux ;
- humorale : les β-glucanes activent des cytokines systémiques (TNF-α, IL-6, IL-17) atteignant le cerveau via une barrière hémato-encéphalique perméabilisée ;
- métabolique : des mycotoxines (ochratoxine A, gliotoxine) traversent la barrière et modulent l'axe tryptophane/kynurénine.
Associations neurodégénératives documentées (au stade d'hypothèses) : Candida dans le cerveau post-mortem de patients Alzheimer (Pisa 2015 — très contestée : risque de contamination post-mortem, non répliquée indépendamment) ; dysbiose mycobiote précoce dans Parkinson ; signatures pro-inflammatoires dans dépression, TSA, schizophrénie.
Lien au continuum sol-plante-humain : les spores environnementales (sol, aérobiologie, aliments fermentés, produits frais) colonisent l'intestin et y produisent des métabolites bioactifs — les pratiques agricoles modifient l'aérobiologie fongique. Angle mort méthodologique : le séquençage ITS (champignons) reste très sous-utilisé face au 16S (bactéries), d'où une sous-détection systémique du mycobiome.
Cards en dialogue (17)
- Voir aussi (16)
-
- CEP : double identité entomopathogène/endophyte et CBC
- Résistome et transfert horizontal : la face sombre du continuum
- Redondance fonctionnelle et résilience coévolutive (H5/DP4)
- Mémoire transgénérationnelle plante-microbiome
- Phages et transduction des ARG : réservoir silencieux du résistome
- Cascade des conséquences : E0 parcelle → E5 planétaire (jusqu'où ça ricoche)
- Éliciteurs biologiques exogènes : chitosane et oligogalacturonides (priming PTI/SAR)
- Microorganismes prédateurs indigènes (IPMO) : la capture ciblée par appât insecte
- Axe sucre simple → dysbiose intestinale → maladie cardiométabolique
- Quorum Quenching One Health : désarmement enzymatique des pathogènes vs antibiorésistance
- Carence silencieuse en cobalt et transfert trophique sol-plante-microbiome humain : pendant Co du continuum sol-aliment-santé
- Successions microbiennes de la fermentation lactique : continuum sol -> récipient -> tube digestif
- Immunité nutritionnelle : forme d'azote (NH₄⁺/NO₃⁻) → protéosynthèse → signalisation JA-SA
- Le tube digestif comme bioréacteur anaérobie : principe convergent du fermenteur intestinal (ver, ruminant, humain)
- Acides gras à chaîne courte (AGCC) : pivot fibres → barrière → immunité → axe intestin-cerveau
- Banque de semences microbienne dormante : prophages, persisters et spores, le réservoir invisible
Gestion systémique des nématodes à galles : rotations, cultures-pièges et régulation trophique
Quatre leviers combinés : des rotations longues avec des plantes qu'ils n'aiment pas, des cultures-pièges qui les leurrent, des prédateurs naturels (champignons tueurs d'œufs, bactéries parasites), et des variétés résistantes.
Aucun levier seul ne dure — la résistance se contourne en quelques années. Seule la bascule de tout le réseau trophique vers une régulation active offre une maîtrise durable, mesurable en quelques années par les indices de nématodes.
Science
Les nématodes à galles (Meloidogyne spp. — M. incognita, javanica, arenaria, hapla) sont parmi les phytoparasites les plus destructeurs (l'ensemble des nématodes phytoparasites pèse ~80-157 Md USD de pertes par an, dont une part majeure pour Meloidogyne). Résistance généralisée aux nématicides + retraits réglementaires (bromure de méthyle interdit depuis 2005) → gestion systémique à quatre leviers :
- Rotation avec non-hôtes (céréales, légumineuses, brassicacées) : 3-5 ans sans hôte réduit fortement les populations (Stirling 2014) ; la monoculture solanacée les amplifie ×10-50 par cycle.
- Cultures-pièges et plantes nématicides : Tagetes (α-terthiényl), Crotalaria juncea, biofumigation des Brassica (glucosinolates → isothiocyanates), tourteaux de ricin/neem.
- Régulation trophique : champignons nématophages (Pochonia chlamydosporia parasite des œufs, Purpureocillium lilacinum, Arthrobotrys piégeurs), bactérie Pasteuria penetrans (parasite obligatoire), nématodes prédateurs, compost mûr (chitine → chitinases).
- Amélioration de l'hôte : variétés résistantes (gène Mi-1.2), porte-greffes résistants (standard sous serre), PGPR (Bacillus firmus), endophytes Fusarium non pathogènes (ISR).
Principe intégrateur : aucun levier seul n'est durable (la résistance Mi est contournée en 3-5 ans, une culture-piège monospécifique sélectionne des résistants). Seul le basculement du réseau trophique vers une régulation active offre une maîtrise systémique. Les indices de Bongers suivent la trajectoire : une hausse du Maturity Index et une baisse du Plant Parasitic Index — en pratique une baisse de la part des phytoparasites au profit des formes libres (simplification interprétative des indices cp canoniques) — est mesurable en quelques années (les seuils exacts restant contexte-dépendants).
Cards en dialogue (14)
- Approfondit
-
- Nématodes : guildes trophiques, indice de Bongers et diagnostic
- Strigolactones : signal à triple fonction (architecture, mycorhize, parasitisme)
- Germination suicide : lutte intégrée bio-mimétique contre les parasites racinaires (Striga, Orobanche)
- Lutte intégrée bio-mimétique 4 piliers : cadre stratégique unifié pour la gestion des bioagresseurs
- Voir aussi (10)
-
- CEP : double identité entomopathogène/endophyte et CBC
- ACS : les 3 piliers (non-labour, couverture permanente, rotation diversifiée)
- Fermentations appliquées : bokashi, EM, KNF, JADAM, LiFoFer
- Redondance fonctionnelle et résilience coévolutive (H5/DP4)
- Cry-for-help : recrutement stress-induit du microbiome
- Éliciteurs biologiques exogènes : chitosane et oligogalacturonides (priming PTI/SAR)
- Microorganismes prédateurs indigènes (IPMO) : la capture ciblée par appât insecte
- Résistance pré- vs post-infectionnelle aux nématodes : paradigme dual du choix variétal et des rotations
- Cultures-pièges bio-mimétiques : exploitation du trigger des bioagresseurs comme stratégie de lutte intégrée
- Biofumigation : glucosinolates des Brassica → isothiocyanates, suppression des bioagresseurs telluriques
Boucle microbienne du sol : protozoaires, paradoxe fonctionnel et minéralisation pilotée
La boucle microbienne décrit un cycle : la racine nourrit les bactéries de ses sucres, elles pullulent, puis des micro-prédateurs — protozoaires et petits vers — les broutent et rejettent de l'azote et du phosphore assimilables. Sans eux, ces éléments restent prisonniers des bactéries. Paradoxe : la prédation réduit le nombre de bactéries mais rend l'ensemble plus actif, car les bactéries broutées cèdent la place à de plus jeunes. Un sol moins « riche » en biomasse peut donc être plus « actif » en flux — un renversement du réflexe agronomique. On peut réintroduire ces prédateurs par un « thé » de compost mûr.
Science
La boucle microbienne (microbial loop) décrit le flux de matière et d'énergie piloté par les microprédateurs bactérivores du sol. Concept introduit en océanographie (Azam 1983) puis transposé au sol (Clarholm 1985).
Schéma : racine → exsudats carbonés (10-40 % du photosynthate) → bloom bactérien (C:N ~5:1, riche en N) → microprédation par protozoaires et nématodes bactérivores → excrétion de NH₄⁺ et PO₄³⁻ directement assimilables → absorption racinaire. Sans microprédateurs, N et P restent immobilisés dans la biomasse bactérienne.
Paradoxe fonctionnel : la prédation diminue la biomasse bactérienne totale (ATP, PLFA) mais augmente l'activité par turnover rapide (les bactéries broutées sont remplacées par des plus jeunes, plus actives). Un sol prédaté est moins « riche » en biomasse mais plus « actif » en flux — inversion du réflexe agronomique classique.
Acteurs protozoaires : flagellés (10⁴-10⁶/g, dominants en sol oxique actif), ciliés (généralistes, kystes résistants), amibes nues (spécialistes des biofilms), amibes à thèque (bio-indicateurs). Contribution quantifiée : 30-50 % de la minéralisation N rhizosphérique (Bonkowski 2004), effet « N kick » 24-72 h après le bloom.
Bio-indication : le ratio flagellés/amibes/ciliés signe la structure du sol ; méthode MPN accessible (comptage après 1-4 semaines d'incubation). Levier émergent — le thé de protozoaires : extraction de compost mûr + stimulation sélective (infusion paille/foin → bloom bactérien → vague protozoaire), application racinaire (références praticiennes : Ingham — Soil Food Web ; Johnson — BEAM).
Cards en dialogue (13)
- Approfondit
- Approfondi par
- Voir aussi (10)
-
- CEP : double identité entomopathogène/endophyte et CBC
- Cycle du phosphore : fixation, solubilisation biologique, mycorhizes
- Cry-for-help : recrutement stress-induit du microbiome
- Quorum sensing dans la rhizosphère : communication bactérienne, perception végétale, biofilms
- Nématodes : guildes trophiques, indice de Bongers et diagnostic
- Microorganismes prédateurs indigènes (IPMO) : la capture ciblée par appât insecte
- Soil Continuum Model (SCM) : fin du paradigme de l'humification, necromasse microbienne et fractions fonctionnelles MAOM/POM
- Top-down vs bottom-up : doctrine de régulation des communautés microbiennes du sol
- Bio-indication précoce du microbiome (métabarcoding multi-marqueurs) : détection des dégradations avant manifestation visuelle
- Shunt viral du sol : les phages comme moteur du cycle du carbone
Soil Continuum Model (SCM) : fin du paradigme de l'humification, necromasse microbienne et fractions fonctionnelles MAOM/POM
Un modèle récent renverse en effet un siècle d'idées : ces « substances humiques » extraites du sol seraient des artefacts de laboratoire, créés par l'extraction. On distingue deux fractions : des débris encore reconnaissables, qui se renouvellent vite, et de petits composés collés aux minéraux, qui se renouvellent lentement — ce second stock stable, que l'on cherche à grossir. La voie principale pour y parvenir passe par les restes des microbes morts : nourrir les microbes, c'est stocker du carbone. Une nuance reste débattue : une part du stock peut aussi venir directement des plantes, selon le contexte. L'acte agronomique reste inchangé.
Illustration : Fig. card 98-A · Soil Continuum Model (SCM) : fin du paradigme de l'humification, necromasse microbienne et fractions fonctionnelles MAOM/POM…
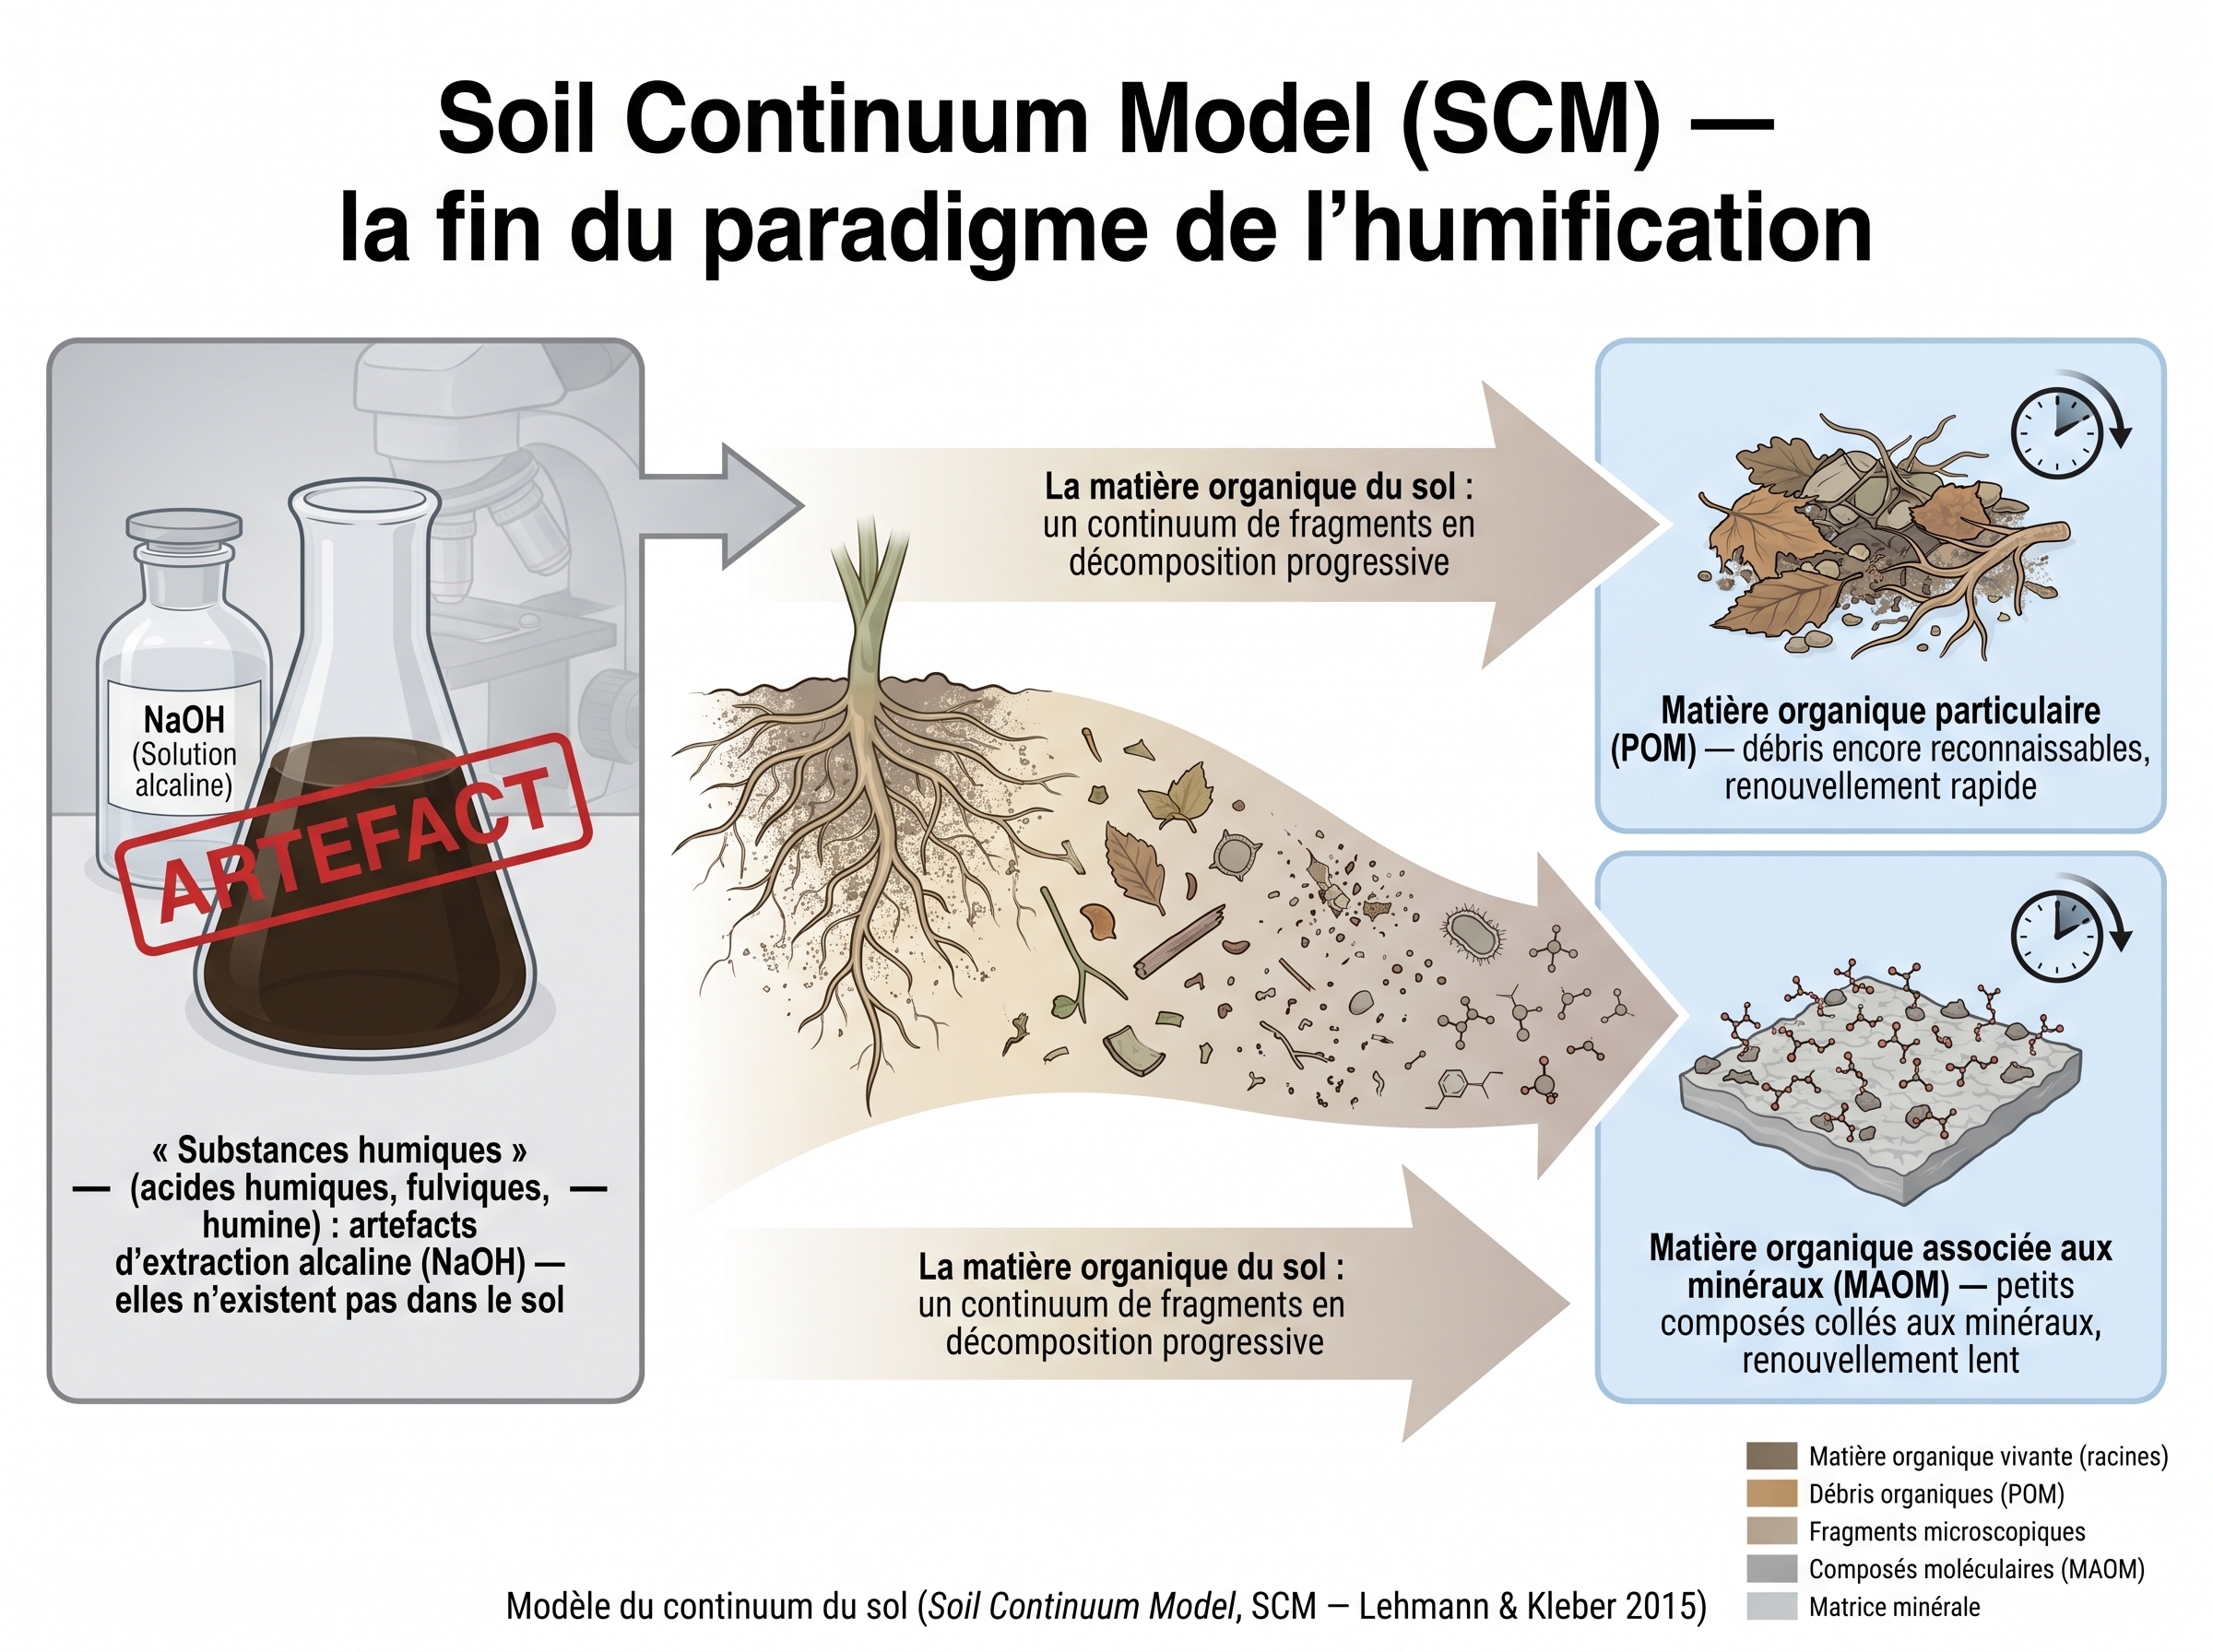
Science
Le Soil Continuum Model (SCM, Lehmann & Kleber 2015) renverse le paradigme de l'humification. Les « substances humiques » (acides humiques, fulviques, humine) décrites depuis un siècle sont des artefacts d'extraction alcaline (NaOH) : elles n'existent pas in situ. La matière organique du sol est un continuum de fragments en décomposition progressive, pas un ensemble de macromolécules stables.
Deux fractions fonctionnelles :
- POM (Particulate Organic Matter) — débris reconnaissables, libres ou occlus, turnover rapide (mois-années), sensibles au labour ;
- MAOM (Mineral-Associated Organic Matter) — composés de faible poids moléculaire adsorbés sur les surfaces minérales (argiles, oxydes Fe/Al), turnover lent (décennal à millénaire pour la fraction ancienne datée ¹⁴C — la MAOM incluant aussi une fraction jeune et dynamique), insensibles au labour.
Voie principale vers la MAOM : la nécromasse microbienne (Liang 2019). Les microbes consomment la MO fraîche, meurent, et leurs résidus cellulaires s'adsorbent sur les minéraux ; la nécromasse microbienne représente une fraction majeure (souvent citée à 50-80 %) de la matière organique du sol (SOM) — et non de la seule MAOM (Liang 2019 ; voir nuance en fin de card). Implication fondamentale : nourrir les microbes = stocker du carbone stable. Ce n'est pas le carbone récalcitrant apporté qui stocke, c'est l'activité biologique (turnover → nécromasse → MAOM) ; les exsudats labiles sont plus efficaces que les résidus ligneux (paradoxe du SCM).
Trois mécanismes de stabilisation : adsorption organo-minérale (dominante de la MAOM) ; occlusion physique (POM dans les microagrégats) ; résistance chimique intrinsèque (rares composés : subérine, cutine, mélanines, C de type biochar).
Vs le modèle AMG : l'AMG (bi-compartimental k1/k2) reste opérationnel pour les bilans carbone, mais ne reflète pas la mécanistique. Le SCM est le cadre conceptuel correct ; l'AMG, l'outil de calcul approximatif. Les deux coexistent avec des rôles distincts.
Nuance — deux voies d'entrée vers la MAOM. La voie microbienne in vivo (nécromasse) n'est pas la seule : une voie de sorption directe transfère des composés végétaux (intacts/oxydés) sur les minéraux sans passer par la biomasse microbienne (Sokol 2018, cadre conceptuel — partition spatiale : microbienne dominante en rhizosphère/hotspots, sorption directe en sol non-rhizosphérique). Le partage quantitatif de la MAOM entre les deux voies est modélisé et débattu : Chang 2023 estime, dans une même étude (méta-synthèse stœchiométrique), 34-47 % microbien / 53-66 % végétal de la MAOM — chiffres contestés (Comment Liu & Chen 2024 ; réponse Chang 2024) et contexte-dépendants (biome, profondeur, climat). « Nourrir les microbes = stocker » reste vrai mais partiel (vaut surtout pour la pompe microbienne, dominante en rhizosphère) ; l'acte agronomique — apporter du carbone végétal — reste inchangé, la voie directe nuance le mécanisme, pas la conduite.
Cards en dialogue (23)
- Contredit
- Approfondi par
- Voir aussi (17)
-
- Profil sol sableux : plafond MAOM bas, marge structurale maximale, métastabilité biologique
- Structure du sol (agrégats/EPS) → habitats → stabilité/résilience
- Amendements minéraux structurants : levier minéral vs levier organique
- Couplages biogéochimiques Fe-P-S-N sous alternance redox : vivianite, NDFO et gouvernance des nutriments
- Boucle microbienne du sol : protozoaires, paradoxe fonctionnel et minéralisation pilotée
- MRV crédits carbone biominéraux : certification de la séquestration C inorganique pérenne
- Wood Wide Web : critique scientifique du paradigme des réseaux mycorhiziens communs (CMN)
- Biomarqueurs fonctionnels du sol vivant : diagnostic par activités et ratios plutôt que par stocks
- Le sol comme incubateur évolutif : microsites anoxiques, reliques de l'Archéen et matière noire microbienne
- Saturation du MAOM et plafond de séquestration : la limite du stockage organo-minéral
- Carbon Use Efficiency (CUE) microbienne : l'arbitrage stockage / respiration
- Carbone organique du sol
- Santé du sol
- Décomposition
- Shunt viral du sol : les phages comme moteur du cycle du carbone
- Formes d'humus (Mull, Moder, Mor) : gradation classique, relue par le paradigme de la nécromasse
- La MOS comme géo-batterie : le carbone, stock d'électrons
Pompe oxalate-carbonate : séquestration C inorganique pérenne
Voici une voie de stockage du carbone différente de l'humus : la voie minérale. Certains arbres excrètent des cristaux d'oxalate de calcium ; des bactéries spécialisées les transforment en carbonate, autrement dit en calcaire, qui alcalinise le sol et stabilise au passage la matière organique collée aux minéraux. Le puits ainsi formé est durable à l'échelle des millénaires, et s'ajoute au stock organique. Sa valorisation en crédits carbone reste toutefois prospective : aucune méthode de mesure normalisée n'existe encore pour ce carbone minéral, et il reste à prouver qu'il s'agit bien d'un gain supplémentaire.
Science
Voie de séquestration minérale du carbone, distincte de la stabilisation organique classique : la voie oxalate-carbonate (OCP) transfère le CO₂ atmosphérique vers le réservoir géologique sous forme de CaCO₃ (Rowley et al., 2016). Les arbres oxalogènes (Iroko, Milicia excelsa) excrètent de l'oxalate de calcium — l'acide oxalique figurant parmi les acides organiques les plus abondants produits par les plantes (Cowan et al., 2024). Déposé dans la litière, cet oxalate est oxydé par des bactéries oxalotrophes ubiquistes des sols agricoles et forestiers, qui l'utilisent comme unique source de carbone et d'énergie (Syed et al., 2020) — dont les genres cultivés Cupriavidus, Burkholderia et Pandoraea (Cowan et al., 2024) — en carbonate, ce qui hausse le pH et déplace les équilibres carbonatés (Cowan et al., 2024).
Il en résulte des accumulations de CaCO₃ pédogène biogéniquement induites (Cailleau et al., 2005), qui alcalinisent le sol par oxydation de l'oxalate (Cailleau et al., 2011) ; chez Milicia excelsa, ces précipitations surviennent jusque dans des oxisols acides tropicaux où elles ne sont pas attendues (Cailleau et al., 2011). La voie OCP constitue un cadre de stockage du carbone du sol (Verrecchia et al., 2006), un puits inorganique pérenne qui s'ajoute à la teneur en matière organique du sol (Syed et al., 2020). Le potentiel s'étend au-delà des irokos, à des espèces alimentaires comme Brosimum (Rowley et al., 2016). La valorisation de ce puits en crédit carbone reste prospective, faute de méthodologie MRV normalisée pour le carbone inorganique pédogène.
Cards en dialogue (6)
Glomaline : glycoprotéine fongique et stockage C profond
Cette substance, la glomaline, cimente les agrégats du sol — ces petites mottes stables. En pratique, on la mesure indirectement, car on ne l'a jamais isolée à l'état pur, et elle n'est pas d'origine uniquement fongique. Elle joue un rôle dans la stabilité physique : elle colle les particules entre elles, et les vers de terre enfouissent ensuite ces mottes en profondeur, à l'abri de la dégradation. Le lien entre cette colle et le stockage profond du carbone reste toutefois largement corrélationnel, c'est-à-dire observé sans mécanisme pleinement prouvé. C'est un mécanisme distinct du stockage du carbone par contact direct avec les minéraux.
Science
Les champignons mycorhiziens à arbuscules (CMA) produisent la glomaline, mesurée en pratique comme GRSP (glomalin-related soil protein) : une fraction opérationnelle Bradford-réactive extraite à l'autoclave, jamais isolée comme protéine pure, et d'origine non exclusivement fongique (homologues de type HSP60). Elle peut représenter plusieurs pourcents de la matière organique des sols agricoles (Wright & Upadhyaya, 1998 ; Rillig, 2004).
Elle cimente les macroagrégats (>250 µm) et participe à la stabilisation physique du carbone par occlusion ; la bioturbation lombricienne enfouit ces agrégats stables en profondeur, à l'abri de la minéralisation. Le lien glomaline → stockage de carbone profond reste toutefois largement corrélationnel. Mécanisme distinct de la matière organique associée aux minéraux (MAOM).
Cards en dialogue (17)
- Approfondit
- Voir aussi (14)
-
- Carbonates pédogéniques – cadre intégré
- Cycle du carbone : de la photosynthèse à la MAOM
- Auxotrophie et co-évolution : le virage lipidique CMA-plante comme signature de symbiose obligatoire
- Sidérophores et voie de capture mycorhizienne : mobilisation biologique des micronutriments métalliques
- Profil sol limoneux : battance/érosion, priorité couverture et biofilms de surface
- Lombriciens : catégories écologiques, drilosphère, turricules, biopores et interactions racines
- Cycle de l'eau : potentiel hydrique, flux, résilience biologique
- Biochar : architecte de sol (habitat, CEC, C stable)
- Filtre mycorhizien ETM : exclusion métaux lourds et sécurité alimentaire
- Diversité fongique dual rôle producteur/régulateur : les champignons comme acteurs ambivalents des cycles biogéochimiques
- Wood Wide Web : critique scientifique du paradigme des réseaux mycorhiziens communs (CMN)
- Agrégation
- Biofilms microbiens : architecture EPS et théâtre des cycles
- Formes d'humus (Mull, Moder, Mor) : gradation classique, relue par le paradigme de la nécromasse
Filtre mycorhizien ETM : exclusion métaux lourds et sécurité alimentaire
Le champignon piège le métal dans sa paroi, et la plante le confisque dans des compartiments de ses racines — un filtre biologique partiel. Résultat espéré : un aliment moins chargé en métaux toxiques.
Mais le filtre n'a pas la même efficacité partout : bien documenté pour le cadmium et le plomb, il reste incertain pour l'arsenic et le mercure, et l'effet sur la santé humaine n'a pas de seuil établi. Une protection réelle, à ne pas surévaluer.
Science
Les éléments traces métalliques (Cd, Pb, As, Hg) adsorbés sur les colloïdes du sol sont plus ou moins biodisponibles selon le pH et l'Eh. Les champignons mycorhiziens à arbuscules peuvent séquestrer une partie de ces métaux dans leur paroi hyphale, et la plante symbiotique les compartimente dans ses vacuoles racinaires — un filtre biologique partiel.
L'efficacité dépend fortement du métal et du couple espèce fongique × espèce végétale : bien documentée pour Cd et Pb, elle reste contestée pour As (l'arsénite As(III), mobile, est parfois favorisé) et Hg. À l'échelle du continuum sol-plante-humain, l'hypothèse d'un aliment à plus faible charge en ETM — et donc d'un moindre stress oxydatif intestinal — découle de ce filtre, mais reste à étayer (pas de seuil quantifié établi).
Cards en dialogue (10)
- Approfondi par
- Voir aussi (8)
-
- Glomaline : glycoprotéine fongique et stockage C profond
- Densité nutritionnelle alimentaire (sol → assiette)
- Toxicité ferreuse en sols hydromorphes : stress oxydatif, mobilité Cd/As et stratégies AWD
- Wood Wide Web : critique scientifique du paradigme des réseaux mycorhiziens communs (CMN)
- Auxotrophie et co-évolution : le virage lipidique CMA-plante comme signature de symbiose obligatoire
- Chélation organique et biostimulation foliaire : acides aminés, hydrolysats et mobilité des oligoéléments
- Lutte intégrée bio-mimétique 4 piliers : cadre stratégique unifié pour la gestion des bioagresseurs
- Le saule (Salix), arbre-ressource multi-services
Antifragilité : stress modéré → diversification de l'hologénome
Appliquée à la plante et à ses microbes associés, l'idée suggère qu'un stress modéré pousserait l'ensemble à se diversifier, en recrutant de nouveaux microbes et de nouvelles fonctions utiles. Le mécanisme reste proposé, pas encore consensuel, et le rôle des échanges de gènes entre microbes demeure hypothétique. C'est néanmoins une piste pour la transition agroécologique : traverser un stress intermédiaire construirait une résilience à la fois biologique et économique.
Science
L'antifragilité (Taleb, 2012) désigne un système qui ne se contente pas de résister au stress : il gagne du désordre et s'en renforce, au-delà de la simple robustesse qui, elle, encaisse sans changer. Cette notion s'articule au compromis performance / robustesse des systèmes vivants : analysées par biologie quantitative, les plantes apparaissent comme le produit de processus stochastiques pleins d'inefficacités, d'incohérences et de retards, et ce sont précisément ces traits qui nourrissent leur robustesse — la sémantique de l'optimisation (programme, plan) étant trompeuse (Hamant, 2024).
Transposée à l'hologénome (plante + phytomicrobiome associé), l'hypothèse est qu'un stress modéré en diversifie la composition par recrutement microbien et sélection de fonctions adaptatives. Ce mécanisme est proposé, non encore consensuel ; le rôle du transfert horizontal de gènes demeure hypothétique. Il s'appuie sur un constat établi : en conditions naturelles, les plantes vivent associées à un phytomicrobiome orchestré, intégral à la plante notamment sous contrainte, l'effet microbien sur l'hôte — positif, neutre ou négatif — dépendant largement de l'environnement (Lyu et al., 2021).
L'antifragilité appliquée au vivant se distingue ainsi de la robustesse : le système ne résiste pas seulement au stress, il s'en nourrit.
Cards en dialogue (13)
- Contredit
- Donne naissance à
- Approfondit
- Approfondi par
- Voir aussi (5)
-
- Cycle 5 étapes d'érosion civilisationnelle (200-2000 ans)
- Modèle brésilien FBN soja : enseignements et limites d'une transition continentale réussie ET ambivalente
- Autodissémination et push-pull insectes : ingénierie comportementale et amplification CEP
- Fragilité systémique fossile : la dépendance aux intrants de synthèse comme point de rupture
- Stabilité contre rendement moyen : évaluer sous climat non stationnaire
Axe sucre simple → dysbiose intestinale → maladie cardiométabolique
Le raffinage détruit les fibres et la structure de l'aliment : privé de ses fibres, le microbiote s'appauvrit, l'intestin devient perméable, et une inflammation sourde s'installe en continu. Ce feu couvant alimenterait le syndrome métabolique et les maladies cardiovasculaires.
Une partie de cette cascade reste débattue — la perméabilité est-elle cause ou conséquence ? — mais la direction est claire : moins de fibres, plus de risque.
Science
Une chaîne sanitaire relie l'appauvrissement de l'alimentation au syndrome métabolique. Le maillon décisif n'est pas la monoculture céréalière en soi mais le raffinage industriel, qui détruit les fibres et la matrice alimentaire native et élève l'index glycémique.
La famine en fibres qui en résulte appauvrit le microbiote : essor des Proteobacteria — marqueur reconnu de dysbiose — et dégradation du ratio Firmicutes/Bacteroidetes, endotoxémie lipopolysaccharidique et perméabilité intestinale accrue (leaky gut). L'inflammation chronique de bas grade qui en découle alimenterait le syndrome métabolique et les maladies cardiovasculaires.
Cette cascade reste en partie débattue (la perméabilité intestinale comme cause ou conséquence n'est pas tranchée). Distincte de l'axe trophobiose, centré sur l'azote.
Cards en dialogue (9)
- Voir aussi (7)
-
- Mycobiome intestinal et axe gut-brain fongique : le 3ᵉ domaine oublié de la santé humaine
- Successions microbiennes de la fermentation lactique : continuum sol -> récipient -> tube digestif
- Quorum sensing dans la rhizosphère : communication bactérienne, perception végétale, biofilms
- Continuum sol-aliment-santé : ratio Na/K alimentaire et mortalité cardiovasculaire
- Quorum Quenching One Health : désarmement enzymatique des pathogènes vs antibiorésistance
- Exposome chimique alimentaire et Reactobiome : le microbiote comme filtre des xénobiotiques
- Acides gras à chaîne courte (AGCC) : pivot fibres → barrière → immunité → axe intestin-cerveau
Brix réfractomètre : seuils opérationnels et interprétation agronomique
Rapide, pas cher, et à la portée de tous.
Mais attention à ne pas en faire une preuve : l'idée qu'un Brix élevé signe une plante saine et résistante est une piste de praticien, encore faiblement étayée. Et les seuils qu'on se transmet varient énormément selon la plante, l'heure et l'hydratation.
La bonne façon de s'en servir : comparer la même culture dans le temps, et lire l'évolution plutôt qu'un chiffre absolu. Un indicateur de tendance, pas un verdict.
Science
Le réfractomètre Brix mesure la teneur en matières solubles totales de la sève (sucres, mais aussi acides, sels, acides aminés). C'est un indicateur indirect de terrain rapide et peu coûteux, à interpréter comme un indicateur non spécifique : il ne mesure ni la « vigueur métabolique » ni un statut sanitaire.
L'association Brix élevé → nutrition équilibrée / résistance aux maladies est une heuristique de praticien (mouvement densité nutritionnelle, Reams), faiblement étayée en littérature révisée — à manier comme piste, pas comme preuve.
Les valeurs repères souvent citées (Brix > 12 favorable, < 8 défavorable) varient fortement selon l'espèce, l'organe, l'heure et l'hydratation : les lire en relatif (même culture, suivi dans le temps), pas en seuil absolu.
Protocole : presser la sève de jeunes feuilles (3ᵉ-4ᵉ rang), déposer sur le prisme, lire la valeur.
Cards en dialogue (11)
- Contredit
- Voir aussi (9)
-
- Cycle du phosphore : fixation, solubilisation biologique, mycorhizes
- Eh terrain : sondes redox, gradient mV/cm et méthode in situ
- Densité nutritionnelle alimentaire (sol → assiette)
- Diagnostic plante : pH et EC de sève foliaire/pétiolaire comme signatures nutritionnelles précoces
- Triangle des maladies végétales × extrêmes climatiques : cadre diagnostique renouvelé
- Doctrines fermentaires KNF vs JADAM : matrice des oppositions de Cho Han Kyu et Cho Youngsang
- Biomarqueurs fonctionnels du sol vivant : diagnostic par activités et ratios plutôt que par stocks
- Immunité nutritionnelle : forme d'azote (NH₄⁺/NO₃⁻) → protéosynthèse → signalisation JA-SA
- Diagnostic par la sève : doctrine de calibration et limites des seuils « absolus »
Eh terrain : sondes redox, gradient mV/cm et méthode in situ
Elles mesurent à plusieurs profondeurs la tension du sol et dessinent une carte de ses zones actives.
Chaque profondeur raconte une histoire : la surface, l'horizon travaillé, la semelle. C'est là que basculent les grands processus — la dénitrification, la réduction du fer, la formation des gaz des marais. Pas de fenêtre unique : chaque réaction a sa propre gamme.
Mais la mesure est délicate : elle fluctue avec la chaleur du jour et ne donne jamais une valeur absolue parfaite. On lit donc des écarts entre zones, entre profondeurs, plutôt qu'un chiffre gravé dans le marbre.
Science
Mesure in situ du potentiel redox (Eh) à plusieurs profondeurs du profil, par sondes platine et électrode de référence Ag/AgCl. Elle cartographie l'hétérogénéité redox de la parcelle, là où basculent les couplages biogéochimiques.
Les seuils suivent l'échelle redox (≈ à pH 7) : dénitrification vers +250 mV, réduction du fer vers +100 à 0 mV, réduction des sulfates et méthanogenèse en dessous de −150 / −200 mV. Il n'y a donc pas une fenêtre unique d'activité : chaque couple a sa gamme.
Protocole : enfoncer les sondes à 10 / 25 / 50 cm, laisser stabiliser puis lire. À interpréter avec prudence — l'électrode Pt mesure un potentiel mixte, rarement à l'équilibre, sujet à une dérive thermique diurne pouvant atteindre ~200 mV ; privilégier les écarts relatifs entre zones et profondeurs.
Hiérarchie des instruments (testeur portable vs sonde étalonnée vs référence laboratoire) et renversement « mesurer la plante plutôt que le sol » : voir la fiche des sondes terrain, §6.5.
Cards en dialogue (10)
- Approfondit
- Approfondi par
- Voir aussi (6)
-
- Hydrique & redox → stress / microzones → stratégies
- Mémoire redox et noyaux de réduction persistants : la dimension temporelle des microzones anoxiques
- rH2, capacité redox et poising capacity : au-delà de l'Eh ponctuel
- Couplages biogéochimiques Fe-P-S-N sous alternance redox : vivianite, NDFO et gouvernance des nutriments
- Brix réfractomètre : seuils opérationnels et interprétation agronomique
- Biomarqueurs fonctionnels du sol vivant : diagnostic par activités et ratios plutôt que par stocks
Tests enzymatiques β-glucosidase / phosphatase / uréase : protocoles et seuils
Mesurées ensemble, elles dessinent un profil des fonctions actives — pas une « activité globale » floue. Elles détectent surtout les déséquilibres quand on compare deux parcelles ou deux pratiques, plus sûrement qu'en valeur absolue.
Le protocole est accessible : un réactif qui colore, une incubation, une lecture au spectrophotomètre. Une boîte à outils de laboratoire simple pour lire ce que le sol sait faire.
Science
Trois enzymes extracellulaires indicatrices, chacune d'une fonction spécifique du sol :
- β-glucosidase : décomposition des polysaccharides (cycle du carbone) ;
- phosphatase acide : minéralisation du phosphore organique ;
- uréase : turnover de l'azote uréique.
Mesurées conjointement, elles dessinent un profil fonctionnel — et non une « activité biologique globale » : ces enzymes persistent stabilisées sur les colloïdes et ne reflètent que leurs voies respectives. Elles détectent surtout des déséquilibres trophiques en comparaison entre parcelles, plus robuste qu'en valeur absolue.
Protocole colorimétrique accessible : substrats p-nitrophényle, incubation 1 h à 37 °C, lecture au spectrophotomètre à 400 nm (protocole standard pNP — Nannipieri et al., 2002 ; β-glucosidase : Li et al., 2024 ; phosphatase : Manzoor et al., 2022).
Cards en dialogue (5)
- Approfondit
Calcaire actif : protocole et interprétation pour sols calcaires
C'est elle qui commande la disponibilité des nutriments, pas le calcaire total.
Le test de référence (protocole Drouineau-Galet) extrait cette fraction à l'oxalate d'ammonium et la dose. À titre de repère, on distingue des teneurs faibles, modérées puis fortes ; plus elles montent, plus le fer, le manganèse et le zinc risquent d'être verrouillés, et plus le phosphore précipite.
En pratique : avant de diagnostiquer une carence sur sol calcaire, mesurez le calcaire actif. C'est lui qui explique pourquoi des apports d'oligo-éléments restent parfois sans effet.
Science
Calcaire actif : fraction fine (< 20 µm) du calcaire total, susceptible de se dissoudre dans la solution du sol et d'en gouverner la chimie biodisponible.
Protocole Drouineau-Galet : extraction à l'oxalate d'ammonium 0,2 M, dosage par colorimétrie ou permanganimétrie.
Seuils d'interprétation : < 5 % peu actif, 5-10 % modéré, > 10 % fortement actif (seuils conventionnels des référentiels pédologiques français ; méthode oxalate d'ammonium : Boischot & Hébert, 1947) — risque de blocage du fer, du manganèse et du zinc par alcalinisation rhizosphérique locale. Module aussi la biodisponibilité du phosphore (précipitation calcique) et celle des micronutriments chélatés.
Ce risque de blocage est étayé par des données de terrain : sur 55 échantillons de sols calcaires, la solubilité du fer, du zinc, du cuivre et du manganèse apparaît faible en sols alcalins riches en chaux, entraînant des pertes de rendement (Kadifeci et al., 2024). En blé tendre cultivé sur 120 parcelles de sols calcaires, la biodisponibilité du zinc dans le grain est compromise, en lien avec les concentrations de phosphore et d'acide phytique (Rasheed et al., 2021). La détermination des carbonates actifs importe pour les processus chimiques des sols arides et semi-arides ; une méthode simplifiée reposant sur une différence de concentration a été proposée en alternative au titrage KMnO₄ conventionnel (Sheikh-Abdullah et al., 2022).
Cards en dialogue (4)
- Voir aussi (4)
-
- Couplages biogéochimiques Fe-P-S-N sous alternance redox : vivianite, NDFO et gouvernance des nutriments
- BCSR vs SLAN : doctrine équilibre cationique et limites du système Albrecht
- Bascule paradigme microzones anoxiques : demande biologique vs géométrie de l'agrégat
- Profil sol calcaire/argilo-calcaire : calcium structurant, risques de blocages P/oligo
Enhanced Rock Weathering (ERW) : altération minérale accélérée
La roche s'altère, libère calcium et magnésium, et le gaz carbonique se transforme en bicarbonates qui s'en vont vers les océans. C'est une technologie d'émission négative reconnue, qui structure aussi le sol.
Mais les effets spectaculaires rapportés — stockage de carbone, infiltration d'eau — viennent d'essais isolés ou de courte durée : à prendre comme des promesses à confirmer, pas des acquis. Et attention : une hausse trop forte du pH du sol peut bloquer certains oligoéléments.
Science
Stratégie de capture du carbone (CDR) : épandre des roches silicatées finement broyées (basalte, dunite, olivine) sur les terres cultivées pour accélérer l'altération chimique naturelle.
Mécanisme : libération progressive de Ca²⁺/Mg²⁺ → CO₂ piégé sous forme de bicarbonates (HCO₃⁻, voie principale de séquestration) + cation bridging → stabilisation de la nécromasse en MAOM (voie proposée, moins documentée).
Ordres de grandeur : 0,3-0,8 tCO₂/t de roche (la séquestration nette dépend fortement du type de roche, du climat et des pertes par re-précipitation) ; potentiel mondial estimé 0,5-2 Gt CO₂/an sur cropland (Tao & Houlton 2024, Palma 2025). Les effets sols spectaculaires rapportés — conductivité hydraulique +400 %, SOC +69-135 % en 0-20 cm, cations disponibles +62-252 % (Costanzo 2025, Richardson 2024) — proviennent d'essais isolés ou de court terme et ne sont pas généralisables en l'état.
Trade-off : un effet contre-productif est possible (Buss 2023) si la hausse de pH abaisse la disponibilité des micronutriments — atténué par co-application organique (Almaraz 2025).
Cards en dialogue (9)
- Approfondit
- Approfondi par
- Voir aussi (6)
-
- Cycle du carbone : de la photosynthèse à la MAOM
- Biochar : architecte de sol (habitat, CEC, C stable)
- BCSR vs SLAN : doctrine équilibre cationique et limites du système Albrecht
- Profil sol sableux : plafond MAOM bas, marge structurale maximale, métastabilité biologique
- Carbonates pédogéniques – cadre intégré
- Amendements minéraux structurants : levier minéral vs levier organique
Cycle 5 étapes d'érosion civilisationnelle (200-2000 ans)
D'abord la monoculture et la simplification. Puis l'érosion, qui emporte le sol bien plus vite qu'il ne se forme. Ensuite une dégradation hydrique — salinisation des terres irriguées et/ou sécheresse, deux mécanismes souvent cumulés —, puis la baisse des rendements et la montée des maladies, jusqu'à l'effondrement des institutions ou la migration.
Ces étapes sont cumulatives, et la causalité exacte de chaque cas historique fait encore débat. Sumer, les Mayas, l'Empire romain ou le Dust Bowl états-unien se lisent comme des trajectoires discutées, pas comme des verdicts.
À l'inverse, les civilisations qui durent misent sur la diversification et la construction d'un sol vivant : le cycle n'est pas une fatalité, c'est un signal d'alarme.
Science
Pattern récurrent de dégradation des sols associé à l'effondrement des civilisations (Pimentel 1995, Montgomery 2007). Cinq étapes :
- Monoculture et simplification.
- Érosion accélérée : d'un à deux ordres de grandeur au-dessus de la pédogenèse (Montgomery, 2007).
- Dégradation hydrique : salinisation secondaire (irrigation mal drainée) et/ou sécheresse climatique — deux mécanismes distincts, souvent cumulés.
- Baisse des rendements et montée des maladies.
- Effondrement institutionnel ou migration.
Cas validés : Sumer (3000-1500 av. J.-C., ~1500 ans, salinisation par remontée de nappe et évaporation, sels sodiques (théorie ancrée Jacobsen & Adams, 1958, contestée par Powell, 1985)) ; Maya (période classique 250-900, désintégration sociopolitique prolongée jusqu'à ~950 — Braun et al., 2023 ; sécheresses cumulées) ; Empire romain (érosion du bassin méditerranéen — rôle dans la chute débattu) ; Dust Bowl états-unien (années 1930, pic 1934-1936, malgré la technologie moderne). À l'inverse, les civilisations durables (terrasses incas, zones humides chinoises, chinampas mésoaméricaines, anthrosols précolombiens type Terra Preta) misent sur la diversification et la construction d'un sol vivant.
Réponses politiques historiques : marnage (amendement à la marne, pratique séculaire — Montgomery, 2007) ; création du Soil Erosion Service (1933) puis du Soil Conservation Service par décision du Congrès américain (27 avril 1935, sous l'impulsion de Hugh Hammond Bennett — Helms, 2010 ; Montgomery, 2007).
Cards en dialogue (6)
- Approfondi par
- Voir aussi (5)
-
- Temporalité, irréversibilités et entropie des pratiques humaines
- Cascade des coûts cachés : €0 direct → €5 civilisationnel (qui paye, et quand)
- Antifragilité : stress modéré → diversification de l'hologénome
- Histoire des sols : désastres et réussites (Croissant fertile, Nil, Terra Preta, Milpa)
- Effondrement agraire : trajectoire cumulative, pas événement
Mémoire microbienne paléoclimatique (20 000 ans)
Les communautés microbiennes portent en effet une signature héritée de conditions climatiques anciennes, qui persiste malgré les perturbations récentes. Concrètement, les proportions de carbone, d'azote et de phosphore dans les microbes varient fortement d'un sol à l'autre, sans se fondre dans une moyenne universelle : le sol se souvient de son climat de naissance. Conséquence pratique : les micro-organismes qu'on introduit, préparations ou biofertilisants, doivent franchir cette barrière de mémoire pour s'établir. La transition agroécologique compose avec cette mémoire — résilience ou inertie selon le contexte.
Science
Concept récent (Liu 2022 ; Canarini 2021 ; Liang 2025) : les communautés microbiennes du sol portent une signature stœchiométrique héritée des conditions paléoclimatiques de leur écosystème, persistante sur ~20 000 ans malgré les perturbations contemporaines — synthèse transversale (legacies thermiques, mémoire de sécheresse, mémoire écologique climatique), aucun pan isolé en source unique.
Manifestation : les ratios C:N:P microbiens varient substantiellement selon les sols et écosystèmes, autour d'une moyenne proche de 60:7:1 (Cleveland et Liptzin, 2007), sans converger vers la formule moyenne de Kirkby (≈ 100:8:2:1,5) — le sol « se souvient » de son climat de formation.
Conséquences :
- la stœchiométrie cible de Kirkby est une moyenne, pas une cible universelle ;
- la transition agroécologique doit composer avec cette mémoire (résilience ou inertie selon le contexte) ;
- les inoculants exogènes (EM, biofertilisants) doivent franchir cette barrière de mémoire pour s'établir.
Cards en dialogue (3)
Densité nutritionnelle alimentaire (sol → assiette)
Le constat est documenté — le débat porte sur le pourquoi.
Première cause : la sélection des variétés a visé le rendement, diluant les minéraux dans plus de biomasse. Viennent ensuite l'appauvrissement minéral des sols, le raffinage qui jette l'essentiel des minéraux avec le son, et la récolte trop précoce.
Les chiffres exacts restent contestés, mais la logique est robuste : en bas de la chaîne, on a rompu les cycles des minéraux du sol. Restaurer la richesse minérale du sol, c'est restaurer celle de l'assiette.
Illustration : Fig. card 112-A · Densité nutritionnelle alimentaire (sol → assiette)…
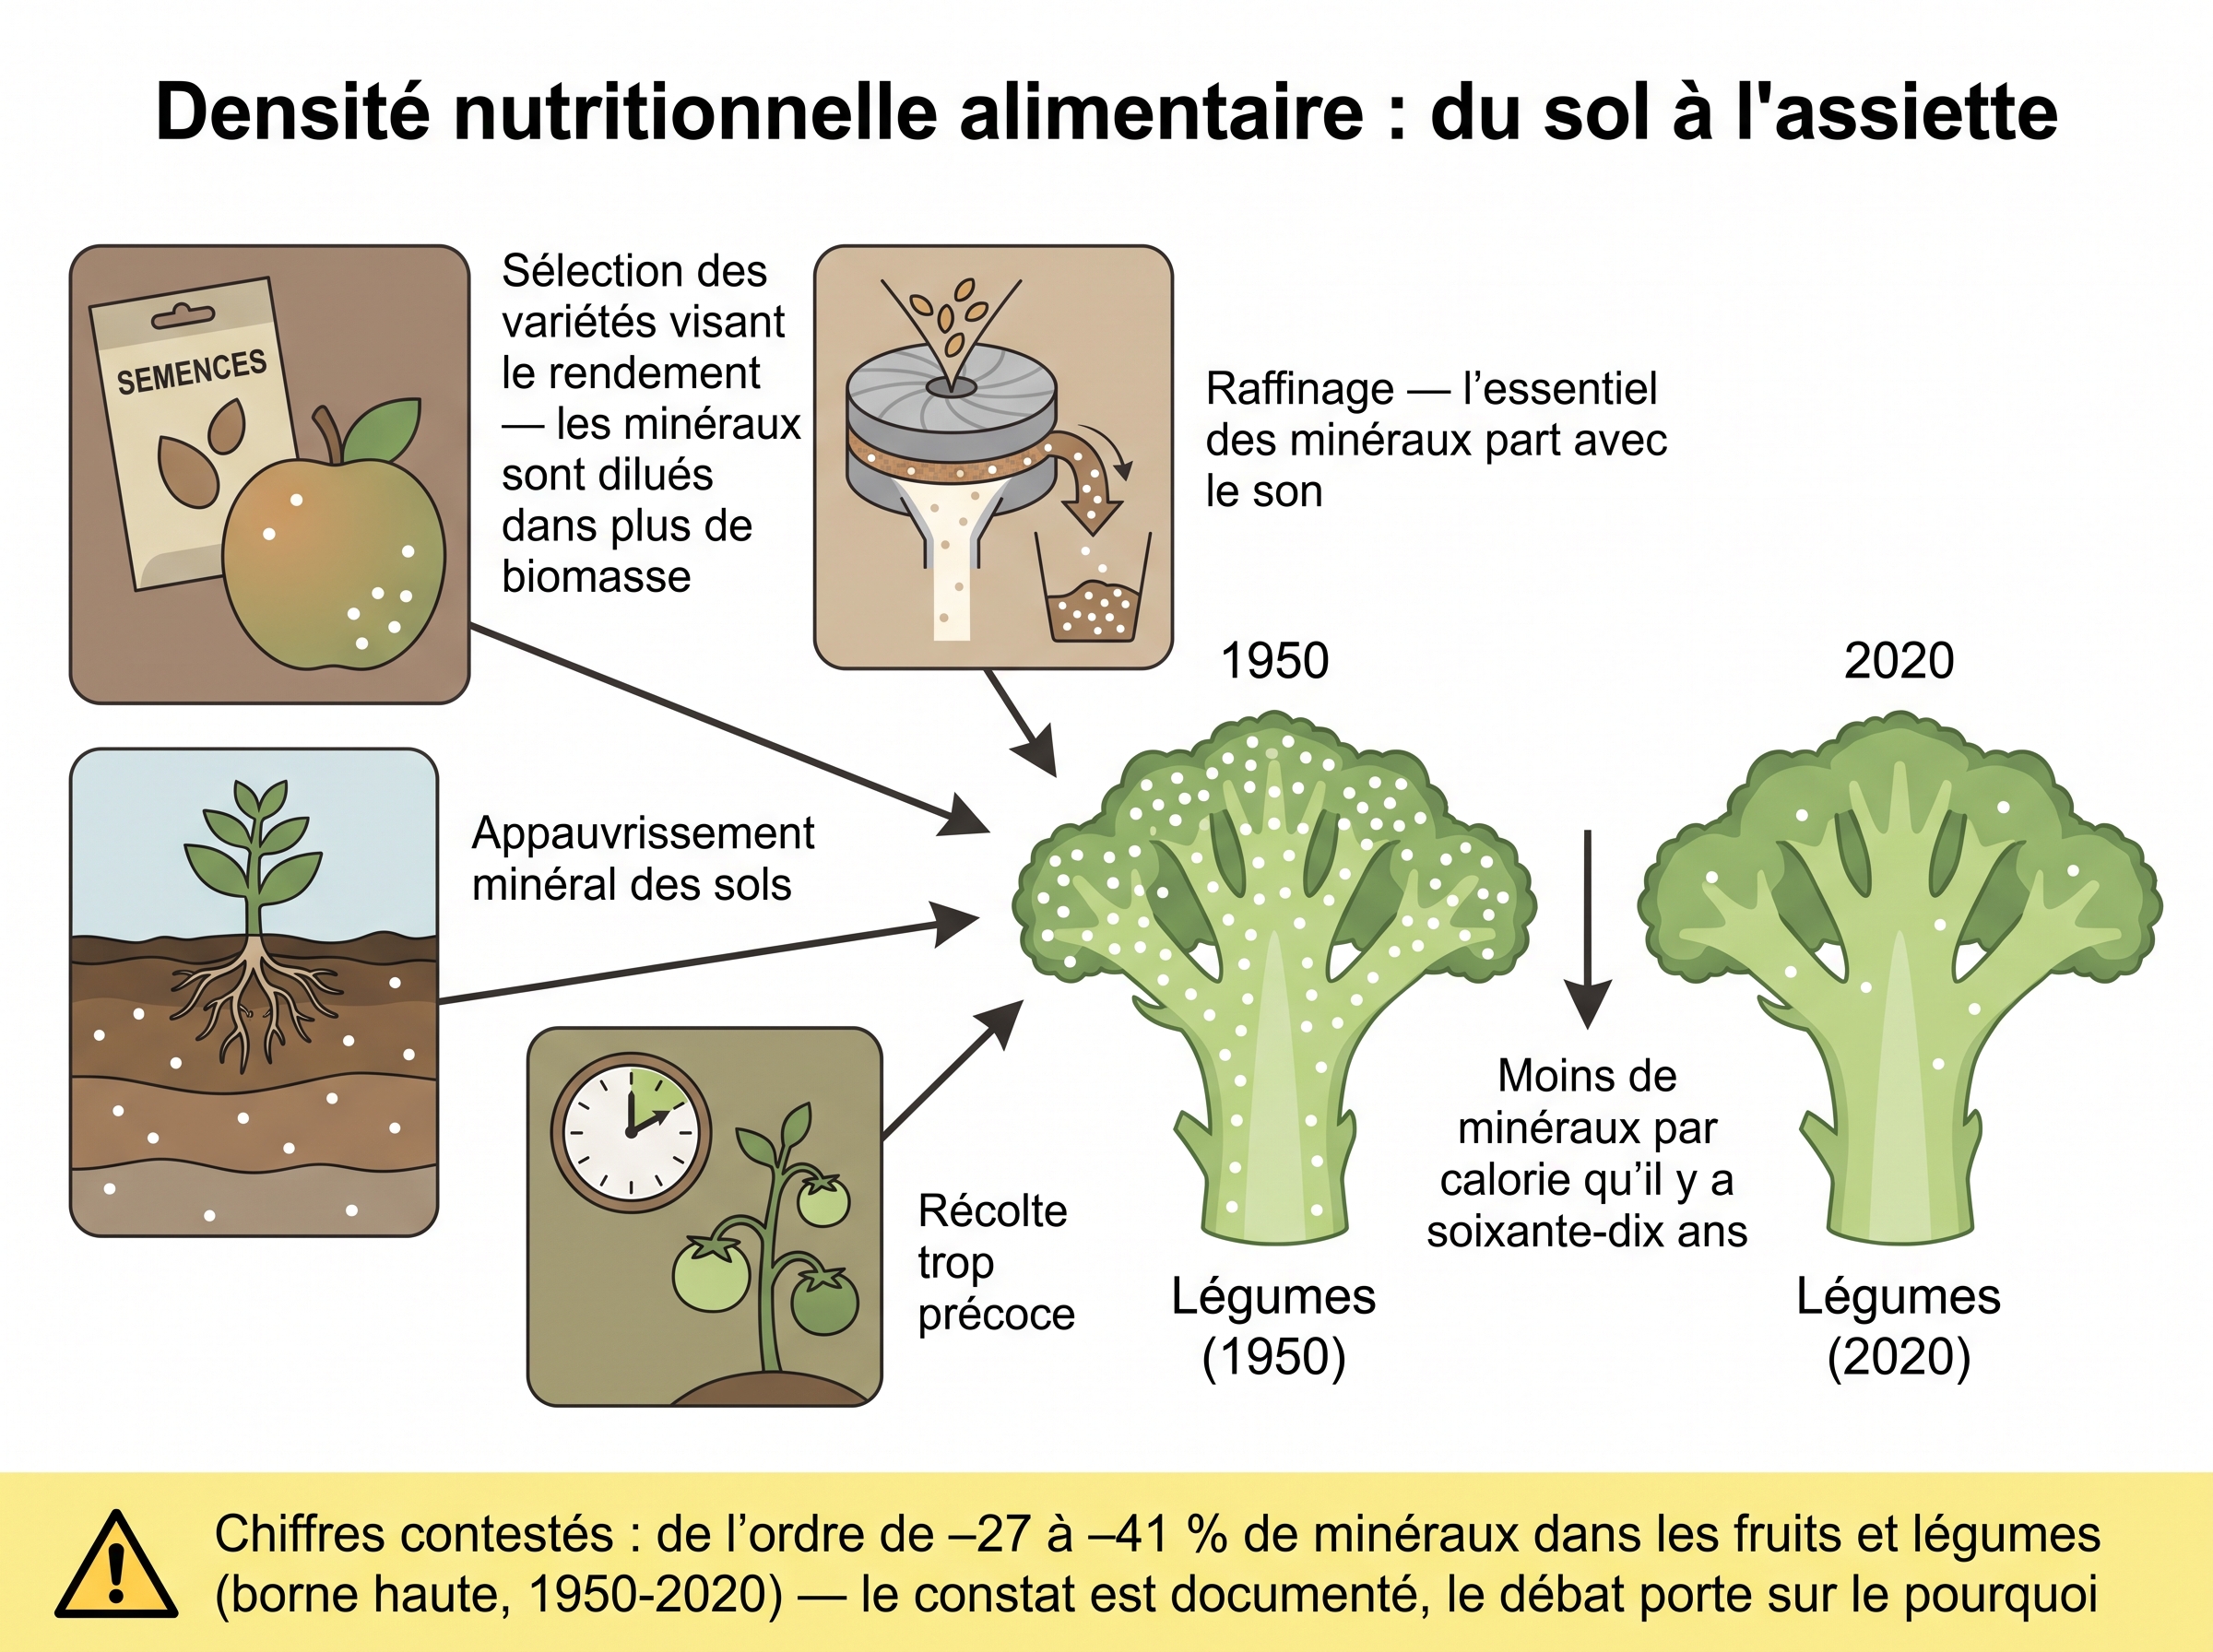
Science
Quantité de micronutriments (Mg, Ca, Fe, Zn, Cu, Mn, Se, vitamines) par calorie alimentaire. Une érosion est documentée sur 1950-2020 — de l'ordre de −27 à −41 % de minéraux dans les fruits et légumes (borne haute ; Davis 2004 rapporte des baisses plus modérées et hétérogènes, 5-40 % selon nutriments ; Mayer 2021 ; données Bionutrient Food Association — organisme non académique) — mais ces chiffres restent contestés : ils comparent des tables de composition à des décennies d'écart et ne démêlent pas l'effet de dilution variétale de la réelle déplétion des sols.
Causes hiérarchisées :
- Sélection variétale orientée rendement (effet de dilution).
- Appauvrissement minéral des sols agricoles (cycles biogéochimiques couplés rompus).
- Raffinage industriel (perte de 60-90 % des minéraux du son, du germe, de la peau).
- Récolte à maturité précoce.
Cascade santé : carences silencieuses → dysbiose et syndrome métabolique → maladies chroniques. Levier amont : restaurer la stœchiométrie minérale du sol et raisonner les amendements.
Cards en dialogue (19)
- Voir aussi (17)
-
- Socio-économique : travail, filières, risques et dépendances
- Cycle du phosphore : fixation, solubilisation biologique, mycorhizes
- Filtre mycorhizien ETM : exclusion métaux lourds et sécurité alimentaire
- Brix réfractomètre : seuils opérationnels et interprétation agronomique
- Continuum sol-aliment-santé : ratio Na/K alimentaire et mortalité cardiovasculaire
- Carence silencieuse en cobalt et transfert trophique sol-plante-microbiome humain : pendant Co du continuum sol-aliment-santé
- Paradoxe P-Zn et biofortification du zinc : pendant Zn du continuum sol-aliment-santé
- Sélénium : marge thérapeutique étroite et mimétisme sulfate : pendant Se du continuum sol-aliment-santé
- Iode : axe thyroïdien et maillon sol-plante ténu : pendant I du continuum sol-aliment-santé
- Bore : carence la plus répandue, paroi/fécondation et marge étroite : pendant B du continuum sol-aliment-santé
- Fer : chlorose, sidérophores et anémie ferriprive : pendant Fe du continuum sol-aliment-santé
- Magnésium : chlorophylle, antagonisme cationique et déclin cardiovasculaire : pendant Mg du continuum sol-aliment-santé
- Manganèse : disponibilité redox (carence ⇄ toxicité), oxydation de l'eau au PSII et défense : pendant Mn du continuum sol-plante
- Cuivre : rétention organique, transport d'électrons (plastocyanine) et accumulation cuprique : pendant Cu du continuum sol-plante
- Soufre : co-limitation N:S, acides aminés soufrés et antagonisme S-Se : pendant S du continuum sol-aliment-santé
- Résistance systémique induite
- Microbiome intestinal
Toxicité ferreuse en sols hydromorphes : stress oxydatif, mobilité Cd/As et stratégies AWD
Le même jeu d'eau déplace aussi les métaux lourds : le cadmium s'emprisonne sous l'eau puis se relâche au séchage, tandis que l'arsenic se libère dans l'inondation et s'accumule dans le grain.
Trois parades : alterner eau et assèchement pour oxyder le fer entre deux cycles, chauler pour le rendre moins soluble, et choisir des variétés qui savent se défendre. Toute la finesse est de doser l'eau pour contenir à la fois le fer et le cadmium.
Science
En sols acides engorgés (riziculture, zones humides cultivées, polders), la dissolution réductrice des oxyhydroxydes de Fe(III) libère du Fe²⁺ au-delà des seuils de tolérance des plantes. Le stress oxydatif qui en résulte se traduit par une hausse du malondialdéhyde foliaire, des dommages macromoléculaires et l'accumulation conjointe de toxines (Fe²⁺, Mn²⁺, NH₄⁺) dans les couches réductrices ; l'engorgement modifie l'architecture racinaire et limite la respiration.
Le cycle redox du fer gouverne aussi la mobilité contrastée des métaux lourds : le cadmium est immobilisé en anoxie sulfato-réductrice (précipitation de sulfures, favorisée par la remontée du pH vers la neutralité) puis remobilisé au drainage (oxydation des sulfures, baisse de pH) — comportement modulé par pH/redox/MO, tandis que l'arsenic est mobilisé en phase de réduction (dissolution des sorbants ferriques) et bioaccumule dans le riz.
Trois leviers de gestion :
- AWD (Alternate Wetting and Drying) — irrigation intermittente qui oxyde le Fe²⁺ entre cycles et stabilise les rendements, même chez les génotypes sensibles ;
- chaulage : relève le pH, abaisse la solubilité du fer, apporte Ca²⁺/Mg²⁺ atténuants ;
- sélection variétale : variétés maintenant l'homéostasie du fer (exclusion racinaire ou tolérance interne).
Le pilotage AWD doit arbitrer entre toxicité Fe (favorisée par l'inondation continue) et risque Cd (favorisé par le drainage).
Cards en dialogue (5)
- Voir aussi (4)
-
- Redox central : gradients, microzones et 'redox ladder'
- Couplages biogéochimiques Fe-P-S-N sous alternance redox : vivianite, NDFO et gouvernance des nutriments
- Bactéries ferro-réductrices : Geobacter, Shewanella et la respiration dissimilatoire du fer
- Filtre mycorhizien ETM : exclusion métaux lourds et sécurité alimentaire
Fenton-like et radicaux hydroxyles dans les sols : oxydation abiotique de la MAOM et flux CO₂ non microbien
La réaction de Fenton produit parmi les oxydants les plus puissants connus. Longtemps crue limitée aux sols très acides, elle est en réalité répandue, des minéraux du sol l'activant à acidité naturelle. Elle se déclenche à la réoxygénation : le fer accumulé réagit brutalement, oxydant une fraction notable du carbone dissous et libérant du gaz carbonique sans biologie. Dans certains sols, cette respiration chimique représente une part significative du total, selon le type de sol. Elle attaque le carbone stable, transformant des puits en sources lors des cycles sec-humide ; les modèles qui l'ignorent sous-estiment les pertes.
Science
La voie de Fenton classique (Fe²⁺ + H₂O₂ → Fe³⁺ + OH⁻ + ·OH) génère des radicaux hydroxyles parmi les plus oxydants connus. Longtemps crue cantonnée aux conditions acides (pH < 4), elle est désormais reconnue comme ubiquitaire sous sa forme hétérogène (« Fenton-like ») : magnétite, goethite et hématite activent le peroxyde d'hydrogène à pH naturel.
La production de radicaux est massive lors des pulses de réoxygénation succédant à l'anoxie : le Fe²⁺ accumulé dans les micropores (< 10 µm) réagit instantanément, oxydant 5 à 20 % du carbone organique dissous et générant un flux de CO₂ purement abiotique — jusqu'à 25 % de la respiration totale dans les sols riches en argiles ou issus de roches métamorphiques (5-10 % dans les sols volcaniques). Ces magnitudes restent des estimations dépendantes du type de sol.
Au-delà de la portée millimétrique classique, des transferts à plus longue distance sont décrits : médiation par acides organiques adsorbés sur les minéraux (radicaux centrés sur le carbone, propagation centimétrique) et électrification de contact lors de la condensation de vapeur d'eau.
Ces mécanismes déstabilisent activement la MAOM en minéralisant des composés récalcitrants (fractions aromatiques plutôt que lignine — la MAOM est dominée par des composés d'origine microbienne), transformant des puits de carbone en sources de CO₂ lors des cycles séchage-réhumectation. Implication : les modèles du cycle du carbone qui ignorent l'oxydation abiotique sous-estiment systématiquement les flux et la dynamique du carbone stable.
Cards en dialogue (8)
- Contredit
- Voir aussi (6)
-
- Redox central : gradients, microzones et 'redox ladder'
- Thermotolérance microbienne : 7 mécanismes
- Couplages biogéochimiques Fe-P-S-N sous alternance redox : vivianite, NDFO et gouvernance des nutriments
- Effet Birch : pulse de minéralisation à la réhumectation des sols secs
- Seuils de fonctionnement du carbone : le sol non-répondant et la concentration
- La MOS comme géo-batterie : le carbone, stock d'électrons
KSB et altération biologique des silicates : acidolyse, chélation et synergie AMF-bactéries
L'altération des roches silicatées — feldspaths, micas — était vue comme lente ; elle apparaît aujourd'hui comme une ingénierie biologique qui accélère fortement la libération du potassium, du magnésium ou du calcium. Trois mécanismes se combinent : des acides dissolvant la roche près des racines, la capture de cations brisant le réseau cristallin, et des forces mécaniques fissurant la roche. La synergie champignons-bactéries décuple la mobilisation ; les lichens pionniers amorcent la formation du sol sur la roche nue. Associer ces bactéries à un apport de roche réduit fortement les besoins en engrais potassique.
Science
L'altération des minéraux silicatés (feldspaths, micas, illite), longtemps décrite comme un lent processus géochimique, apparaît depuis 2020-2025 comme une ingénierie biogéochimique active : les micro-organismes solubilisateurs accélèrent la libération des cations (K⁺, Mg²⁺, Ca²⁺), parfois de plusieurs ordres de grandeur (en contexte expérimental).
Trois mécanismes complémentaires :
- Acidolyse : les KSB (Bacillus mucilaginosus, edaphicus, circulans, Pseudomonas, Paenibacillus, Arthrobacter…) et les hyphes fongiques sécrètent des acides organiques de faible poids moléculaire (citrique, tartrique, oxalique, gluconique) qui acidifient la rhizosphère et dissolvent les silicates. L'acide citrique, très efficace sur l'orthose, est maximal près des exsudats racinaires (dépendance au carbone).
- Chélation : ces acides se lient aux cations de structure (Al³⁺, Fe³⁺), brisent le réseau cristallin et libèrent le K⁺ structural.
- Forces mécaniques + exopolysaccharides : les hyphes induisent des microfissures (surface d'attaque accrue) ; les biofilms bactériens concentrent acides et chélateurs au contact du minéral.
Synergie AMF-bactéries : la co-inoculation potentialise la mobilisation du K par rapport à une inoculation seule (Priyadharsini & Muthukumar, 2016). Les lichens pionniers initient la pédogenèse via précipitation d'oxalates Ca/Mg sur grès, basalte, granit. Levier régénératif : KSB + feldspath réduit de 50 % les doses d'engrais potassiques sans perte de rendement (Madar 2021).
Cards en dialogue (6)
- Voir aussi (5)
-
- Amendements minéraux structurants : levier minéral vs levier organique
- Pompe oxalate-carbonate : séquestration C inorganique pérenne
- Triade Fe/Mo/Co pour la nitrogénase : stoechiométrie micronutritionnelle de la fixation biologique de l'azote
- Cycle du phosphore : fixation, solubilisation biologique, mycorhizes
- Legacy phosphorus : le trésor enfoui des sols agricoles
Continuum sol-aliment-santé : ratio Na/K alimentaire et mortalité cardiovasculaire
Plus ce rapport penche du mauvais côté, plus le risque cardiovasculaire grimpe.
Les grandes études convergent : un régime riche en potassium protège, un excès de sel par rapport au potassium pèse. Or l'alimentation moderne cumule les deux fautes — trop de sel ajouté, et des sols qui fournissent moins de potassium aux plantes.
L'appauvrissement potassique des sols ajoute une pression de fond — une association observée, pas une causalité prouvée. Restaurer la fertilité potassique du sol n'est donc pas qu'agronomique : c'est, potentiellement, un levier de santé publique.
Science
Le ratio molaire Na:K alimentaire fait l'objet d'une recommandation OMS (≤ 1) et est soutenu par les méta-analyses comme un meilleur prédicteur de mortalité cardiovasculaire que les apports individuels en sodium ou potassium. Les méta-analyses 2020-2024 (Zwager 2023, Liu 2024, Idrissi 2023, Gan 2024) convergent : un ratio Na/K plus élevé est associé à un risque accru d'événements cardiovasculaires et de mortalité — les tailles d'effet rapportées sont fortes (de l'ordre de +50 % selon le contraste de quantiles) mais dépendent de la population et de la méthode (rappel diététique vs urines de 24 h), et la relation dose-réponse n'est pas strictement linéaire. À l'inverse, un apport élevé en K est associé à une réduction du risque (Mosallanezhad 2023).
Recommandations OMS / AHA : Na:K molaire ≤ 1, soit < 2 000 mg Na/jour et ≥ 3 510 mg K/jour (4 700 mg pour l'AHA) — objectifs difficiles à atteindre dans l'alimentation moderne — transformation industrielle et sel ajouté en tête, l'appauvrissement potassique des sols ajoutant une pression de fond. Entre 1999 et 2015, les teneurs en K ont diminué dans les viandes, fruits, légumes et céréales aux États-Unis, en parallèle de pratiques de fertilisation où les prélèvements excèdent les apports (association, non causalité établie) ; l'élévation du CO₂ atmosphérique aggrave cette dilution (Yamdeu 2021).
Le continuum sol-aliment-santé prend ici une dimension épidémiologique : la fertilité potassique régénérative du sol n'est pas qu'agronomique, c'est un levier de santé publique cardiovasculaire.
Cards en dialogue (11)
- Approfondit
- Voir aussi (9)
-
- Axe sucre simple → dysbiose intestinale → maladie cardiométabolique
- Densité nutritionnelle alimentaire (sol → assiette)
- BCSR vs SLAN : doctrine équilibre cationique et limites du système Albrecht
- Successions microbiennes de la fermentation lactique : continuum sol -> récipient -> tube digestif
- Exposome chimique alimentaire et Reactobiome : le microbiote comme filtre des xénobiotiques
- Acides gras à chaîne courte (AGCC) : pivot fibres → barrière → immunité → axe intestin-cerveau
- Antagonismes et synergies cationiques (Ca-Mg-K-Na) : la doctrine de l'équilibre ionique
- Microplastiques dans les sols : un contaminant émergent structurel
- PFAS : les polluants éternels du recyclage agricole
BCSR vs SLAN : doctrine équilibre cationique et limites du système Albrecht
La science récente tranche : les proportions exactes n'ont pas démontré leur pouvoir prédictif — le rendement dépend peu des ratios précis tant que chaque élément est présent en quantité suffisante.
Mais l'antagonisme est réel : un excès de calcium ou de magnésium peut bloquer l'absorption du potassium, même mesuré suffisant. La voie moderne est hybride : soigner l'acidité d'abord, surveiller les excès, et lire les flux plutôt que les stocks.
Science
Deux philosophies historiques s'opposent en gestion de la fertilité cationique.
- BCSR — Base Cation Saturation Ratio (système Albrecht, 1940-50) : préconise des proportions idéales entre cations Ca/Mg/K sur la CEC, typiquement Ca:K = 13:1 et Mg:K = 2:1, avec un Ca:Mg > 2:1 réputé optimal pour la structure. Largement pratiqué en agriculture biologique.
- SLAN — Sufficiency Levels of Available Nutrients : axé sur des seuils critiques de concentration de chaque nutriment, indépendamment de leurs proportions.
La recherche 2020-2025 (Murrell 2020, Soto 2022, Culman 2021, Antonângelo 2024) tranche : la doctrine BCSR stricte n'a pas de validité scientifique stricte — le rendement des cultures est souvent indépendant des ratios exacts Ca/Mg tant que les niveaux individuels sont suffisants.
Cependant, l'antagonisme cationique reste réel : un excès de Ca et Mg peut inhiber l'absorption de K même avec un K échangeable mesuré « suffisant » (Yang et al., 2024). L'indice (Ca+Mg)/K émerge comme prédicteur prometteur — validité en cours de confirmation — plus pertinent que le ratio Ca/Mg seul. Le ratio K:Mg ≈ 1:1 est proposé comme favorable dans certains contextes, sans consensus universel.
La recherche moderne propose une approche hybride :
- Priorité au pH par chaulage, qui amène souvent naturellement les saturations « idéales » sans viser des ratios précis.
- Surveillance des excès de Mg ou Ca déclenchant des carences K induites.
- Intégration de l'approche par flux (cinétique du transfert non-échangeable → solution) plutôt que pilotage par stocks instantanés.
- Cas des sols acides : un ratio Ca/Mg proche de 1:1 y optimise la biodisponibilité du phosphore et limite la toxicité ferreuse (Soto et al., 2022 ; Yao et al., 2024) — exception pragmatique où viser un ratio garde un sens, en complément du chaulage.
Note historique : le débat BCSR/SLAN prolonge un différend centenaire entre deux héritages du XIXe siècle — le minéralisme de Justus von Liebig (loi du minimum, retour des sels extraits) et l'écologie du sol portée par Albert Howard et William Albrecht (compost, équilibre biologique). La réponse contemporaine n'est pas l'un ou l'autre, mais la lecture des flux biologiques par-dessus les stocks chimiques — ce que cette card développe.
Pour les producteurs biologiques pratiquant l'Albrecht, la doctrine n'invalide pas leur outil mais clarifie : viser une cohérence pH + niveaux individuels + indice (Ca+Mg)/K, plutôt qu'une précision excessive sur des ratios stricts qui n'ont pas démontré leur prédictivité.
Cards en dialogue (15)
- Approfondi par
- Voir aussi (13)
-
- Stœchiométrie CNPS et modèle AMG
- Amendements minéraux structurants : levier minéral vs levier organique
- Quand amender la fraction minérale d'un sol ? : arbre de décision
- Diagnostic plante : pH et EC de sève foliaire/pétiolaire comme signatures nutritionnelles précoces
- Profil sol calcaire/argilo-calcaire : calcium structurant, risques de blocages P/oligo
- Cycle du potassium : minéraux primaires, KSB et biodisponibilité dans les sols vivants
- Calcaire actif : protocole et interprétation pour sols calcaires
- Enhanced Rock Weathering (ERW) : altération minérale accélérée
- Continuum sol-aliment-santé : ratio Na/K alimentaire et mortalité cardiovasculaire
- Doctrines fermentaires KNF vs JADAM : matrice des oppositions de Cho Han Kyu et Cho Youngsang
- Paradoxe P-Zn et biofortification du zinc : pendant Zn du continuum sol-aliment-santé
- Magnésium : chlorophylle, antagonisme cationique et déclin cardiovasculaire : pendant Mg du continuum sol-aliment-santé
- Antagonismes et synergies cationiques (Ca-Mg-K-Na) : la doctrine de l'équilibre ionique
Mémoire redox et noyaux de réduction persistants : la dimension temporelle des microzones anoxiques
C'est la mémoire du sol. Elle signifie que la dénitrification, voire la formation de méthane, peut continuer en filigrane dans un sol apparemment sec, et que la rouille continue de se dissoudre en silence. Le sol ne s'arrête jamais entre deux pluies : il respire par à-coups.
Un sol riche en matière organique amortit ces oscillations ; un sol pauvre les amplifie. Cette mémoire change notre façon de lire le terrain : aéré ne veut pas dire uniformément oxygéné.
Science
La mémoire redox est la capacité d'un sol à conserver des micro-domaines anoxiques plusieurs semaines après drainage et ré-aération globale. Découverte 2023 (Dorau et al.) via les redoxtrons (Eh 1D + imagerie optode O₂ 2D) : de petits noyaux anoxiques (~0,25 cm²) maintiennent un Eh < −100 mV pendant 20-23 jours après saturation, réservoirs de conditions réductrices au sein d'un sol apparemment aéré.
Ce concept renverse la dichotomie « sol saturé vs sol drainé » : un sol bien drainé n'est pas uniformément aéré ; il conserve une mosaïque de noyaux réduits dont la persistance dépend de la connectivité des pores, de la teneur en MO et de l'activité microbienne locale.
Conséquences mécanistiques :
- méthanogenèse possible dans des sols globalement secs ou bien drainés ;
- dénitrification persistant au-delà de l'épisode hydrique ;
- processus anaérobies (dissolution réductive du Fe, ferro-réduction microbienne) opérant en filigrane ;
- couplage avec le mécanisme Fenton-like aux interfaces : minéralisation cyclique du carbone ancien (la dissolution réductive libère le C piégé dans les complexes Fe-MO, le Fenton-like l'oxyde à la réoxygénation).
Les oscillations redox accélèrent la minéralisation du C organique — dissolution réductive du fer et production de radicaux •OH à chaque cycle (Chen et al., 2021 ; Dorau et al., 2023). La poising capacity élevée (forte MO + CEC) tamponne ces oscillations, la faible les amplifie. Doctrine : les sols ne sont pas statiques entre deux pluies — ils opèrent une « respiration redox » continue.
Cards en dialogue (10)
- Approfondi par
- Voir aussi (8)
-
- rH2, capacité redox et poising capacity : au-delà de l'Eh ponctuel
- Bascule paradigme microzones anoxiques : demande biologique vs géométrie de l'agrégat
- Mémoire du sol et auto-régulation suppressive : la dimension transgénérationnelle de la résilience pédologique
- Profil sol hydromorphe/organique : redox bas, émissions, gestion de l'eau centrale
- Eh terrain : sondes redox, gradient mV/cm et méthode in situ
- Mémoire microbienne paléoclimatique (20 000 ans)
- Le sol comme incubateur évolutif : microsites anoxiques, reliques de l'Archéen et matière noire microbienne
- La MOS comme géo-batterie : le carbone, stock d'électrons
Bascule paradigme microzones anoxiques : demande biologique vs géométrie de l'agrégat
C'est faux : l'asphyxie apparaît là où les microbes consomment le plus, c'est-à-dire là où la matière organique est concentrée.
Une motte peut ainsi être plus oxygénée en son centre qu'à sa surface, si le carbone est en périphérie. Ce n'est pas la forme qui décide, c'est l'appétit : plus la nourriture abonde, plus la respiration dépasse l'arrivée d'air, et plus la zone devient asphyxiée.
Pour le terrain, cela change tout : on ne cartographie plus les mottes mais les zones riches en matière organique. Un apport localisé de compost crée volontairement des foyers sans oxygène — non pas une panne, mais le signe d'une vie microbienne qui travaille.
Science
Pendant des décennies, le modèle dominant stipulait que l'anoxie en sol structuré se localise principalement au cœur des agrégats par contrainte de diffusion physique de l'oxygène (modèle géométrique classique : O₂ diffuse de la périphérie vers le centre, créant un gradient radial décroissant). Les recherches 2020-2025 (Lacroix et al.) renversent ce paradigme : l'anoxie en sol structuré n'est pas pilotée par la géométrie de l'agrégat mais par la demande biologique en O₂. La quantification de gènes anaérobies montre que la prévalence des microsites anoxiques est corrélée à 80 % avec la concentration en carbone organique local plutôt qu'avec la position dans l'agrégat. C'est la respiration microbienne intense (demande) qui surpasse l'apport en O₂ (offre), où qu'elle se trouve géométriquement.
Conséquences :
- l'intérieur des agrégats peut présenter une preuve d'anoxie égale ou inférieure à celle du sol environnant si le C est concentré en périphérie ;
- les microsites anoxiques suivent la distribution spatiale des ressources carbonées, pas la radialité ;
- la texture fine (argileuse) augmente la prévalence des microzones par limitation du transport gazeux, pas par géométrie d'agrégat ;
- un macropore riche en MO peut être plus anoxique qu'un micropore pauvre.
Implication doctrinale : les schémas pédagogiques classiques « anoxie = centre d'agrégat » sont à réviser.
Pour les futures fiches sols hydromorphes, drilosphère, rhizosphère, la cartographie des microzones anoxiques doit suivre la cartographie du C plutôt que la cartographie des agrégats. Pour le pilotage agronomique, les apports localisés de MO (résidus en surface, semis direct) créent des « hotspots » de microzones anoxiques qu'il faut interpréter comme tels — non pas comme un dysfonctionnement, mais comme un biais de la demande en O₂ vers les zones où le carbone est mobilisable.
Cards en dialogue (11)
- Approfondit
- Voir aussi (8)
-
- Couplages biogéochimiques Fe-P-S-N sous alternance redox : vivianite, NDFO et gouvernance des nutriments
- Profil sol hydromorphe/organique : redox bas, émissions, gestion de l'eau centrale
- Biochar : architecte de sol (habitat, CEC, C stable)
- Calcaire actif : protocole et interprétation pour sols calcaires
- Mémoire redox et noyaux de réduction persistants : la dimension temporelle des microzones anoxiques
- Films IRIS et imagerie redox 2D : cartographier les microzones réductrices au-delà des électrodes ponctuelles
- Le sol comme incubateur évolutif : microsites anoxiques, reliques de l'Archéen et matière noire microbienne
- L'holobionte ingénieur de sa niche : le vivant installe ses conditions
Films IRIS et imagerie redox 2D : cartographier les microzones réductrices au-delà des électrodes ponctuelles
On enterre une plaque recouverte d'oxydes de fer, et là où le sol manque d'air, la rouille se décolore — laissant une carte des zones asphyxiées.
Le film accumule les épisodes de manque d'air sur toute sa durée de pose : il intègre le temps, là où l'électrode ne saisit qu'un instant. Il révèle une hétérogénéité fine, du millimètre au centimètre.
Limites : il dit où ça se produit, pas à quel point c'est intense, et il ne donne rien en temps réel. Mais pour suivre l'effet des couverts ou de l'irrigation sur la répartition de l'oxygène, c'est un outil de terrain simple et parlant.
Science
Les films IRIS (Indicator of Reduction in Soils) sont des plaques enduites d'oxydes de fer ou de manganèse synthétiques, déployées dans le sol pour cartographier les conditions redox réductrices sur une surface (de quelques cm² à plusieurs dm²). En conditions réductrices, bactéries ferro-réductrices ou réactions abiotiques dissolvent localement les oxydes, créant un motif visible (zones décolorées) qui saisit l'hétérogénéité millimétrique à centimétrique des microzones réductrices — là où l'électrode Pt ponctuelle est parfois trompeuse. (Les redoxtrons combinent en laboratoire Eh 1D et imagerie optode O₂ 2D pour visualiser en temps réel la formation des noyaux de réduction.)
Avantages :
- saisie de la variabilité spatiale des conditions redox (vs représentativité limitée d'une électrode ponctuelle) ;
- intégration temporelle (le film accumule les épisodes réducteurs sur sa durée de pose) ;
- coût modéré, adapté à la pédologie de terrain.
Limites :
- pas de mesure de l'intensité absolue de Eh (seulement présence/absence de conditions assez réductrices pour mobiliser Fe ou Mn) ;
- pas de temps réel (image consolidée à la récupération du film) ;
- sensibilité au pH et au carbone local.
Usage régénératif : déploiement saisonnier sur profils pour caractériser la mémoire redox et suivre l'effet de pratiques (couverts, MAFOR, AWD) sur la spatialisation des microzones.
Cards en dialogue (8)
- Approfondit
-
- Profil sol hydromorphe/organique : redox bas, émissions, gestion de l'eau centrale
- Infiltration lente / engorgement (profil)
- rH2, capacité redox et poising capacity : au-delà de l'Eh ponctuel
- Eh terrain : sondes redox, gradient mV/cm et méthode in situ
- Mémoire redox et noyaux de réduction persistants : la dimension temporelle des microzones anoxiques
Agroforesterie biominérale tropicale : design des systèmes oxalogènes pour séquestration C pérenne
Le système se conçoit comme un tout : choisir les bonnes espèces, planter dense, gérer la litière, apporter du calcium, et surtout maintenir la proximité entre l'arbre et les microbes qui font la chimie. Une synergie à trois — plante, champignons, bactéries.
Les chiffres de capture rapportés sont spectaculaires mais encore à confirmer, vraisemblablement des stocks cumulés plutôt que des flux annuels. L'intérêt va au-delà du carbone : sols dégradés restaurés, chaulage naturel, phosphore libéré, eau retenue.
Science
Design agroforestier qui mobilise intentionnellement la voie oxalate-carbonate (VOC) comme levier de séquestration du carbone à très longue durée (siècles à millénaires, selon le maintien des conditions : pH, présence d'oxalotrophes). Distinct du simple choix d'arbres oxalogènes — c'est un système intégré qui optimise simultanément :
- sélection d'espèces oxalogènes adaptées au contexte (Iroko Milicia excelsa pour l'Afrique tropicale acide, Brosimum alicastrum pour le Yucatán karstique, Tamarindus indica pour Madagascar ; candidates tempérées Pinus massoniana, Quercus serrata) ;
- densité de plantation (jusqu'à 18× la forêt sauvage dans les jardins familiaux yucatèques) ;
- gestion de la litière (l'exportation massive comme fourrage réduit fortement le potentiel de minéralisation) ;
- apports de calcium (altération du bedrock + sources secondaires comme les poussières sahariennes au Yucatán) ;
- proximité biologique entre plantes oxalogènes et microflore oxalotrophe (rhizosphère, litière) ;
- synergies tripartites (plante + champignons saprotrophes + bactéries oxalotrophes Cupriavidus, Oxalobacter, Actinobacteria).
Performance rapportée : un Brosimum alicastrum à 400 ind/ha afficherait une capture de l'ordre de 10⁵ kg CO₂/ha (biomasse + biominéralisation) — valeur à confirmer (vraisemblablement un stock cumulé, pas un flux annuel) ; un Iroko de 80 ans accumule ~500 kg de C inorganique dans les tissus + ~1 000 kg dans le sol environnant. Bénéfices co-systémiques : restauration de sols dégradés (sableux, karstiques, miniers), chaulage naturel (pH 5,1 → 7-9), mobilisation du P par complexation du Ca, hausse de la rétention d'eau et de la CEC.
S'inscrit dans une stratégie carbone à voies empilées : organique courte (MAOM), inorganique pérenne (VOC), géochimique (ERW).
Cards en dialogue (8)
- Voir aussi (6)
-
- Profil sol limoneux : battance/érosion, priorité couverture et biofilms de surface
- 450 Ma de coévolution plante-microbe : cadre temps-profond trois piliers
- Biochar : architecte de sol (habitat, CEC, C stable)
- MRV crédits carbone biominéraux : certification de la séquestration C inorganique pérenne
- Carbonates pédogéniques – cadre intégré
- L'arbre moteur du cycle de l'eau : recyclage des précipitations et rivières volantes
MRV crédits carbone biominéraux : certification de la séquestration C inorganique pérenne
Pour les crédits carbone « biominéraux », qui stockent le carbone sous forme minérale, la promesse est un stockage durable sur des temps bien plus longs que le carbone organique, plus sensible à la décomposition.
Mais cette permanence a un prix : mesurer le carbonate formé, distinguer celui qui est réellement nouveau de celui déjà présent dans la roche, vérifier que le stock ne se dissout pas ailleurs. De nouveaux outils combinent modèles et mesures directes pour réduire l'incertitude.
Sans règles MRV dédiées à ces puits minéraux, ils restent invisibles aux financements carbone, alors qu'ils figurent parmi les stockages les plus pérennes.
Science
Le cadre MRV (Measurement, Reporting, Verification) appliqué aux crédits carbone biominéraux pose des défis distincts de ceux des crédits sur biomasse aérienne ou C organique du sol. Contrairement aux puits organiques (sujets à décomposition microbienne et aux cycles séchage-réhumectation), les puits inorganiques pédogènes (VOC : siècles à millénaires — Rowley et al., 2016) et géochimiques (ERW : altération silicatée ≥ 10⁵ ans — Beerling et al., 2020) offrent une permanence bien supérieure mais soulèvent des questions propres :
- Mesure : quantifier le CaCO₃ pédogène (incubation, dosage isotopique, modélisation de transport réactif), avec des protocoles adaptés aux échelles spatio-temporelles (protocoles : Altinalmazis-Kondylis et al., 2025 ; validation MRV par bilan de masse : Reershemius et al., 2023) ;
- Rapportage : distinguer le carbonate de néoformation (additionnel) du carbonate hérité du substrat (non additionnel) ; la VOC produit un CaCO₃ pédogène isotopiquement différenciable du CaCO₃ géologique ;
- Vérification : modéliser flux et stocks à l'échelle de la parcelle/exploitation, en intégrant les cycles karstiques de carbonatation-décarbonatation (Rowley, 2016 ; limite à intégrer doctrinalement).
Innovations émergentes : approches hybrides couplant modèles biogéochimiques et mesures directes pour réduire l'incertitude et valider l'additionnalité (idem — protocoles ancrés sur Altinalmazis-Kondylis 2025) ; certificats basés sur la durée de stockage, pas seulement la quantité (Mengis 2023). Sans standards MRV biominéraux dédiés, les voies VOC et ERW restent invisibles aux financements carbone — alors qu'elles offrent les puits les plus pérennes.
Cards en dialogue (10)
- Approfondi par
- Voir aussi (8)
-
- Coût réel de l'énergie fossile et 'esclaves énergétiques'
- Cycle du carbone : de la photosynthèse à la MAOM
- Cascade des coûts cachés : €0 direct → €5 civilisationnel (qui paye, et quand)
- Soil Continuum Model (SCM) : fin du paradigme de l'humification, necromasse microbienne et fractions fonctionnelles MAOM/POM
- Carbonates pédogéniques – cadre intégré
- Agroforesterie biominérale tropicale : design des systèmes oxalogènes pour séquestration C pérenne
- Modèle brésilien FBN soja : enseignements et limites d'une transition continentale réussie ET ambivalente
- Financement de la séquestration carbone : Label Bas Carbone, CRCF et PSE
Diversité fongique dual rôle producteur/régulateur : les champignons comme acteurs ambivalents des cycles biogéochimiques
Prenez l'oxalate, une molécule qu'ils sécrètent et qui aide à fixer du carbone dans les sols calcaires : selon les espèces, certaines en produisent, d'autres le décomposent avant que les bactéries associées ne le minéralisent. Le système se comporte tantôt comme une pompe (la production domine), tantôt comme un régulateur (production et dégradation s'équilibrent), selon la communauté fongique et le milieu. Ce double rôle, encore hypothétique pour d'autres cycles, invite à voir les champignons comme des acteurs dynamiques, dont la fonction dépend de leur communauté et du contexte.
Science
Paradigme émergent qui nuance la vision classique des champignons comme « producteurs spécialisés » dans les cycles biogéochimiques. Les travaux 2020-2024 (Hervé et al. 2021 sur Tamarindus indica, 23 genres documentés) montrent que beaucoup d'espèces fongiques jouent simultanément un rôle dual — production et régulation/dégradation — d'un même métabolite ou minéral.
Cas-type : la voie oxalate-carbonate. Les champignons, classiquement décrits comme producteurs d'oxalate (oxalogenèse), agissent aussi comme régulateurs du pool disponible, certaines espèces dégradant l'oxalate (oxalolyse) avant minéralisation par les bactéries oxalotrophes. Implications :
- la cinétique de la VOC dépend de l'équilibre dynamique oxalogenèse / oxalolyse au sein de la communauté ;
- la composition du microbiome fongique détermine si le système fonctionne en pompe (producteurs dominants) ou en régulation (équilibre) ;
- les conditions (humidité, pH, présence de bactéries oxalotrophes) modulent le ratio production/dégradation.
L'extension à d'autres cycles (mycorhization, acides organiques, glomaline) reste hypothétique mais cohérente. Doctrine : les champignons ne sont pas des « machines spécialisées » mais des acteurs régulateurs dynamiques, dont la fonction dépend de la communauté et du contexte.
Cards en dialogue (8)
- Voir aussi (7)
-
- Cycle du carbone : de la photosynthèse à la MAOM
- Redondance fonctionnelle et résilience coévolutive (H5/DP4)
- Glomaline : glycoprotéine fongique et stockage C profond
- Scavenging vs Mining : stratégies fongiques d'acquisition des nutriments dans le sol
- Auxotrophie et co-évolution : le virage lipidique CMA-plante comme signature de symbiose obligatoire
- Pompe oxalate-carbonate : séquestration C inorganique pérenne
- Microbiome du sol
Top-down vs bottom-up : doctrine de régulation des communautés microbiennes du sol
Par en dessous, la nourriture : les sucres libérés par les racines et la matière organique décident qui peut se multiplier. Par en haut, la prédation : des prédateurs microscopiques (protistes), de minuscules vers (nématodes) et la petite faune mangent des bactéries, empêchant les plus voraces de tout envahir, entretenant la diversité et relâchant des nutriments dans leurs excréments. Un sol riche en matière organique mais dépourvu de ces prédateurs peut donc se retrouver dominé par quelques bactéries opportunistes. La stabilité et la capacité de rebond reposent sur ces deux leviers à la fois : nourrir les microbes et préserver la chaîne de prédateurs (couverts, non-travail du sol, arrêt des fongicides).
Science
La régulation des communautés microbiennes du sol obéit à deux dynamiques complémentaires :
- Bottom-up : la disponibilité des ressources contrôle composition et abondance (« la nourriture détermine ») : exsudats racinaires et matière organique pilotent la croissance bactérienne et fongique, qui structure les niveaux trophiques supérieurs.
- Top-down : la pression de prédation contrôle diversité et stabilité : protistes, nématodes bactérivores et mésofaune exercent une régulation descendante qui maintient la diversité bactérienne, freine les espèces opportunistes et libère des nutriments par excrétion (boucle microbienne).
Les travaux 2020-2026 (Jeanbille 2024, Jiang 2023, Bodur 2024) érigent cette dualité en clé de la stabilité et de la résilience des écosystèmes souterrains. Implications :
- la diversité bactérienne effective émerge de l'équilibre ressources × prédation — un sol riche en MO mais pauvre en prédateurs voit s'installer des dominances opportunistes ;
- la résilience dépend de la connectivité des deux flux, pas d'un seul ;
- les pratiques régénératives doivent piloter les deux leviers : apporter du C labile (bottom-up) et préserver/restaurer les niveaux trophiques supérieurs (top-down via couverts, non-travail, arrêt des fongicides).
Ce cadre dual structure la doctrine microbiome au-delà des seuls protistes, jusqu'à toute la chaîne (bactéries-protistes-nématodes-mésofaune-macrofaune).
Cards en dialogue (8)
- Approfondit
- Voir aussi (6)
-
- Redondance fonctionnelle et résilience coévolutive (H5/DP4)
- Quorum sensing dans la rhizosphère : communication bactérienne, perception végétale, biofilms
- Boucle microbienne du sol : protozoaires, paradoxe fonctionnel et minéralisation pilotée
- Nématodes : guildes trophiques, indice de Bongers et diagnostic
- Microorganismes prédateurs indigènes (IPMO) : la capture ciblée par appât insecte
- Biofumigation : glucosinolates des Brassica → isothiocyanates, suppression des bioagresseurs telluriques
Bio-indication précoce du microbiome (métabarcoding multi-marqueurs) : détection des dégradations avant manifestation visuelle
Les premiers à réagir sont les protistes, ces microbes prédateurs en bout de chaîne alimentaire, puis les champignons et les bactéries. On suit des ratios indicateurs, la diversité, et des espèces sentinelles qui disparaissent en premier.
Limites : des biais de mesure, des bases de données encore incomplètes, et une lecture relative sans quantification absolue. Mais le coût baisse vite, et l'outil se place en complément des analyses classiques, pour alerter tôt.
Science
Le métabarcoding multi-marqueurs (16S bactéries, 18S protistes/nématodes, ITS champignons) émerge comme outil de diagnostic précoce des dégradations du sol : il signale des déséquilibres microbiologiques avant leur manifestation visuelle ou la dérive des paramètres physico-chimiques classiques.
Hiérarchie de sensibilité : les protistes (18S) sont le compartiment le plus sensible aux engrais azotés de synthèse, devant les bactéries (Zhao 2019) — du fait de leur position trophique terminale (amplification), de leur rôle d'espèces clés de voûte et de leur cinétique rapide. Le métabarcoding suit aussi :
- des ratios indicateurs — Colpodea/Spirotrichea (sols labourés vs stables), ratio F/B (statut trophique), abondance des Cercozoa (santé rhizosphérique) ;
- la diversité α et β — une chute de la diversité de Shannon comme alerte avant la baisse de productivité ;
- des taxons sentinelles — disparition des AMF, baisse des bactéries mycorhizosphériques.
Limites (Geisen 2017, Bharti 2024) : biais d'amplification PCR selon les amorces ; bases de données incomplètes (eucaryotes microbiens) ; mesure relative, sans quantification absolue ; pas d'information fonctionnelle directe (métagénomique requise). Innovations 2020-2025 : multi-marqueurs, spikes internes, métatranscriptomique.
Usage régénératif : échantillonnage annuel ou bisannuel sur la rotation, focalisé sur les indicateurs précoces (protistes 18S, ratio F/B, AMF), en complément des paramètres classiques (MO, N total, structure). Coût en baisse rapide (~50-150 €/échantillon).
Cards en dialogue (9)
Quorum Quenching One Health : désarmement enzymatique des pathogènes vs antibiorésistance
Couper cette communication, c'est les laisser vivantes mais muettes — désarmées.
C'est le principe du « quorum quenching » : des enzymes qui cassent les signaux chimiques, empêchant les pathogènes de former leurs biofilms et de sécréter leurs toxines. Contrairement aux antibiotiques qui tuent et poussent à la résistance, on neutralise sans sélectionner de résistants.
La parade peut être contournée, mais la pression de sélection est bien plus faible. Une stratégie « One Health » : moins d'antibiotiques en agriculture, et des pistes pour la médecine humaine et animale.
Science
Le Quorum Quenching (QQ) est l'inhibition enzymatique ou moléculaire de la communication chimique microbienne (Quorum Sensing — auto-inducteurs AHL/AIP/AI-2). Contrairement aux antibiotiques, qui tuent les pathogènes (et créent une pression de sélection vers l'antibiorésistance), le QQ les désarme en bloquant leurs comportements virulents collectifs (biofilms, sécrétion de toxines, virulence) sans affecter leur viabilité — donc sans pression de sélection vers la résistance.
Mécanismes principaux :
- lactonases (gènes aiiA, aiiB, attM chez Bacillus, Klebsiella, Agrobacterium) — hydrolysent le cycle lactone des AHL ;
- acylases : clivent la liaison amide des AHL ;
- oxydases : modifient chimiquement les signaux ;
- antagonistes de récepteurs : bloquent la perception sans dégrader le signal.
En biocontrôle agricole, des souches QQ-productrices protègent contre les pourritures bactériennes (Pectobacterium, Erwinia) par inoculation. Position « One Health » : le QQ relève d'une stratégie antibiorésistance globale (résistome environnemental) qui dépasse l'agriculture et concerne aussi la santé humaine et animale — les inhibiteurs de QS pourraient compléter les antibiotiques en clinique, et leur usage agricole réduit déjà la dépendance aux antimicrobiens.
Limite : le QQ peut être contourné évolutivement (variants de récepteurs ou de signaux), mais la pression de sélection est plus faible que celle des antibiotiques létaux. Il s'intègre à l'ingénierie du microbiome comme fonction d'inoculants (PGPR) ou composante de SynComs ciblées.
Cards en dialogue (11)
- Dérive de
- Approfondi par
- Voir aussi (8)
-
- Résistome et transfert horizontal : la face sombre du continuum
- Redondance fonctionnelle et résilience coévolutive (H5/DP4)
- Mycobiome intestinal et axe gut-brain fongique : le 3ᵉ domaine oublié de la santé humaine
- Axe sucre simple → dysbiose intestinale → maladie cardiométabolique
- Synthetic Communities (SynComs) : ingénierie rationnelle de consortia microbiens pour l'agriculture régénérative
- Lutte intégrée bio-mimétique 4 piliers : cadre stratégique unifié pour la gestion des bioagresseurs
- Priming immunitaire végétal : opérateur cellulaire commun aux voies endogène (rhizosphère/ISR) et exogène (éliciteurs/PTI-SAR)
- Le résistome du sol : la RAM est indigène, l'agriculture la sélectionne
Synthetic Communities (SynComs) : ingénierie rationnelle de consortia microbiens pour l'agriculture régénérative
Les meilleures équipes sont petites — quelques souches seulement —, avec des rôles complémentaires et des doublons pour la résilience. Au champ, les fortunes sont mixtes : la colonisation fonctionne, mais la persistance dépend de cette redondance.
La doctrine émergente : viser la simplicité rationnelle, ni la simplification ni la complexité aveugle. Les savoirs traditionnels — KNF, JADAM, IPMO — exploitent déjà intuitivement ces communautés locales bien adaptées.
Science
Les Synthetic Communities (SynComs) sont des consortia microbiens assemblés rationnellement à partir d'isolats caractérisés taxonomiquement et fonctionnellement. Face aux mono-inoculants (une espèce, un effet) et aux inoculants complexes mal caractérisés (thé de compost, EM commerciaux), elles offrent un compromis : composition contrôlée + diversité fonctionnelle + reproductibilité.
Tendances 2020-2025 :
- SynComs minimalistes (3-8 souches) avec keystones et redondance fonctionnelle — plus efficaces que les SynComs ultra-complexes ou les mono-inoculants, avec des fortunes mixtes au champ : colonisation et bénéfice réels pour la plante, mais persistance conditionnée à la redondance fonctionnelle (pertes de lignées observées au champ) (Jing 2024, Fonseca-García 2024) ;
- ciblées par fonction : fixation d'azote (Bradyrhizobium + Azospirillum + Pseudomonas mobilisatrice de P), biocontrôle (Bacillus QQ + Pseudomonas antagoniste + Trichoderma mycoparasite), tolérance saline… ;
- intégrant le Quorum Quenching pour désarmer les pathogènes sans pression de résistance ;
- naturelles auto-assemblées par des couverts multi-espèces (légumineuses + graminées + crucifères), qui recrutent des SynComs via les signaux des exsudats.
Doctrine émergente : viser non la simplification (mono-inoculant) ni la complexité aveugle (thé de compost), mais la simplicité rationnelle — composition minimale couvrant les fonctions essentielles, avec redondance pour la résilience. Converge avec les savoirs traditionnels (KNF, JADAM, IPMO) qui exploitent intuitivement des SynComs locales bien adaptées.
Limites : coût de caractérisation et de conservation des isolats ; variabilité inter-fermes ; interactions parfois imprévisibles avec le microbiome résident ; statut réglementaire (biostimulant vs produit phytopharmaceutique).
Cards en dialogue (13)
- Contredit
- Approfondit
- Approfondi par
- Voir aussi (6)
-
- Biostimulation indigène KNF/JADAM et thermodynamique redox
- Microorganismes prédateurs indigènes (IPMO) : la capture ciblée par appât insecte
- Quorum Quenching One Health : désarmement enzymatique des pathogènes vs antibiorésistance
- Holobionte programmable : ingénierie du microbiome plante par cycles de culture rationnels
- Champignons multifonctionnels : entomopathogènes, endophytes mutualistes ET biocontrôleurs : paradigme intégrateur
- Priming immunitaire végétal : opérateur cellulaire commun aux voies endogène (rhizosphère/ISR) et exogène (éliciteurs/PTI-SAR)
Module D14-MAX2-SMXL : architecture moléculaire de la signalisation des strigolactones
Sa pièce maîtresse, un récepteur, a une particularité rare : en captant le message, il le détruit aussitôt. Le signal s'éteint donc de lui-même, ce qui le rend précis et bref. Autre originalité : cette signalisation fonctionne en négatif — elle lève un verrou qui retenait les gènes, plutôt que de les activer directement. Ce module est conservé chez toutes les plantes à vaisseaux : ce sont les messages et les verrous qui ont varié au fil de l'évolution.
Science
Le module D14-MAX2-SMXL est l'architecture moléculaire conservée de la signalisation des strigolactones (SL) chez les plantes vasculaires, fondée sur un mécanisme original dit « catch-and-degrade » (« capture puis dégradation »). Composants :
- D14 (dwarf14) : récepteur de type α/β hydrolase qui lie le ligand SL et l'hydrolyse simultanément (le ligand est consommé en agissant — propriété biochimiquement rare) ;
- MAX2 : protéine F-box du complexe SCF (Skp1-Cullin-F-box) E3 ubiquitine ligase ;
- SMXL (SUPPRESSOR OF MAX2-LIKE) — famille de répresseurs transcriptionnels, cibles de la voie.
Mécanisme : la liaison du SL change la conformation de D14, qui recrute le complexe SCF^MAX2 ; les répresseurs SMXL sont ubiquitinés puis dégradés par le protéasome ; la levée de répression active les gènes effecteurs (inhibition du débourrement axillaire via BRC1, architecture, signalisation symbiotique).
Originalité : un récepteur enzymatique qui perçoit et inactive son ligand (signal auto-limité) ; une signalisation par dégradation (lever un blocage plutôt qu'activer directement — comme auxines/AUX-IAA, gibbérellines/DELLA) ; une conservation chez toutes les plantes vasculaires, les variations portant sur les ligands et les SMXL cibles.
Le récepteur paralogue KAI2 (homologue ancestral de D14) perçoit d'autres ligands (karrikines post-incendie…) via les mêmes MAX2-SMXL — c'est ce module ancestral qu'ont détourné les Orobanchacées parasites.
Cards en dialogue (4)
Récepteurs ancestraux et détournement évolutif (exaptation) : KAI2, le cas-type des Orobanchacées
Un cas frappant : un récepteur végétal conçu à l'origine pour détecter les molécules libérées par les incendies, et déclencher la germination, a été détourné par des plantes parasites, comme les striges, pour flairer la présence d'une plante hôte. Résultat redoutable : la graine du parasite ne germe qu'à proximité immédiate d'une victime exploitable. Cette spécialisation s'est faite par duplication de gènes et affinement du capteur. Pour l'agriculteur, sélectionner des variétés dont le signal est moins repérable peut déjouer la perception de l'ennemi.
Science
L'exaptation (ou détournement évolutif) désigne le processus par lequel une structure biologique, d'abord adaptée à une fonction, est cooptée pour une fonction différente. Cas-type majeur chez les strigolactones : le récepteur KAI2 (paralogue ancestral du récepteur D14), dont la fonction primaire est de percevoir les karrikines (furanones libérées par les incendies, stimulant la germination), a été détourné chez les Orobanchacées parasites (Striga, Orobanche, Phelipanche) pour percevoir les strigolactones de leurs hôtes et déclencher la germination en présence d'un hôte exploitable.
Cette spécialisation a évolué par duplication génique et divergence sélective : les Orobanchacées portent jusqu'à 11 copies de KAI2 (contre 1-2 chez les non-parasites), avec des poches de liaison divergentes (KAI2d / ShHTL chez Striga hermonthica). Le chimiotropisme de la radicule vers la source de SL complète la stratégie.
Le paradigme dépasse KAI2 — l'exaptation est fréquente dans les interactions plante-microbe :
- récepteurs de défense (PRR) cooptés par certains pathogènes pour faciliter leur entrée ;
- métabolites de défense réutilisés comme attractants de pollinisateurs ;
- symbioses mutualistes établies en détournant des voies de signalisation de défense.
L'évolution n'est donc pas linéaire mais contingente : les structures biologiques voyagent fonctionnellement au gré des pressions sélectives. Conséquence appliquée : contre un parasite comme Striga, sélectionner des variétés au profil SL modifié peut déjouer la perception parasitaire — complément de la « germination suicide ».
Cards en dialogue (5)
Germination suicide : lutte intégrée bio-mimétique contre les parasites racinaires (Striga, Orobanche)
On peut retourner leur propre arme contre elles.
Leur graine ne germe qu'à la détection d'une racine voisine. On pulvérise une substance qui imite ce signal : la graine se réveille, sort une petite racine, ne trouve rien à parasiter et meurt d'épuisement en quelques jours. Après une ou deux saisons, le stock de graines enfouies s'effondre.
Une arme douce : produit naturel, biodégradable, sans danger connu pour la vie du sol. Elle reste chère et se dégrade vite — un levier de plus, pas un miracle.
Science
La germination suicide est une stratégie de lutte intégrée contre les plantes parasites racinaires (Striga hermonthica, Orobanche cumana, Phelipanche aegyptiaca) qui détourne leur propre mécanisme de perception. Principe : appliquer au sol des analogues synthétiques de strigolactones (GR24 et dérivés) qui déclenchent la germination des graines parasites en l'absence d'hôte — la radicule émergée, ne trouvant aucune racine à parasiter, meurt en 7-21 jours. Le stock semencier du sol (persistant 15-20 ans) chute fortement après une ou deux saisons.
Avantages :
- bio-mimétique : exploite le récepteur KAI2d/ShHTL propre aux parasites (issu de l'exaptation évolutive) ;
- non destructif : les SL sont naturelles, biodégradables, sans toxicité connue pour la microfaune ni les hôtes (elles stimulent même le recrutement des AMF) ;
- alternative aux herbicides : en cultures vivrières stratégiques (sorgho, maïs, riz, mil d'Afrique subsaharienne) ;
- cumulable : en jachère, en intercalaire avec culture-piège (Desmodium uncinatum) ou en pré-semis.
Limites :
- coût des analogues encore élevé (ordre de grandeur : centaines d'€/ha, selon formulation et fournisseur) ;
- stabilité chimique limitée (SL synthétiques type GR24 : labiles, dégradées en quelques jours dans le sol — Aliche et al., 2020 ; Jamil et al., 2022) — innovations en cours : analogues à structure simple de type methyl phenlactonoates, plus stables et faciles à synthétiser (Jamil et al., 2017) ;
- adaptation possible des parasites (variants de KAI2d) ;
- statut réglementaire des analogues encore en construction.
S'insère dans une lutte intégrée à quatre piliers : prévention par diversification + recrutement des défenseurs + interférence ciblée par bio-mimétisme + chimie en dernier recours. Ouverture : analogues ciblant d'autres parasites (signaux d'éclosion des nématodes à galles ?).
Cards en dialogue (6)
- Contredit
- Approfondi par
- Voir aussi (3)
Scavenging vs Mining : stratégies fongiques d'acquisition des nutriments dans le sol
Les glaneurs — les champignons qui vivent en symbiose à l'intérieur des racines, les mycorhizes arbusculaires — récupèrent les nutriments déjà libérés par les bactéries : économes mais dépendants des autres. Les mineurs — les champignons à chapeau des forêts et leurs cousins — attaquent directement la matière organique avec leurs enzymes, au prix d'un gros investissement mais en toute autonomie. Cette distinction dessine les paysages : forêts tempérées et boréales privilégient les mineurs, prairies et cultures reposent sur les glaneurs associés aux bactéries. Un sol agricole vivant gagne donc à favoriser la coopération glaneurs, bactéries et prédateurs, plutôt que des écosystèmes forestiers peu adaptés aux cultures annuelles.
Science
Dans les sols, champignons mycorhiziens et saprotrophes mobilisent les nutriments selon deux stratégies écologiques contrastées :
- Scavenging (glaneurs) : captation des nutriments inorganiques déjà minéralisés (NH₄⁺, NO₃⁻, Pi, K⁺) par diffusion vers les hyphes extra-radiculaires. Typique des CMA (Glomeromycota), dépendants de la minéralisation préalable par bactéries et saprotrophes : faible coût enzymatique, forte dépendance au reste du microbiote.
- Mining (mineurs) : décomposition active de la matière organique par un arsenal enzymatique extracellulaire (protéases, peroxydases, phosphatases, chitinases, ligninases des white-rot). Typique des ECM (Basidiomycota, Ascomycota) et des saprotrophes : coût enzymatique élevé, mais autonomie nutritive.
Cette distinction structure les communautés selon les écosystèmes : forêts tempérées et boréales dominées par les ECM mineurs (sols pauvres en N minéral, riches en MO récalcitrante) ; prairies, cultures, savanes tropicales dominées par les CMA glaneurs (la minéralisation bactérienne fournit l'inorganique).
Conséquence : un sol agricole régénératif gagne à favoriser la coopération inter-règnes (CMA glaneurs + bactéries minéralisatrices + protistes prédateurs de la boucle microbienne) plutôt que des écosystèmes ECM-dominés, peu compatibles avec les annuelles. À l'inverse, systèmes agroforestiers et forestiers valorisent les ECM mineurs (autonomie, décomposition de la litière) ; les systèmes mixtes combinent les deux.
Cards en dialogue (9)
- Approfondit
- Approfondi par
Wood Wide Web : critique scientifique du paradigme des réseaux mycorhiziens communs (CMN)
Les réseaux de champignons qui relient les plantes sont bien réels, pourtant les travaux récents montrent que les quantités réellement transférées entre plantes restent très faibles, bien loin des flux d'air ou d'eau ; les échanges sont surtout préférentiels entre plantes semblables ; et rien ne prouve que les donneuses en tirent un bénéfice — il pourrait s'agir de simples fuites passives. Quant aux alertes entre arbres, elles sont plausibles mais non démontrées en conditions naturelles. Gardons ce réseau pour son rôle réel : structure du sol, recrutement, symbiose.
Science
Le Wood Wide Web (WWW) — réseaux mycorhiziens communs (CMN) interconnectant les arbres et permettant un transfert massif et bidirectionnel de carbone, d'azote, d'eau et de signaux — a été popularisé par Suzanne Simard (2018) et a fortement marqué la doctrine grand public sur les forêts.
Critique scientifique récente (Karst, Jones & Hoeksema 2023, Nature Ecology & Evolution) :
- transfert sur-estimé : les transferts mesurés (¹⁴C, ¹⁵N) entre plantes via CMN sont souvent < 1 % du C/N de la plante donneuse, loin des flux atmosphériques et hydriques ;
- spécificité d'hôte : transferts préférentiels entre plantes de même espèce/guilde, pas universels ;
- pas de finalité adaptative claire : aucune preuve robuste que les « émetteurs » en tirent un bénéfice ; l'alternative est qu'il s'agit de fuites hyphales passives ;
- biais médiatique : le récit « arbres-mère » a été amplifié au-delà de l'évidence.
- fonction de signalisation / « alerte » inter-plantes : classée plausible mais non démontrée en conditions naturelles : les transferts de signaux de défense observés en laboratoire ne sont pas attribuables au seul réseau fongique (confusion avec composés volatils aériens et exsudats racinaires) ; critiques convergentes de Robinson et al. 2023 et Henriksson et al. 2023.
Implications doctrinales :
- conserver le CMN comme structure réelle et fonctionnellement importante (recrutement, échanges plante-champignon, support hyphal du sol) ;
- nuancer les transferts massifs inter-plantes — privilégier le rôle structurel et symbiotique au « réseau social » ;
- rester vigilant face à la vulgarisation en agroforesterie ;
- articuler avec les autres voies de communication mieux documentées (volatils, exsudats, microbiome partagé).
Cas-type d'épistémologie : un concept valide amplifié au-delà des données, à rectifier — cohérent avec une exigence de scepticisme scientifique.
Formulation prudente retenue : « les réseaux mycorhiziens constituent un canal potentiel de signalisation édaphique, dont l'importance relative par rapport aux signaux aériens et à la diffusion rhizosphérique reste à quantifier en milieu naturel ».
Cards en dialogue (9)
- Contredit
- Approfondit
- Voir aussi (6)
-
- 450 Ma de coévolution plante-microbe : cadre temps-profond trois piliers
- Strigolactones : signal à triple fonction (architecture, mycorhize, parasitisme)
- Soil Continuum Model (SCM) : fin du paradigme de l'humification, necromasse microbienne et fractions fonctionnelles MAOM/POM
- Glomaline : glycoprotéine fongique et stockage C profond
- Haies et bocage : infrastructure multifonctionnelle du sol vivant
- Filtre mycorhizien ETM : exclusion métaux lourds et sécurité alimentaire
Auxotrophie et co-évolution : le virage lipidique CMA-plante comme signature de symbiose obligatoire
Cette dépendance n'est pas un accident : ils ont perdu, au cours de l'évolution, les gènes nécessaires — une perte irréversible qui signe une alliance obligatoire, nouée il y a environ un demi-milliard d'années, quand les plantes ont colonisé la terre. Sans hôte, ils ne survivent pas. En retour, ils procurent à la plante les nutriments qu'elle extrait difficilement seule. Un sol privé de ces champignons — labour profond, fongicides, excès de phosphore — prive la plante d'une part majeure de sa capacité à se nourrir.
Science
Le virage lipidique désigne la découverte (Jiang 2017 et Luginbuehl 2017, Science ; Bravo 2017, New Phytologist ; Keymer 2017, eLife) que les champignons mycorhiziens à arbuscules (CMA) reçoivent de leur hôte non seulement des sucres mais aussi des lipides essentiels (acides gras C16:0) qu'ils ne savent pas synthétiser — renversant le paradigme « C contre P/N ».
Le mécanisme repose sur une auxotrophie lipidique des CMA : ils ont perdu au cours de l'évolution les gènes de synthèse des acides gras (FAS1/FAS2, ACP…). Cette perte irréversible signe une symbiose obligatoire ancienne — sans hôte, les CMA ne survivent pas. Sa datation (~450 Ma, contemporaine de la colonisation des terres) en fait un marqueur génomique de la coévolution plante-champignon.
Paradigme évolutif :
- les pertes géniques irréversibles comme signature de dépendances obligatoires (endosymbiotes, organites, pathogènes spécialisés) ;
- une coévolution mutualiste très longue : ~450 Ma (CMA-plantes), ~1,5 Ga (plastes), ~2 Ga (mitochondries) ;
- une dépendance mutuelle : la plante héberge les CMA pour leur extraction P/N, les CMA dépendent d'elle pour lipides et sucres.
Implications doctrinales :
- un sol sans CMA est handicapé — la plante survit mais perd >50 % de son efficience d'acquisition P/N ;
- les pratiques qui détruisent les CMA (labour profond, fumigation, fongicides, sur-fertilisation P) brisent une symbiose de 450 Ma ;
- la sélection variétale doit préserver l'aptitude symbiotique (verrou NSP2, exsudation de SL, lipides exportés) ;
- pendants : la nodulation rhizobienne repose aussi sur des pertes géniques bactériennes ; les ECM, eux, ont gardé leur autonomie (pas de virage lipidique).
Cards en dialogue (11)
- Approfondit
- Approfondi par
- Voir aussi (5)
-
- Glomaline : glycoprotéine fongique et stockage C profond
- Voie de symbiose commune (CSSP) : SYMRK, CCaMK, CYCLOPS comme modules universels conservés
- Cycle du phosphore : fixation, solubilisation biologique, mycorhizes
- Filtre mycorhizien ETM : exclusion métaux lourds et sécurité alimentaire
- Diversité fongique dual rôle producteur/régulateur : les champignons comme acteurs ambivalents des cycles biogéochimiques
Holobionte programmable : ingénierie du microbiome plante par cycles de culture rationnels
Ce nouveau regard propose de les piloter au lieu de les subir.
Concrètement : choisir des variétés qui gardent le talent d'attirer leurs alliés, restaurer les microbes disparus des sols dégradés, et semer les bons partenaires au bon moment — à la germination ou à la floraison, quand la plante est la plus réceptive. Même l'idée de concevoir de petites équipes de souches complémentaires progresse.
Certaines promesses restent du domaine du rêve — par exemple des céréales qui fabriqueraient leur propre azote. La voie rejoint pourtant l'intuition des fermentations paysannes, qui pilotaient déjà ces microbes sans les nommer.
Science
L'holobionte programmable désigne le paradigme d'ingénierie ciblée des interactions plante-microbiome comme levier de l'agriculture régénérative. Issu des recherches 2020-2025 (Portal-González et al., 2025 ; Berg et al., 2024), il traite la plante et son microbiome comme une unité fonctionnelle pilotable par :
- sélection variétale maintenant l'aptitude à recruter le microbiome (NSP2, exsudation de SL, voie SYMRK) ;
- conception de SynComs : consortia caractérisés (keystones + redondance + coopération inter-règnes) ;
- rewilding du microbiome : restaurer les taxons clés disparus des sols dégradés (« symbiotes manquants », Berg 2023) ;
- pilotage par les cycles de culture exploitant la mémoire écologique (rotations longues, couverts) ;
- modélisation in silico et jumeaux numériques prédictifs ;
- biocapteurs microbiens suivant l'état de l'holobionte en temps réel.
Trois principes de conception (Portal-González 2025) : assemblage écologique (keystones + redondance vs spécialisation aveugle) ; stabilité par complexité (équilibre entre 3-8 souches efficaces et résilience long terme) ; synchronisation phénologique (inoculer aux moments de réceptivité : germination, transition florale, post-stress).
Converge avec les savoirs traditionnels (IPMO, KNF/JADAM, EM) qui exploitent intuitivement ces principes. Limites : statut réglementaire des SynComs, variabilité inter-fermes, coûts, interactions imprévisibles avec le microbiome résident. Horizon spéculatif (à garder au conditionnel) : une fixation d'azote autonome chez les céréales, par extension de la voie symbiotique commune aux Poaceae non-nodulantes.
Cards en dialogue (11)
- Contredit
- Approfondit
- Approfondi par
- Voir aussi (6)
-
- Synthetic Communities (SynComs) : ingénierie rationnelle de consortia microbiens pour l'agriculture régénérative
- Voie de symbiose commune (CSSP) : SYMRK, CCaMK, CYCLOPS comme modules universels conservés
- Lutte intégrée bio-mimétique 4 piliers : cadre stratégique unifié pour la gestion des bioagresseurs
- Code des histones et marques permissives/répressives : architecture épigénétique de la mémoire immunitaire végétale
- RNAi exogène HIGS et SIGS : silencing génique ciblé pour le biocontrôle de précision
- L'holobionte ingénieur de sa niche : le vivant installe ses conditions
Voie de symbiose commune (CSSP) : SYMRK, CCaMK, CYCLOPS comme modules universels conservés
On le sait parce que couper ce circuit chez une mousse très ancienne supprime la mycorhization. La nodulation, plus récente, n'a pas réinventé la roue : elle a récupéré ce circuit existant. Les céréales en conservent d'ailleurs une grande partie, ce qui nourrit l'espoir — encore au conditionnel — de leur enseigner un jour à fixer l'azote. Préserver ce patrimoine, c'est préserver la capacité des plantes à s'associer.
Science
La Voie de Symbiose Commune (Common Symbiosis Signaling Pathway, CSSP) est l'architecture moléculaire ancestrale par laquelle les plantes terrestres établissent leurs symbioses mycorhiziennes et nodulaires. Trois gènes pivots :
- SYMRK : récepteur transmembranaire qui perçoit les lipo-chitooligosaccharides (LCO : facteurs Myc des mycorhizes, facteurs Nod des rhizobiums) ;
- CCaMK : décode les oscillations calciques nucléaires (« Ca²⁺ spiking ») induites par les LCO ;
- CYCLOPS : facteur de transcription, cible de CCaMK, qui active les programmes d'accommodation symbiotique.
La voie est conservée depuis l'ancêtre commun des plantes terrestres (≥ 450 Ma) — démontré chez la bryophyte Marchantia paleacea (Vernié 2024), où inactiver SYMRK, CCaMK ou CYCLOPS abolit la symbiose mycorhizienne. D'où : la mycorhization (450 Ma) préservée chez l'ancêtre des vasculaires ; la nodulation (70-90 Ma) qui a coopté cette voie au lieu d'en inventer une nouvelle ; les bryophytes actuelles encore mycorhizables ; un récepteur LysM ancestral percevant aussi bien les LCO mycorhiziens que les facteurs Nod.
Cas-type de modularité conservée : un module fonctionnel réutilisé pour des innovations symbiotiques ultérieures (récepteurs spécialisés en aval : NFR1/NFR5 chez les légumineuses).
Implications doctrinales : préserver la fonction CSSP par la sélection variétale (variétés modernes parfois affaiblies par une sélection P+ continue) ; une fixation d'azote autonome chez les céréales (horizon, au conditionnel) supposerait de réactiver une voie nodulaire — théoriquement envisageable car les Poaceae conservent SYMRK/CCaMK fonctionnels, mais pas le récepteur de facteur Nod ; Parasponia (seule non-légumineuse nodulante) est un modèle unique de cooptation (van Velzen et al., 2018).
Cards en dialogue (10)
- À lire d’abord
- Approfondi par
- Voir aussi (5)
-
- Strigolactones : signal à triple fonction (architecture, mycorhize, parasitisme)
- Profil sol calcaire/argilo-calcaire : calcium structurant, risques de blocages P/oligo
- Module D14-MAX2-SMXL : architecture moléculaire de la signalisation des strigolactones
- Auxotrophie et co-évolution : le virage lipidique CMA-plante comme signature de symbiose obligatoire
- Holobionte programmable : ingénierie du microbiome plante par cycles de culture rationnels
Triade Fe/Mo/Co pour la nitrogénase : stoechiométrie micronutritionnelle de la fixation biologique de l'azote
Le fer et le molybdène entrent dans la machine elle-même ; le cobalt, lui, sert à fabriquer une vitamine (la B12) qui aide la bactérie à protéger son usine de l'oxygène. Si un seul de ces trois manque, tout s'arrête — et les analyses classiques du sol ne le détectent pas, d'où des légumineuses qui végètent malgré la présence des bonnes bactéries. La réponse passe par un raisonnement en trio : vérifier ensemble fer, molybdène et cobalt, choisir des légumineuses tolérantes aux sols pauvres, corriger l'acidité (qui rend le molybdène indisponible) et surveiller les sols calcaires, où c'est le cobalt qui se fait rare.
Science
La fixation biologique de l'azote (FBN) par les diazotrophes (Rhizobium en nodule, cyanobactéries, Azotobacter…) repose sur la nitrogénase, qui réduit le diazote (N₂) en ammoniac. Le système dépend de trois micronutriments métalliques disponibles simultanément, aux rôles distincts — deux structurels/catalytiques dans l'enzyme, un indirect :
- Fer (Fe) : composant central des grappes Fe-S (4Fe-4S, 8Fe-7S, FeMo-co) ;
- Molybdène (Mo) : atome catalytique du cofacteur FeMo-co, site actif de la réduction du N₂ ;
- Cobalt (Co) : régulateur indirect, via la cobalamine (B12) du rhizobium, qui active trois enzymes (méthionine synthase, ribonucléotide réductase, méthylmalonyl-CoA mutase pour l'hème de la leghémoglobine — protection de la nitrogénase contre l'O₂). Le Co n'entre pas dans la nitrogénase.
Stœchiométrie limitante : la carence d'un seul des trois bloque l'ensemble (loi de Liebig au niveau des micronutriments). Variantes : Mo-nitrogénase (la plus efficace) ; V-nitrogénase (vanadium, refuge en sols pauvres en Mo) ; Fe-only (la moins efficace).
Diagnostic : un sol pauvre en l'un des trois limite la FBN même avec Rhizobium inoculé ; les analyses classiques (N total, MO, pH) ne détectent pas ces carences silencieuses (ICP-MS ou bioessais requis).
Doctrine régénérative : sélectionner des légumineuses tolérantes aux sols pauvres en Mo/Co (fréquents en tropical) ; raisonner les amendements en triade (Mo+Co+Fe) ; surveiller les sols acides (faible disponibilité Mo, le molybdate étant adsorbé à bas pH — le chaulage corrige les carences en Mo) comme les sols alcalins/calcaires (faible disponibilité Co). Le cobalt est autorisé comme micronutriment (Règlement EU 2019/1009) — essentiel au diazotrophe, non à la plante elle-même.
Cards en dialogue (13)
- Illustration de
- Approfondi par
- Voir aussi (8)
-
- Profil sol calcaire/argilo-calcaire : calcium structurant, risques de blocages P/oligo
- Couplages biogéochimiques Fe-P-S-N sous alternance redox : vivianite, NDFO et gouvernance des nutriments
- Cobalt, vitamine B12 et fixation biologique de l'azote : la chaîne oligoélémentaire oubliée
- Carence silencieuse en cobalt et transfert trophique sol-plante-microbiome humain : pendant Co du continuum sol-aliment-santé
- KSB et altération biologique des silicates : acidolyse, chélation et synergie AMF-bactéries
- Voies aérobie (cob) et anaérobie (cbi) de biosynthèse de la vitamine B12 : architecture évolutive divergente
- Paradoxe P-Zn et biofortification du zinc : pendant Zn du continuum sol-aliment-santé
- Iode : axe thyroïdien et maillon sol-plante ténu : pendant I du continuum sol-aliment-santé
Voies aérobie (cob) et anaérobie (cbi) de biosynthèse de la vitamine B12 : architecture évolutive divergente
La première, sans oxygène, est la plus ancienne : elle remonte aux origines de la vie et reste utilisée par des micro-organismes primitifs des sols gorgés d'eau et privés d'oxygène. La seconde, avec oxygène, est apparue après la grande oxygénation de la planète, notamment chez les bactéries qui vivent dans les nodosités des légumineuses. La disponibilité de cette vitamine dans la zone racinaire dépend donc de la coexistence de ces deux mondes. Favoriser la diversité microbienne — couverts, non-travail du sol, matière organique — entretient les producteurs des deux recettes.
Science
La biosynthèse de la cobalamine (vitamine B12), l'un des cofacteurs les plus complexes du vivant, suit deux voies dont la divergence reflète l'histoire de la vie :
- Voie aérobie (gènes cob) — chez certaines protéobactéries (Rhizobium, Pseudomonas, Sinorhizobium) : insertion tardive du cobalt, contraction du cycle nécessitant l'O₂, cobaltochélatase CobNST trimérique, métallochaperonne GTPase CobW couplant l'hydrolyse du GTP au transfert du Co ;
- Voie anaérobie (gènes cbi) — chez les archées (Methanosarcina, méthanogènes) et bactéries anaérobies (Clostridium, Salmonella) : insertion précoce du cobalt, contraction indépendante de l'O₂ (liée à la voie acétyl-CoA primitive), chélatases CbiK/CbiX de classe II.
Les deux voies convergent vers l'acide adénosylcobyrique. Implication évolutive (Modjewski 2024) : la voie anaérobie serait ancestrale, remontant au LUCA et à la voie Wood-Ljungdahl des hydrothermalismes ; la voie aérobie serait postérieure à la Grande Oxydation (~2,4 Ga). Le Co-B12 est ainsi un témoin des conditions primitives, conservé avant la séparation Bacteria-Archaea-Eukaryota.
Implications écologiques : les archées méthanogènes du sol (voie cbi) sont autonomes en B12 dans les microsites anoxiques persistants ; les rhizobiums (voie cob) opèrent en conditions micro-aérobies dans le nodule (équilibre fragile lié à la leghémoglobine) ; la disponibilité de B12 dans la rhizosphère dépend de la coexistence des deux types d'organismes. Côté pratiques : maintenir la diversité microbienne (couverts, non-travail, MO) favorise les producteurs de B12 des deux voies, là où labour/fongicides/fumigation l'érodent.
Cards en dialogue (8)
- Approfondit
- Voir aussi (7)
-
- Triade Fe/Mo/Co pour la nitrogénase : stoechiométrie micronutritionnelle de la fixation biologique de l'azote
- Carence silencieuse en cobalt et transfert trophique sol-plante-microbiome humain : pendant Co du continuum sol-aliment-santé
- AOA, AOB et comammox : les trois guildes nitrifiantes, partage de niche et implications agronomiques
- Archées Asgard et origine eucaryote : la lignée eucaryote prend ses racines dans le domaine archéen
- Couplage Méthane-Fer-Soufre archéen : oxydation anaérobie du méthane (AOM) et puits CH4 globaux
- Profil sol calcaire/argilo-calcaire : calcium structurant, risques de blocages P/oligo
- Archées : troisième domaine écologiquement distinct dans le sol
Carence silencieuse en cobalt et transfert trophique sol-plante-microbiome humain : pendant Co du continuum sol-aliment-santé
Sur un sol pauvre en cobalt, les plantes en prélèvent moins, les animaux d'élevage qui les mangent produisent moins de B12, et l'apport décroît le long de la chaîne. L'humain ne fabrique pas sa B12 : il la reçoit surtout des aliments d'origine animale. Le raccourci « plante → intestin → B12 » existe, mais il est secondaire et discuté.
Une carence en B12 touche le sang, les nerfs et la cognition. Diagnostiquer le cobalt des sols et rééquilibrer les rotations, c'est compléter la fertilité par sa face invisible : la micronutrition.
Science
La carence silencieuse en cobalt désigne des sols cultivés dont le Co biodisponible est insuffisant pour soutenir une fixation biologique de l'azote optimale et un transfert trophique adéquat vers l'animal et l'humain — sans symptôme visible sur les cultures.
Mécanisme du transfert défaillant :
- sols pauvres en Co biodisponible (croûte ~25 ppm, disponibilité réduite à pH > 7,5 et en présence de carbonates) ;
- les plantes en prélèvent moins ;
- les procaryotes producteurs de cobalamine (microbiote, et surtout animaux d'élevage ayant consommé des plantes Co-riches) en disposent moins (Jörgensen et Jörgensen, 2024) ;
- l'apport en B12 décroît le long de la chaîne alimentaire.
Chez l'humain et les mammifères, qui ne synthétisent pas la B12, l'essentiel provient des aliments d'origine animale (la synthèse colique humaine, en aval de l'iléon, est peu absorbée) — le maillon « plante → microbiote intestinal → B12 humaine » est donc réel mais secondaire et discuté, à ne pas surinterpréter. Le déficit en B12 (anémie mégaloblastique, neuropathies, troubles cognitifs, homocystéinémie, fœtopathies) reste un enjeu de santé publique : un statut sub-optimal est fréquent dans les régimes pauvres en produits animaux (estimations variables selon le seuil retenu).
Doctrine sol-santé : le cobalt complète le ratio Na/K comme cas-type du continuum minéral sol-aliment-santé. La régénération des sols doit intégrer la dimension micronutritionnelle (diagnostic ICP-MS du Co biodisponible, rotations à légumineuses Co-tolérantes, amendements ciblés) au service de la santé publique, pas seulement de la productivité.
Cards en dialogue (10)
- Approfondit
- Voir aussi (9)
-
- Continuum sol-plante-humain : le fil rouge du corpus
- Mycobiome intestinal et axe gut-brain fongique : le 3ᵉ domaine oublié de la santé humaine
- Densité nutritionnelle alimentaire (sol → assiette)
- Chélation organique et biostimulation foliaire : acides aminés, hydrolysats et mobilité des oligoéléments
- Triade Fe/Mo/Co pour la nitrogénase : stoechiométrie micronutritionnelle de la fixation biologique de l'azote
- Voies aérobie (cob) et anaérobie (cbi) de biosynthèse de la vitamine B12 : architecture évolutive divergente
- Paradoxe P-Zn et biofortification du zinc : pendant Zn du continuum sol-aliment-santé
- Sélénium : marge thérapeutique étroite et mimétisme sulfate : pendant Se du continuum sol-aliment-santé
- Iode : axe thyroïdien et maillon sol-plante ténu : pendant I du continuum sol-aliment-santé
Modèle brésilien FBN soja : enseignements et limites d'une transition continentale réussie ET ambivalente
C'est la plus grande démonstration mondiale du genre.
La recette tient en quelques gestes : enrober les semences de ces bactéries, choisir des variétés qui prospèrent avec peu d'azote, chauler, nourrir la matière organique et semer sans labourer. À l'échelle d'un continent, cela économise des montagnes d'engrais et évite autant d'émissions.
Mais la réussite a une face sombre : le soja a grignoté la savane du Cerrado, un sol naturellement riche en carbone. Ce coût caché pourrait effacer les gains obtenus. La leçon : l'azote biologique fonctionne à grande échelle, à condition de ne pas le payer en terres sauvages.
Science
Le modèle brésilien de FBN sur soja est la plus grande expérience mondiale d'agriculture sans azote de synthèse à grande échelle : 154,6 Mt de soja sur 44,1 Mha en 2022/23 (statistique officielle de production CONAB) en FBN quasi totale (Venâncio 2024/25). Six piliers :
- co-inoculation Bradyrhizobium + Azospirillum brasilense (souches d'élite Ab-V5/Ab-V6) ;
- sélection variétale sous régime N bas (paradigme inverse des USA, qui sélectionnent sous N+ continu — au prix d'une architecture racinaire appauvrie, un trade-off discuté de la sélection blé — Ober et al., 2021) ;
- gestion des sols : chaulage, MO via résidus, semis direct, P et Mo systématique en sols ferralitiques ;
- traitement de semences inoculé ;
- cadre institutionnel (EMBRAPA, programme national des bio-intrants) ;
- diffusion massive (25 % des surfaces dès 2019/20).
Performances rapportées (sources mono-équipes, à considérer comme ordres de grandeur) : +8 % de rendement, +35 % de nodules, ~15 Mds USD/an d'urée économisés, ~183 Mt CO₂eq/an évitées.
Ambivalences critiques :
- déforestation du Cerrado : conversion continue des savanes natives (le soja a compté pour 22 % de la conversion du Cerrado sur 2003-2014 — Rausch et al., 2019 ; expansion soja sud-américaine accélérée depuis 2000 — Song et al., 2021) ; ce coût climatique caché pourrait dépasser les émissions évitées par la FBN ;
- cascade azote : la massification génère un excédent N (N₂O, lessivage de NO₃⁻, eutrophisation) : la FBN n'est pas un « free lunch » ;
- gain Azospirillum non systématique en sud-Brésil à haut rendement sous semis direct ancien (Caires 2024) ;
- crédits carbone théoriques non valorisés (MRV à démontrer) ;
- dépendance géopolitique (60 % exporté, surtout vers la Chine).
Leçon clé : la FBN biologique est techniquement faisable à l'échelle continentale, mais sa massification doit être couplée à une politique d'usage des terres protectrice — et transposée aux contextes tempérés et autres légumineuses (pois, féverole, lentille) sans expansion sur des biomes carbone-riches.
Cards en dialogue (7)
- Approfondi par
- Voir aussi (6)
-
- Cascade des coûts cachés : €0 direct → €5 civilisationnel (qui paye, et quand)
- Cascade des conséquences : E0 parcelle → E5 planétaire (jusqu'où ça ricoche)
- Antifragilité : stress modéré → diversification de l'hologénome
- MRV crédits carbone biominéraux : certification de la séquestration C inorganique pérenne
- Souveraineté azote-fertilisation : l'autonomie nationale face à la dépendance Haber-Bosch
- Cycle de l'azote : fixation, minéralisation, nitrification, pertes
Souveraineté azote-fertilisation : l'autonomie nationale face à la dépendance Haber-Bosch
La souveraineté azotée, c'est la capacité d'un pays à nourrir ses cultures en azote sans cette dépendance externe.
Les alternatives passent par le vivant : les légumineuses, qui fixent l'azote de l'air ; les rotations longues où une légumineuse fertilise la suivante ; des inoculants produits localement ; l'agroforesterie à arbres fixateurs. Le Brésil a démontré qu'on peut massifier cette fixation.
Mais ce n'est pas une recette universelle : tous les contextes ne s'y prêtent pas également, et une fixation mal conduite peut aussi émettre du gaz à effet de serre. La souveraineté alimentaire commence par celle de la fertilisation.
Science
La souveraineté azote-fertilisation est la capacité d'un pays ou d'une région à assurer la nutrition azotée de son agriculture sans dépendance externe aux engrais de synthèse (urée via Haber-Bosch, très énergivore). Paradigme géopolitique émergent qui traite l'agriculture comme une infrastructure critique de sécurité alimentaire.
Contexte : la production d'urée est concentrée (Russie, Chine, Maroc, Golfe, États-Unis) et adossée au gaz naturel (≈ 1-2 % de l'énergie mondiale — Erisman et al., 2008) ; les chocs de prix des énergies fossiles s'y répercutent directement (crise alimentaire 2008, chocs gaziers 2021-2022 — couplage énergie-engrais : Erisman et al., 2008) et en révèlent la fragilité (Hellegers, 2022).
Leviers de souveraineté :
- massification de la FBN (cf. le modèle brésilien sur soja) ;
- rotations longues légumineuses-céréales (la FBN d'une saison fertilise la suivante) ;
- sélection variétale FBN-compatible sous régime N bas ;
- inoculants nationaux (souches Rhizobium locales) ;
- agroforesterie à légumineuses (Faidherbia albida, Acacia, Inga, Sesbania) ;
- horizon de recherche : fixation autonome chez les céréales (extension de la voie de symbiose commune) — encore spéculatif.
Cas-types : Brésil (transition continentale réussie) ; Cuba post-1990 (conversion agroécologique forcée après l'embargo : agriculture urbaine, lutte biologique, légumineuses-FBN — Wright, 2012) ; Niger (Faidherbia sahélien) ; à l'inverse Punjab indien (sur-dépendance à l'urée subventionnée : efficience azotée effondrée, eaux souterraines, externalités environnementales — Hasanain et al., 2025) ; Europe (Plan protéines, résultats mitigés).
Implications : la souveraineté alimentaire passe par la souveraineté de la fertilisation ; les politiques de transition devraient inclure un plan d'autonomie azote (R&D inoculants, sélection, formation, subventions aux rotations). Réserves : tensions d'usage des terres (cas Cerrado), FBN non neutre climatiquement (N₂O en surdosage), contextes pédoclimatiques inégalement favorables.
Cards en dialogue (10)
- Voir aussi (7)
-
- Coût réel de l'énergie fossile et 'esclaves énergétiques'
- Redondance fonctionnelle et résilience coévolutive (H5/DP4)
- Cascade des coûts cachés : €0 direct → €5 civilisationnel (qui paye, et quand)
- Fragilité systémique fossile : la dépendance aux intrants de synthèse comme point de rupture
- Socio-économique : travail, filières, risques et dépendances
- Modèle brésilien FBN soja : enseignements et limites d'une transition continentale réussie ET ambivalente
- Révolution verte : Haber-Bosch, blé nain et modernisation agricole
AOA, AOB et comammox : les trois guildes nitrifiantes, partage de niche et implications agronomiques
Certaines prospèrent dans les milieux pauvres et acides ; d'autres ne s'emballent que sur les sols massivement fertilisés ; une troisième, découverte très récemment, réalise seule tout le travail que l'on croyait partagé entre deux groupes. Ces familles se répartissent selon l'acidité, la richesse en ammoniac et la profondeur. Leur équilibre renseigne sur la trajectoire d'un sol : les apports organiques modérés et les couverts entretiennent des communautés sobres et résilientes, la fertilisation massive des opportunistes éphémères. Aucune famille n'est bonne ou mauvaise en soi : tout dépend du régime d'intrants et du contexte.
Science
La nitrification (oxydation NH₃/NH₄⁺ → NO₂⁻ → NO₃⁻) est assurée par trois guildes ; deux renversements successifs ont défait la doctrine du Nitrosomonas-only : la découverte des AOA en 2005, puis celle du comammox (complete ammonia oxidizer) en 2015 — un organisme qui réalise seul la nitrification complète, brisant le dogme centenaire de la division obligatoire du travail (Winogradsky) :
- AOA : Ammonia-Oxidizing Archaea (Nitrososphaerota, ex-Thaumarchaeota) : affinité élevée mais hétérogène — Kₘ ~10-100 nM chez les écotypes aquatiques/oligotrophes extrêmes, ~quelques µM chez les AOA de sol (Nitrososphaera gargensis ≈ 5,6 µM) ; milieux oligotrophes (océans, sols pauvres ou acides), NO intermédiaire obligatoire (Kozlowski 2016) ;
- AOB : Ammonia-Oxidizing Bacteria (Nitrosomonas, Nitrosospira — Proteobacteria) : affinité faible (Kₘ ~1 µM à ~1 mM selon l'espèce), milieux eutrophes (sols massivement fertilisés, eaux usées) ;
- comammox : Nitrospira à nitrification complète : très haute affinité (Kₘ NH₄⁺ ≈ 0,65 µM chez N. inopinata, supérieure aux AOA de sol, ~1500× aux AOB canoniques), K-stratège oligotrophe à croissance lente. Deux lignées à niches contrastées : Clade A (surface, pH plus élevé) et Clade B (sous-sol, pâturages, faibles teneurs en ammonium). Marginal en abondance dans les sols agricoles fertiles — les AOA y sont 50 à 430× plus abondantes (Huang 2021) ; nuance : dans d'autres contextes, Jiang 2023 attribue au comammox 41,9 ± 4,8 % de la perte d'ammoniac des engrais.
Partage de niche : pH, teneur en NH₃/NH₄⁺, profondeur et stratégie écologique (AOA et comammox = K-stratèges oligotrophes résilients ; AOB = r-stratèges opportunistes des pics de fertilisation). Le comammox, comme l'AOA, est supplanté par les fortes charges en ammonium (Clade B particulièrement sensible).
Sur le N₂O, le contraste « AOA/comammox abiotique faible / AOB enzymatique » est une dominante, pas une exclusivité : les AOB produisent aussi du N₂O par nitrifier-dénitrification, et la part abiotique vs hybride reste débattue. Conséquence : favoriser le comammox ne réduit le N₂O que s'il supplante les AOB, pas les AOA (déjà faibles émettrices).
Implications agronomiques : la composition AOA/AOB/comammox renseigne l'état trophique et la trajectoire d'un sol ; les inhibiteurs de nitrification (DCD, DMPP) ont des efficacités différentielles selon la guilde (le Clade B du comammox est sensible à la DCD et au chlorate) ; les apports organiques modérés + couverts entretiennent des communautés oligotrophes résilientes (AOA, comammox), là où la fertilisation massive favorise des AOB transitoires. Doctrine : penser la nitrification comme un système ternaire AOA / AOB / comammox — le ratio des guildes est un indicateur de trajectoire écologique, mais aucune n'est « bénéfique » en soi : son rôle est fixé par le régime d'intrants et le contexte pédoclimatique.
Cards en dialogue (12)
- Ouvre sur
- Illustration de
- Approfondit
- Voir aussi (7)
-
- Redox central : gradients, microzones et 'redox ladder'
- Stratégies microbiennes : r/K et Y-A-S (rendement, acquisition, stress) le long de la succession
- Voies aérobie (cob) et anaérobie (cbi) de biosynthèse de la vitamine B12 : architecture évolutive divergente
- N₂O : émissions agricoles, mécanismes et mitigation
- BNI : quand la plante freine sa propre nitrification
- Aquaponie découplée
- Aquaponie sur sable (iAVs) : le lit de sable comme sol
Archées Asgard et origine eucaryote : la lignée eucaryote prend ses racines dans le domaine archéen
Des archées trouvées au fond des océans, cultivées au prix d'une décennie de patience, portent des protéines qu'on croyait propres aux cellules complexes. La lignée des plantes, animaux et humains ne serait donc pas un royaume à part : elle serait née au sein des archées, par la fusion d'une archée Asgard et d'une bactérie devenue nos centrales énergétiques, les mitochondries. Cette vision « à deux domaines » émergerait peu à peu, mais reste débattue — une controverse encore ouverte. Héritage : plantes et humains partagent un ancêtre commun plus ancien, et une chimie cellulaire commune dont la vitamine B12.
Science
La découverte des archées Asgard (Lokiarchaeota 2015, puis Thor-, Odin-, Heimdallarchaeota) est une révolution évolutive majeure du XXIᵉ siècle. D'abord assemblées depuis des sédiments marins profonds, puis cultivées en 2019 (Prometheoarchaeum syntrophicum, après 12 ans), ces archées portent un répertoire étendu de protéines de signature eucaryote (ESPs) absentes des autres archées : cytosquelette (actines, profilines), GTPases du trafic vésiculaire (Rab, Arf), complexe ESCRT, facteurs traductionnels.
Implication phylogénétique : la lignée eucaryote n'est plus un domaine indépendant mais émergerait au sein du domaine archéen, sœur ou descendante des Asgard (arbre « à 2 domaines » ; Williams 2013, Eme 2017, Spang 2015). Le LECA serait né d'une fusion endosymbiotique entre une archée Asgard ancestrale (hôte : cytosquelette, trafic membranaire, pré-noyau) et une alphaprotéobactérie (futur mitochondrion). Cet arbre supplante progressivement les trois domaines parallèles de Woese.
Modèles d'eucaryogenèse : « inside-out » (Baum & Baum 2014, extensions cytoplasmiques enveloppant le partenaire) ; « entangle-engulf-endogenize » (Imachi 2020, fusion par filaments d'actine, syntrophie H₂).
Portée doctrinale : l'organellogenèse (mitochondries, plastes : deux endosymbioses successives) s'inscrit dans ce cadre ; la continuité évolutive sol-microbe-humain est plus profonde qu'on ne le pensait — plantes et humains partagent un ancêtre archéen Asgard, et la chimie cellulaire ancestrale (dont la B12) est commune. Argument de plus pour la doctrine sol-santé / One Health.
Controverses : modèle récent ; certaines équipes maintiennent trois domaines (Da Cunha et al., 2017) ; le rôle exact de l'alphaprotéobactérie (mitochondrie-première vs noyau-premier) reste débattu — cas-type d'épistémologie en mouvement.
Cards en dialogue (9)
- Approfondit
-
- Archées : troisième domaine écologiquement distinct dans le sol
- Voie de symbiose commune (CSSP) : SYMRK, CCaMK, CYCLOPS comme modules universels conservés
- Triade Fe/Mo/Co pour la nitrogénase : stoechiométrie micronutritionnelle de la fixation biologique de l'azote
- Couplage Méthane-Fer-Soufre archéen : oxydation anaérobie du méthane (AOM) et puits CH4 globaux
- Approfondi par
- Voir aussi (4)
-
- Évolution du vivant : monde anaérobie → photosynthèse → oxygénation → respiration (cadre redox)
- 450 Ma de coévolution plante-microbe : cadre temps-profond trois piliers
- Voies aérobie (cob) et anaérobie (cbi) de biosynthèse de la vitamine B12 : architecture évolutive divergente
- Le sol comme incubateur évolutif : microsites anoxiques, reliques de l'Archéen et matière noire microbienne
Couplage Méthane-Fer-Soufre archéen : oxydation anaérobie du méthane (AOM) et puits CH4 globaux
Pourtant, dans les sols gorgés d'eau, des microbes spécialisés y parviennent : ils brûlent le méthane en utilisant, à la place de l'oxygène, d'autres partenaires chimiques comme le fer rouillé, le sulfate ou le nitrate. C'est ce couplage qui explique, par exemple, pourquoi certaines zones humides riches en fer émettent moins de méthane que prévu. Concrètement, cela ouvre des pistes pour les rizières, grandes émettrices de méthane : en alternant périodiquement l'eau et l'air, ce qui régénère le fer oxydé, on pourrait réduire leurs émissions. Le méthane devient ainsi un acteur à part entière du cycle du fer dans les sols à tendance asphyxiante.
Science
L'oxydation anaérobie du méthane (AOM) — longtemps jugée thermodynamiquement « impossible » — oxyde le CH₄ en CO₂ sans oxygène, couplée à la réduction d'un accepteur d'électrons alternatif. D'abord décrite en milieu marin, elle est désormais documentée jusque dans les sols. Trois variantes :
- S-AOM (sulfate) — consortia ANME (Anaerobic Methanotrophic Archaea) + bactéries sulfato-réductrices ; CH₄ + SO₄²⁻ → CO₂ + HS⁻. Domine en sédiments marins ;
- Fe-AOM (fer) — Ca. Methanoperedens couple CH₄ à la réduction de Fe(III) ; documenté en sédiments lacustres et sols hydromorphes (Cai 2018, Bar-Or 2017) ;
- N-AOM (nitrate/nitrite) — Methanoperedens + Methylomirabilis oxyfera ; CH₄ + NO₃⁻/NO₂⁻ → N₂.
Mécanisme : les ANME utilisent la methyl-coenzyme M réductase (MCR) en mode inversé (l'enzyme de la méthanogenèse, à rebours, oxyde le CH₄) ; le transfert d'électrons extracellulaire vers le partenaire (sulfato-réducteurs ou minéraux Fe) se fait par cytochromes multihémiques et nanofilaments.
Portée : l'AOM marine consomme ~80 % du CH₄ produit dans les sédiments avant émission (régulateur climatique majeur — chiffre marin, à ne pas transposer tel quel aux sols) ; le couplage Fe-CH₄ explique en partie pourquoi des zones humides riches en Fe(III) émettent moins de CH₄ que prévu ; le couplage N-CH₄ ouvre l'atténuation simultanée de CH₄ et N₂O.
Agronomie : les sols à alternance redox (riziculture, zones humides) hébergent ces consortia ; favoriser l'AOM-Fe pourrait réduire les émissions de CH₄ rizicole (~10 % des émissions agricoles), les pratiques AWD régénérant l'accepteur Fe(III). Le CH₄ apparaît ainsi comme un nouvel acteur du cycle du fer.
Cards en dialogue (9)
- Approfondi par
- Voir aussi (7)
-
- Profil sol hydromorphe/organique : redox bas, émissions, gestion de l'eau centrale
- Couplages biogéochimiques Fe-P-S-N sous alternance redox : vivianite, NDFO et gouvernance des nutriments
- Bactéries ferro-réductrices : Geobacter, Shewanella et la respiration dissimilatoire du fer
- Voies aérobie (cob) et anaérobie (cbi) de biosynthèse de la vitamine B12 : architecture évolutive divergente
- Le sol comme incubateur évolutif : microsites anoxiques, reliques de l'Archéen et matière noire microbienne
- Bactéries câbles : l'électricité longue distance du sol
- Bilan CH₄ des sols agricoles : puits menacé
Résistance pré- vs post-infectionnelle aux nématodes : paradigme dual du choix variétal et des rotations
Certaines repoussent l'intrus avant qu'il n'entre : le parasite reste endormi dans la terre, et la menace attend la culture suivante. D'autres le laissent entrer, mais la racine le tue sur place, et le stock du sol se vide pour de bon — c'est un piège mortel.
D'où la règle : avant une culture sensible, semez d'abord les plantes pièges qui vident le sol ; sur la durée, mélangez les deux stratégies. Se reposer uniquement sur les plantes qui repoussent donne un faux sentiment de sécurité.
Science
La résistance des plantes aux nématodes phytoparasites recouvre deux mécanismes stratégiquement distincts, dont la confusion conduit à des choix de cultivars ou de cultures-pièges sub-optimaux :
- Résistance pré-infectionnelle (répulsive) : des exsudats racinaires repoussent les juvéniles J2 ou les empêchent de pénétrer. Le J2 reste au sol et entre en cryptobiose (dormance prolongée, plusieurs années). Conséquence : le stock de J2 du sol est maintenu, voire augmenté — protection immédiate, mais report du problème à la culture suivante.
- Résistance post-infectionnelle (piège-et-tue) : le J2 pénètre la racine mais l'infection avorte (pas de cellule géante, pas de site nourricier) : J2 piégé et tué. Conséquence : réduction drastique du stock — effet curatif durable.
Cas-types (Fullana 2023, Njekete 2024-25) : Tagetes patula/erecta = pré-infectionnelle dominante (répulsion + α-terthiényls nématicides en rhizosphère ; J2 maintenus en cryptobiose) ; Crotalaria juncea = post-infectionnelle (pénétration > tomate mais reproduction restreinte) ; Solanum sisymbriifolium = post-infectionnelle exemplaire (populations résiduelles quasi nulles après une saison).
Doctrine agronomique : avant une culture sensible (pomme de terre, tomate, soja en sol infesté), privilégier les post-infectionnelles pour vider le stock ; en gestion longue, mélanger pré- et post- pour cumuler les effets ; ne pas se reposer uniquement sur des pré-infectionnelles (faux sentiment de sécurité, stock latent).
Mécanisme moléculaire : la post-infectionnelle implique souvent des gènes R (Mi-1 — Williamson, 1998 ; Hero) qui détectent les effecteurs du nématode et déclenchent une réponse hypersensible privant le J2 de site nourricier ; la pré-infectionnelle repose sur des composés rhizosphériques répulsifs (α-terthiényls des Tagetes, alcaloïdes des Crotalaria). C'est un cas-type de « pénétration suicide » — exploiter le trigger de l'agresseur sans finalité productive.
Cards en dialogue (4)
- Voir aussi (3)
Mémoire du sol et auto-régulation suppressive : la dimension transgénérationnelle de la résilience pédologique
La mémoire du sol a trois visages, regroupés par analogie : des communautés microbiennes qui persistent, des composés chimiques qui restent, et une structure héritée. Des sols qui deviennent résistants aux maladies après des années de pratique, l'effet durable d'une légumineuse sur la céréale suivante : autant d'empreintes réelles.
Le labour profond, les fongicides à large spectre ou une sécheresse extrême effacent cette mémoire. Le concept est empiriquement solide mais sa mécanique reste jeune : à manier avec un scepticisme éclairé, loin des promesses marketing.
Science
La mémoire du sol est la capacité d'un sol à conserver les empreintes biologiques, chimiques et structurelles des cycles et perturbations passés, et à les mobiliser pour réguler les cycles suivants. Concept émergent qui généralise des observations anciennes (effets précédents, rotations efficaces, sols suppressifs lents à s'établir).
Trois dimensions — regroupées par analogie, pas par un mécanisme unique :
- mémoire biologique : communautés microbiennes persistantes (AMF résiduels, Pseudomonas/Bacillus spécialisés, endophytes), héritées via résidus et spermosphère ;
- mémoire chimique : composés rhizosphériques persistants (allélochimie, exsudats), complexes Fe-MO, stock organique différentiel ;
- mémoire structurelle : agrégats stabilisés, réseau hyphal et bioporosité hérités (mécanisme physique distinct de la sélection de souches — d'où la prudence sur le terme « mémoire »).
Cas documentés (à lire comme ordres de grandeur, non comme constantes) : sols suppressifs spécifiques s'installant en ~3-7 ans de pratique régénérative et persistant un temps après changement (Himbeeck 2025) ; effet précédent légumineuse → céréale (gain de rendement notable vs monoculture) ; abondance AMF résiduelle accélérant la mycorhization suivante ; effet répressif sur nématodes prolongé après Solanum sisymbriifolium.
Émergence : sélection cumulative de souches, accumulation de signaux (dont le cry-for-help), boucles de rétroaction keystones-redondance. Effacement : labour profond (rupture du réseau hyphal), fongicides à large spectre, fumigation, sécheresses extrêmes.
Doctrine : la régénération est un processus long (5-10 ans) qui construit cumulativement un capital, lequel est détruit rapidement — fumigation en quelques semaines, labour profond sur quelques cycles (coût réel sous-estimé). Le diagnostic devrait inclure des indicateurs de mémoire (métabarcoding diachronique, suppressivité, structure). La mémoire du sol relève du scepticisme éclairé : empiriquement réelle, mais à mécanistique encore émergente — prudence face au marketing « régénératif ».
Cards en dialogue (9)
- Approfondi par
- Voir aussi (7)
-
- Continuum sol-plante-humain : le fil rouge du corpus
- Mémoire transgénérationnelle plante-microbiome
- Mémoire microbienne paléoclimatique (20 000 ans)
- Mémoire redox et noyaux de réduction persistants : la dimension temporelle des microzones anoxiques
- Code des histones et marques permissives/répressives : architecture épigénétique de la mémoire immunitaire végétale
- Capture indigène vs inoculum standardisé : doctrine de l'origine du consortium microbien
- Banque de semences microbienne dormante : prophages, persisters et spores, le réservoir invisible
Cultures-pièges bio-mimétiques : exploitation du trigger des bioagresseurs comme stratégie de lutte intégrée
C'est tout le principe des cultures-pièges.
Une plante qui n'est pas une proie émet pourtant le même signal que la culture convoitée. Le parasite se réveille, germe, pénètre… et ne trouve rien à manger : il s'épuise et meurt. La ruse vaut contre les plantes vampires des racines, contre les vers microscopiques, et même contre les insectes attirés ou repoussés par des voisines bien choisies.
L'élégance, c'est d'exploiter l'instinct même de l'agresseur : il aurait moins de raisons de développer une résistance qu'avec un poison — une piste plausible, encore à confirmer. Sur le terrain, l'effet varie d'une parcelle à l'autre et se règle localement.
Science
Les cultures-pièges bio-mimétiques exploitent le signal/trigger naturel d'un bioagresseur : une plante non-hôte (ou hôte-piégeant) déclenche la germination/pénétration/colonisation du parasite sans lui offrir de site nourricier productif → mort par épuisement. Stratégie phytosanitaire (et non « thérapeutique ») relevant du paradigme bio-mimétique régénératif.
Cas-types :
- Striga / Orobanchacées : germination suicide par analogues SL (GR24…) ou Solanum sisymbriifolium ;
- nématodes Meloidogyne — Solanum sisymbriifolium avant pomme de terre (résiduel quasi nul), Crotalaria juncea (pénétration > tomate mais reproduction restreinte) ;
- pathogènes bactériens : désarmement du Quorum Sensing par lactonases (même paradigme, sans être une culture-piège au sens strict) ;
- insectes : push-pull avec Desmodium uncinatum ;
- champignons telluriques (perspective) : signaux racinaires déclenchant la germination des spores hors cible.
Mécanismes communs : récepteur naturel exploité (KAI2d des Striga, chimiotactisme des nématodes, récepteurs QS) ; trigger sans finalité productive ; mort par épuisement. La moindre pression de sélection vis-à-vis des biocides chimiques est plausible mais reste une hypothèse — un piège qui tue par épuisement peut lui aussi sélectionner des écotypes non répondants (ex. M. enterolobii contournant Mi-1).
Avantages : alternative aux biocides, complément du biocontrôle (champignons nématophages, Trichoderma), compatibilité bio, réduction des doses. Limites : variabilité inter-fermes, écotypes locaux à adapter, coût des analogues, formation, non-universalité.
Ce paradigme constitue le pilier « interférence ciblée » de la lutte intégrée bio-mimétique, à étendre à d'autres bioagresseurs (champignons telluriques, insectes, virus).
Cards en dialogue (6)
- Approfondit
- Voir aussi (5)
-
- Nématodes : guildes trophiques, indice de Bongers et diagnostic
- Gestion systémique des nématodes à galles : rotations, cultures-pièges et régulation trophique
- Lutte intégrée bio-mimétique 4 piliers : cadre stratégique unifié pour la gestion des bioagresseurs
- Germination suicide : lutte intégrée bio-mimétique contre les parasites racinaires (Striga, Orobanche)
- Autodissémination et push-pull insectes : ingénierie comportementale et amplification CEP
Champignons multifonctionnels : entomopathogènes, endophytes mutualistes ET biocontrôleurs : paradigme intégrateur
On découvre qu'un même champignon peut être à la fois chasseur, garde du corps et engrais.
Prenez celui qui tue les insectes ravageurs : il sait aussi s'installer sans bruit à l'intérieur de la plante pour renforcer ses défenses, et s'attaquer aux champignons qui la rendent malade. Un autre capture l'azote d'un insecte mort et l'offre directement à la racine.
Ce qui fait basculer son rôle, c'est l'endroit où il vit — autour des racines, sur les feuilles, sur l'insecte — et les signaux qu'il reçoit. Résultat : un même produit peut cumuler plusieurs métiers. Les cases rigides de la microbiologie classique étaient une simplification.
Science
Le paradigme classique séparait strictement les groupes fonctionnels fongiques (saprotrophes, mycorhiziens, pathogènes, entomopathogènes, endophytes). Les recherches 2018-2025 (Vega et al., 2018 ; Bamisile et al., 2018 ; Bamisile et al., 2021 ; Quesada-Moraga et al., 2022) montrent que beaucoup d'espèces exercent simultanément plusieurs fonctions — des champignons multifonctionnels :
- entomopathogénie (adhésion cuticulaire → pénétration enzymatique → toxines → mort de l'insecte) ;
- endophytisme mutualiste (colonisation sans pathogénicité, induction ISR, phytohormones) ;
- biocontrôle des phytopathogènes (mycoparasitisme, compétition de niche) ;
- biostimulation face aux stress abiotiques (osmolytes, antioxydants).
Cas-types : Beauveria bassiana (entomopathogène + endophyte + antagoniste Fusarium/Botrytis) ; Metarhizium (entomopathogène + endophyte vecteur d'azote insecte→plante — transfert, non fixation ; Behie 2012) ; Trichoderma (mycoparasite + endophyte ISR + dégradeur de résidus) ; Lecanicillium ; Pochonia chlamydosporia (nématophage + endophyte).
Le switch fonctionnel est modulé par la localisation (rhizosphère / phyllosphère / hôte insecte), la signalisation (élicitines, kairomones), les conditions et le stade physiologique.
Portée : un même inoculant peut cumuler plusieurs fonctions (efficience). La multifonctionnalité fongique est probablement fréquente et sous-estimée (plutôt qu'une exception) — le découpage fonctionnel strict est une limite épistémologique de la microbiologie classique. Le couple producteur/régulateur s'étend ainsi à plusieurs cas-types fongiques majeurs.
Cards en dialogue (9)
- Approfondit
- Approfondi par
- Voir aussi (5)
-
- Endophytes ubiquitaires et potentiel pathogène latent
- Synthetic Communities (SynComs) : ingénierie rationnelle de consortia microbiens pour l'agriculture régénérative
- Lutte intégrée bio-mimétique 4 piliers : cadre stratégique unifié pour la gestion des bioagresseurs
- Autodissémination et push-pull insectes : ingénierie comportementale et amplification CEP
- Allélopathie : interférence biochimique végétale et leviers agronomiques (couverts, déprise, suppression)
Autodissémination et push-pull insectes : ingénierie comportementale et amplification CEP
C'est le principe de l'autodissémination.
Une petite station attire le ravageur avec son parfum — celui-là même qui sert d'appel entre insectes. Au contact, il se couvre de spores d'un champignon qui lui est fatal, puis regagne ses congénères et les contamine un à un. L'infection se propage comme une rumeur, sans nouvelle application.
À cela s'ajoute le jeu du push-pull : des plantes qui repoussent l'intrus d'un côté, d'autres qui l'attirent loin de la culture de l'autre. En Afrique de l'Est, le duo a fortement réduit les insecticides sur maïs. Économe et ciblé, mais chaque parasite a son parfum propre.
Science
L'autodissémination de champignons entomopathogènes (CEP) et le push-pull exploitent les comportements naturels des insectes (attraction par phéromones, vol vers les congénères) pour amplifier le biocontrôle sans application massive d'inoculant.
Mécanisme (autodissémination) :
- des stations distributrices contiennent des phéromones spécifiques de la cible + des spores de CEP (Beauveria, Metarhizium) ;
- les insectes attirés se chargent de spores au contact ;
- ils regagnent leurs congénères (accouplement, agrégation) ;
- la transmission horizontale propage l'infection ;
- mortalité en cascade, sans nouvelle application.
Cas-types : Beauveria + phéromone agrégante contre Bemisia tabaci (serres) ; Metarhizium + phéromones contre Diabrotica (maïs) ; Beauveria contre Tribolium (silos). Les efficacités rapportées (réductions de population de l'ordre de 50-80 %) sont à étayer au cas par cas.
Push-pull : combine stations CEP (push) et plantes attractives (pull). Cas historique est-africain : Desmodium uncinatum (push + germination suicide du Striga) + Brachiaria (pull du foreur Chilo) + maïs — fortes réductions d'insecticides et gains de rendement rapportés.
Avantages : économie d'inoculant, ciblage spécifique (phéromones), effet en cascade, faible pression de sélection, réutilisation des stations. Limites : spécificité d'espèce, coût des phéromones, sensibilité au vent, résistance comportementale possible. C'est le pendant comportemental des cultures-pièges bio-mimétiques (volet insectes du pilier « interférence ciblée »).
Cards en dialogue (7)
- Voir aussi (7)
-
- CEP : double identité entomopathogène/endophyte et CBC
- Quorum sensing dans la rhizosphère : communication bactérienne, perception végétale, biofilms
- Antifragilité : stress modéré → diversification de l'hologénome
- Germination suicide : lutte intégrée bio-mimétique contre les parasites racinaires (Striga, Orobanche)
- Cultures-pièges bio-mimétiques : exploitation du trigger des bioagresseurs comme stratégie de lutte intégrée
- Champignons multifonctionnels : entomopathogènes, endophytes mutualistes ET biocontrôleurs : paradigme intégrateur
- Lutte intégrée bio-mimétique 4 piliers : cadre stratégique unifié pour la gestion des bioagresseurs
Lutte intégrée bio-mimétique 4 piliers : cadre stratégique unifié pour la gestion des bioagresseurs
La lutte intégrée se construit en quatre étages, du plus doux au plus musclé.
D'abord, prévenir : restaurer la santé du sol par les rotations, les couverts, les arbres — un écosystème équilibré résiste tout seul. Ensuite, recruter les défenseurs : réveiller l'immunité de la plante et ses alliés microbiens. Puis seulement, les ruses ciblées — cultures-pièges, leurres qui détournent l'instinct du parasite. En dernier recours, des biopesticides précis.
La règle d'or est hiérarchique : on ne sort pas l'artillerie lourde avant d'avoir consolidé les fondations douces. C'est une position de principe assumée, pas un résultat d'expérience.
Science
La lutte intégrée bio-mimétique à 4 piliers est un cadre stratégique qui structure la gestion des bioagresseurs (plantes parasites, nématodes, pathogènes, insectes, virus) en piliers hiérarchiques complémentaires, plutôt qu'en arsenal chimique linéaire. Il dépasse l'IPM classique par son fondement écologique et bio-mimétique (exploiter signaux, récepteurs et comportements naturels, à moindre pression de sélection).
- Prévention écologique : restaurer la santé de l'écosystème : rotations longues multi-espèces, couverts permanents, équilibre nutritionnel (trophobiose), MAFOR, non-travail, agroforesterie, sols suppressifs.
- Recrutement actif des défenseurs : mobiliser l'immunité de la plante (ISR/SAR) et le microbiome bénéfique : cry-for-help, induction par CEP/Trichoderma, exsudats SL recrutant les AMF, inoculations multi-règnes, SynComs caractérisées.
- Interférence ciblée bio-mimétique : déclencher l'élimination de l'agresseur via son propre trigger : analogues SL (germination suicide des Striga) ; cultures-pièges piège-et-tue des nématodes (Solanum sisymbriifolium, Crotalaria) ; Quorum Quenching des bactéries ; autodissémination de CEP par phéromones (insectes) ; biofumigation des Brassica (glucosinolates → isothiocyanates) contre les champignons.
- Traitements curatifs en dernier recours : quand les piliers 1-3 sont insuffisants : biopesticides ciblés (CEP, Bt, baculovirus), nématicides bio-organiques (chitosan, extraits de Tagetes), fongicides minéraux (cuivre, soufre) avec parcimonie.
Avantages : forte réduction des intrants (plage agrégée, fortement contexte-dépendante), résilience par diversité des leviers, moindre pression de sélection, convergence One Health / agriculture régénérative, applicabilité en bio.
Doctrine : les piliers sont hiérarchiques — ne pas sauter aux piliers 3-4 sans avoir consolidé 1-2 (position normative assumée, non un résultat expérimental) ; convergence des savoirs traditionnels (IPMO, KNF/JADAM, push-pull) avec la science contemporaine.
Cards en dialogue (20)
- Dérive de
- Approfondit
- Approfondi par
- Voir aussi (12)
-
- Mémoire transgénérationnelle plante-microbiome
- Éliciteurs biologiques exogènes : chitosane et oligogalacturonides (priming PTI/SAR)
- Filtre mycorhizien ETM : exclusion métaux lourds et sécurité alimentaire
- Quorum Quenching One Health : désarmement enzymatique des pathogènes vs antibiorésistance
- Germination suicide : lutte intégrée bio-mimétique contre les parasites racinaires (Striga, Orobanche)
- Holobionte programmable : ingénierie du microbiome plante par cycles de culture rationnels
- Résistance pré- vs post-infectionnelle aux nématodes : paradigme dual du choix variétal et des rotations
- Cultures-pièges bio-mimétiques : exploitation du trigger des bioagresseurs comme stratégie de lutte intégrée
- Champignons multifonctionnels : entomopathogènes, endophytes mutualistes ET biocontrôleurs : paradigme intégrateur
- Autodissémination et push-pull insectes : ingénierie comportementale et amplification CEP
- Code des histones et marques permissives/répressives : architecture épigénétique de la mémoire immunitaire végétale
- RNAi exogène HIGS et SIGS : silencing génique ciblé pour le biocontrôle de précision
Code des histones et marques permissives/répressives : architecture épigénétique de la mémoire immunitaire végétale
Notre ADN s'enroule autour de protéines, les histones. Sur leurs extrémités s'ajoutent ou se retirent des étiquettes : certaines rendent les gènes actifs, d'autres les ferment, d'autres les maintiennent prêts à s'allumer vite. C'est la base de la mémoire immunitaire des plantes : une plante déjà confrontée à un stress réagira plus vite et plus fort — l'« amorçage ». Selon l'agresseur, la plante ouvre précisément les bons gènes de défense. Cette mémoire se transmet parfois sur quelques générations, mais de façon limitée et réversible. Les pratiques régénératives installent durablement ces marques, sans toucher à l'ADN.
Science
Le code des histones désigne le système combinatoire de modifications post-traductionnelles (méthylation, acétylation, phosphorylation, ubiquitination) sur les queues N-terminales des histones H3 et H4, qui règle l'accessibilité de la chromatine et donc l'expression génique. Découvert chez l'animal mais conservé chez les plantes, il est aujourd'hui reconnu comme l'architecture moléculaire de la mémoire immunitaire végétale : il « stocke » l'historique d'exposition aux stress sous forme de marques durables, permettant une réponse plus rapide et amplifiée ensuite (paradigme du priming, ou amorçage).
Marques permissives (chromatine ouverte) :
- H3k4me3 : promoteurs actifs ; enrichie sur les gènes de défense après stress ;
- H3k9ac : activation ;
- H3k36me3 : corps des gènes transcrits ;
- H4k16ac : relâchement du nucléosome.
Marques répressives (chromatine condensée) :
- H3k9me2 : hétérochromatine constitutive (transposons, péricentromères) ;
- H3k27me3 : répression facultative par le complexe Polycomb (PRC2) ;
- H3k9me3 : hétérochromatine.
Marques « primées » (état intermédiaire, activable vite) :
- bivalence H3K4me3 + H3K27me3 (état métastable) ;
- H3K4me1 sur les amplificateurs.
Effecteurs : lecteurs (domaines bromo, chromo), écriveurs (SDG2, CLF/SWN, KYP), effaceurs (LDL1/2, JMJ14), remodelage ATP-dépendant (SWI/SNF, INO80, ISWI, CHD).
Dialogue croisé hormonal : SA → H3K4me3 sur PR1/PR2/PR5 (défense biotrophes) ; JA → H3K4me3 sur VSP1/LOX2 (nécrotrophes, insectes) ; antagonisme SA/JA modulé par les marques répressives.
Transmission F0→F1→F2+ : marques H3K27me3 partiellement effacées en méiose ; méthylation ADN CG plus stable (transgénérationnelle) ; CHG/CHH variable. La durabilité transgénérationnelle reste limitée (de l'ordre de 2-3 générations en conditions contrôlées) — à ne pas surinterpréter en champ.
Portée : le priming immunitaire est une mémoire épigénétique chromatinienne ; la doctrine de la mémoire transgénérationnelle plante-microbiome y gagne sa base moléculaire ; les pratiques régénératives (sols suppressifs, biocontrôle, inoculations multi-règnes) installent durablement ces marques ; l'édition épigénome ciblée (CRISPR-dCas9 + DNMT/TET) et la sélection assistée par marqueurs épigénétiques (epi-MAS) ouvrent des perspectives sans modifier l'ADN.
Cards en dialogue (9)
- Approfondit
- Voir aussi (8)
-
- CEP : double identité entomopathogène/endophyte et CBC
- Éliciteurs biologiques exogènes : chitosane et oligogalacturonides (priming PTI/SAR)
- Microorganismes prédateurs indigènes (IPMO) : la capture ciblée par appât insecte
- Holobionte programmable : ingénierie du microbiome plante par cycles de culture rationnels
- Mémoire du sol et auto-régulation suppressive : la dimension transgénérationnelle de la résilience pédologique
- Lutte intégrée bio-mimétique 4 piliers : cadre stratégique unifié pour la gestion des bioagresseurs
- RNAi exogène HIGS et SIGS : silencing génique ciblé pour le biocontrôle de précision
- Crosstalk JA-SA : le dispatcher hormonal de la défense végétale
RNAi exogène HIGS et SIGS : silencing génique ciblé pour le biocontrôle de précision
Le principe : envoyer à l'ennemi un minuscule message qui fait taire l'un de ses gènes essentiels — et il meurt. Deux voies existent : faire produire ce message par la plante elle-même (mais c'est une modification génétique), ou le pulvériser directement sur la culture, sans rien modifier.
Cette seconde voie séduit : pas d'OGM, une seule espèce visée, et l'effet s'estompe en quelques semaines. Mais elle coûte cher, craint le soleil, exige des passages répétés — et le ravageur peut finir par s'y habituer. L'horizon d'adoption reste lointain.
Science
Le silencing génique par ARN interférent (RNAi) exploite la machinerie conservée (Argonaute, Dicer, RISC) pour réduire spécifiquement l'expression d'un gène cible via des ARN double-brin (dsRNA). Deux stratégies agricoles :
- HIGS (Host-Induced Gene Silencing) — la plante est génétiquement modifiée pour exprimer un dsRNA ciblant un gène essentiel du bioagresseur ; en colonisant la plante, celui-ci absorbe le dsRNA, silence son gène et meurt. Cas : tomate vs Fusarium oxysporum, maïs vs Diabrotica, blé vs Puccinia, banane vs Fusarium TR4. Limite : statut OGM, opposition en Europe.
- SIGS (Spray-Induced Gene Silencing) — pulvérisation directe de dsRNA (synthétiques ou produits par bactéries), sans modification de la plante ; le bioagresseur l'absorbe. Cas : Botrytis cinerea (silencing CYP51), Phytophthora infestans, charançons de stockage.
Atouts du SIGS : pas d'OGM (statut plus simple), ciblage spécifique d'espèce, réversibilité (le silencing s'estompe en quelques semaines). Limites : coût du dsRNA (en baisse via production fermentaire), stabilité au champ (UV), applications répétées, résistance documentée (mutation du gène cible, défauts d'absorption du dsRNA) — ce qui relativise l'idée d'une « absence de pression de sélection ».
Production de dsRNA : synthèse chimique (chère), fermentation bactérienne (E. coli HT115), in planta (HIGS), cell-free (émergent). Formulations : nanoparticules silice/chitosan, encapsulation anti-UV.
Le SIGS relève du pilier « interférence ciblée » de la lutte intégrée bio-mimétique (cadrage doctrinal : exploiter le mécanisme RNAi naturel). Horizon d'adoption 2030-2040 selon coûts, acceptation et réglementation ; ouverture vers un premier traitement antiviral véritable des plantes.
Cards en dialogue (4)
- Approfondi par
- Voir aussi (3)
-
- Holobionte programmable : ingénierie du microbiome plante par cycles de culture rationnels
- Lutte intégrée bio-mimétique 4 piliers : cadre stratégique unifié pour la gestion des bioagresseurs
- Code des histones et marques permissives/répressives : architecture épigénétique de la mémoire immunitaire végétale
Capture indigène vs inoculum standardisé : doctrine de l'origine du consortium microbien
La première capture la microflore d'une forêt saine voisine : des microbes déjà adaptés au sol et au climat, gratuits et souverains. La seconde achète un mélange standardisé et breveté : fiable, reproductible, identique partout dans le monde.
La science confirme au moins un point de la première : des souches étrangères introduites se font vite supplanter par la microflore du lieu. En pratique, on choisit selon le contexte — produit standard loin des forêts, capture indigène à proximité d'écosystèmes préservés — ou l'on enchaîne les deux. L'enjeu dépasse la technique : c'est aussi la souveraineté des savoirs paysans.
Science
Deux paradigmes opposés structurent les inoculants microbiens en agriculture régénératrice :
- Capture indigène locale : KNF-IMO (Cho Han Kyu ; Park & DuPonte 2008), JADAM leaf mold (Cho Y. 2016), LiFoFer (Terre & Humanisme 2018), Micro-Ben costaricien, IHplus cubain (Felix 2015), MMS Paniagua (Thinard 2019) — références de littérature grise paysanne : on capture la microflore d'une forêt mature proche, pour l'autonomie paysanne et l'adaptation pédoclimatique.
- Consortium standardisé importé : EM-1 (Higa 1991) : fiabilité industrielle reproductible, produit breveté à composition garantie, diffusé à l'identique dans plus de 130 pays.
Arguments de la première école : microflore co-évoluée mieux adaptée au pédoclimat ; biodiversité fonctionnelle supérieure à un consortium de quelques souches ; autonomie. Lamont (2017) confirme le premier point : des souches pures de Lactobacillus introduites au champ sont vite supplantées par la microflore native — ce qui poussa Higa lui-même à abandonner le clone pur pour le consortium plurispécifique.
Arguments de la seconde école : reproductibilité, caractérisation rigoureuse, traçabilité réglementaire, accès hors zones forestières.
S'y ajoute un enjeu épistémique et politique (souveraineté des savoirs) : les paysans costariciens de Micro-Ben refusent qu'une transnationale s'empare une nouvelle fois de leurs connaissances et dépose un brevet (Felix 2015). C'est l'un des deux grands axes doctrinaux de l'écologie microbienne appliquée — l'autre étant la divergence interne KNF/JADAM sur le minimalisme du protocole.
En pratique : EM-Higa pour la grande culture périurbaine sans forêt accessible ; IMO / leaf mold / LiFoFer / MMS en agriculture paysanne près d'écosystèmes préservés ; ou une approche hybride (démarrer à l'EM puis basculer vers la capture indigène à mesure que la microflore du site se rétablit).
Cards en dialogue (9)
- Contredit
- Approfondit
- Voir aussi (5)
-
- Microorganismes prédateurs indigènes (IPMO) : la capture ciblée par appât insecte
- Mémoire du sol et auto-régulation suppressive : la dimension transgénérationnelle de la résilience pédologique
- Doctrines fermentaires KNF vs JADAM : matrice des oppositions de Cho Han Kyu et Cho Youngsang
- Autonomie et low-tech : réduire la dépendance aux intrants et technologies externes
- Antifragilité des préparations microbiennes paysannes
Doctrines fermentaires KNF vs JADAM : matrice des oppositions de Cho Han Kyu et Cho Youngsang
Même point de départ — fabriquer soi-même ses microbes — mais des recettes presque opposées.
La première est artisanale : petites jarres, doses précises, alternance air/sans-air, le sucre comme pivot, et une surveillance pointilleuse de l'acidité et de la température. La seconde est industrielle par la simplicité : grands fûts, coût dérisoire, fermentation sans air toujours, sucre banni, et refus de tout mesurer — « dans la nature, personne ne mesure rien ».
Derrière le style, le clivage est philosophique : raffinement artisanal contre brutalité simple. Certains écrits glissent dans le pseudo-scientifique — à filtrer. Mais les mécanismes sous-jacents sont bien réels : fermentation, savons potassiques, composés soufrés.
Science
La Korean Natural Farming (KNF, Cho Han Kyu, 1935-2018) et la JADAM (fondée par Cho Youngsang en 2002 — JADAM, 2016) sont les deux grandes écoles de l'agriculture fermentaire coréenne. Elles partagent l'axiome de l'inoculum microbien indigène mais divergent sur huit axes :
- Échelle : KNF artisanal et parcellaire (jarres de 20 L, doses précises) ; JADAM mass-scale ultra-low-cost (fûts de 200 L, ~100 USD/acre/an).
- Microbiologie : KNF sélectionne l'IMO (riz cuit en boîte de cèdre, amplifié IMO-1→IMO-4) ; JADAM utilise la leaf mold indifférenciée (refus du dualisme bon/mauvais microbe).
- Aération : KNF alterne aérobie/anaérobie selon la préparation ; JADAM anaérobie systématique.
- Sucre : KNF en fait un pivot (FPJ, OHN, FFJ, FAA) ; JADAM le bannit par doctrine ULC (importé, coûteux), au profit de pomme de terre bouillie ou d'eau seule.
- Sels solubles : KNF les exclut strictement ; JADAM les accepte s'ils sont biodégradables (KOH, NaOH, sulfate de K, urée comme matière première).
- Paramètres : KNF surveille pH, C/N et température avec des seuils ; JADAM les déclare non opérationnels (« in nature, no one measures pH » — position épistémique à filtrer).
- Compostage solide : KNF intègre un Bokashi/IMO compost ; JADAM le rejette au profit d'une décomposition in situ (couvert + solution microbienne arrosée).
- Phyto-protection : KNF s'en tient à des toniques herbaux limités (OHN) ; JADAM industrialise un système complet (polysulfure germicide, savon mou tensioactif, solution herbale répulsive).
Position épistémique différentielle : l'édition Park & DuPonte (CTAHR Hawaï) reconnaît honnêtement « should be considered as suggested, rather than recommended » ; l'édition Reddy/SARRA véhicule un vocabulaire pseudoscientifique (« forces vitales », « le cèdre a un chi ») à filtrer rigoureusement ; l'anti-élitisme scientifique de JADAM (réfutation des théories C/N et pH) n'invalide pas les mécanismes universels sous-jacents (saponification potassique, polysulfures, fermentation anaérobie, documentés par ailleurs) mais reste une posture à filtrer.
Cards en dialogue (11)
- Approfondit
- Voir aussi (9)
-
- Amendements organiques : compostage aérobie thermophile vs fermentations vs autres voies
- Microorganismes prédateurs indigènes (IPMO) : la capture ciblée par appât insecte
- Brix réfractomètre : seuils opérationnels et interprétation agronomique
- BCSR vs SLAN : doctrine équilibre cationique et limites du système Albrecht
- Capture indigène vs inoculum standardisé : doctrine de l'origine du consortium microbien
- Successions microbiennes de la fermentation lactique : continuum sol -> récipient -> tube digestif
- Mycorhize
- Procédés doux et matrices complexes : la synergie plutôt que l'isolat
- Antifragilité des préparations microbiennes paysannes
Effet Birch : pulse de minéralisation à la réhumectation des sols secs
En séchant, le sol fragmente ses agrégats et fait éclater une partie de ses microbes ; au retour de l'eau, tout ce matériel mort se décompose brutalement, provoquant des pics de gaz à effet de serre et d'azote disponible. Plus les alternances sécheresse-pluie se multiplient — ce que le changement climatique accentue — plus ces à-coups se répètent. À l'inverse, garder le sol couvert et humide amortit le choc : une raison de plus pour ne jamais laisser une terre nue subir de plein fouet le cycle pluie-sécheresse.
Science
À la réhumectation d'un sol sec, une bouffée de minéralisation libère brutalement du carbone : un pulse de CO₂ couramment observé après une période sèche, de magnitude variable selon la fréquence de réhumectation, désigné sous le nom d'effet Birch (Lopez-Sangil et al., 2018), décrit dès 1958 comme l'effet du séchage du sol sur la décomposition de l'humus et la disponibilité de l'azote (Birch, 1958).
Le pulse résulte de la perturbation des communautés microbiennes par le séchage : les cycles séchage-réhumectation affectent différemment la croissance fongique et bactérienne dans un sol cultivé (Bapiri et al., 2010), et la récupération du métabolisme microbien après réhumectation dépend des conditions du séchage et des communautés en place (Li et al., 2024). Il traduit aussi une minéralisation différentielle : la litière végétale fraîche et la matière organique préexistante du sol se minéralisent de façon distincte à la réhumectation (Lopez-Sangil et al., 2018).
Une sécheresse plus fréquente peut altérer les schémas de stockage du carbone, la magnitude de ces pulses dépendant de la fréquence de réhumectation (Lopez-Sangil et al., 2018).
Cards en dialogue (8)
- Voir aussi (8)
-
- Asphyxie / anaérobie locale (odeurs, horizons réduits)
- Infiltration lente / engorgement (profil)
- Cycle de l'azote : fixation, minéralisation, nitrification, pertes
- Couplages biogéochimiques Fe-P-S-N sous alternance redox : vivianite, NDFO et gouvernance des nutriments
- Hydrique & redox → stress / microzones → stratégies
- Cycle de l'eau : potentiel hydrique, flux, résilience biologique
- Fenton-like et radicaux hydroxyles dans les sols : oxydation abiotique de la MAOM et flux CO₂ non microbien
- Sécheresse structurelle : de l'aléa au régime
Biomarqueurs fonctionnels du sol vivant : diagnostic par activités et ratios plutôt que par stocks
C'est le principe des biomarqueurs : des indices qui tracent une activité en train de tourner.
Quelques exemples : une enzyme qui libère le phosphore, un gène qui signale la fixation d'azote, la proportion de champignons par rapport aux bactéries, la maturité de la communauté des minuscules vers, ou encore la teneur en sucre de la sève. Chacun trahit un mécanisme en mouvement, pas un simple stock figé.
Lus ensemble, et croisés avec la tension d'oxygène du sol, ils forment l'arsenal du diagnostic. C'est un changement de regard : non plus « qu'y a-t-il dans le sol », mais « que fait-il » — la bonne boussole pour piloter une transition.
Science
Cadre méta-protocolaire transversal du diagnostic. Le diagnostic mobilise systématiquement des biomarqueurs fonctionnels — activités, ratios, indices de communauté, dynamiques — plutôt que les seuls stocks statiques : un indicateur fonctionnel trace un mécanisme actif, pas seulement un état. (Stocks et flux restent complémentaires : un diagnostic robuste combine les deux.)
Principe : un biomarqueur fonctionnel = un indicateur indirect mesurable d'un mécanisme de la cascade biophysique. Lu conjointement avec le redox de terrain (Eh), il forme l'arsenal protocolaire du diagnostic.
Principaux biomarqueurs fonctionnels retenus (non exhaustif) :
- Activités enzymatiques : phosphatase (minéralisation du P organique), cellulases (décomposition des résidus carbonés).
- Génétique fonctionnelle : nifH (potentiel de fixation d'azote, prédictif), métabarcoding 16S/ITS (diversité bactérienne et fongique).
- Indices écologiques : indice de Bongers (maturité des nématodes, succession trophique), QBS-ar (mésofaune ; indice de l'école italienne — revue : Menta, 2012), ratio F:B par PLFA (structure de la communauté).
- Efficience et stœchiométrie : CUE (Carbon Use Efficiency : allocation du C entre nécromasse/MAOM et CO₂ respiré), stœchiométrie de Kirkby (CNPS, arbitrage minéralisation/immobilisation).
- Vigueur métabolique végétale : Brix (solides solubles de la sève ; indicateur indirect de terrain indicatif, non spécifique), polyphénols et profil minéral foliaire (stress, qualité nutritionnelle).
- Diagnostic redox in situ : Eh de terrain (mV/cm), potentiel redox spatialisé.
Lecture transversale : ces biomarqueurs articulent les six macro-axes de la cascade biophysique (eau, structure, biologie, fertilité chimique, racines, vigueur). Ils opérationnalisent le « diagnostic par activités » plutôt que « par stocks » — rupture avec l'agronomie classique (qui surveille surtout MO totale, NPK, CEC), nécessaire pour piloter la dynamique d'une transition.
Cards en dialogue (18)
- Approfondi par
-
- Tests enzymatiques β-glucosidase / phosphatase / uréase : protocoles et seuils
- Bio-indication précoce du microbiome (métabarcoding multi-marqueurs) : détection des dégradations avant manifestation visuelle
- Lutte intégrée bio-mimétique 4 piliers : cadre stratégique unifié pour la gestion des bioagresseurs
- Voir aussi (14)
-
- Transition : chronoséquence 4 phases et indicateurs de suivi
- Cycle du carbone : de la photosynthèse à la MAOM
- Nématodes : guildes trophiques, indice de Bongers et diagnostic
- Mésofaune : collemboles et acariens, régulateurs des micro-habitats
- Soil Continuum Model (SCM) : fin du paradigme de l'humification, necromasse microbienne et fractions fonctionnelles MAOM/POM
- Brix réfractomètre : seuils opérationnels et interprétation agronomique
- Eh terrain : sondes redox, gradient mV/cm et méthode in situ
- Calibration régionale du diagnostic de santé du sol : SMAF/CASH/SHAPE et groupes de pairs
- Stœchiométrie CNPS et modèle AMG
- Diagnostic terrain intégré : du profil bêché au tableau de bord biologique
- Le ratio C/N du paillage pilote le ratio Fungi/Bacteria du sol
- Respiration du sol : indicateur d'activité microbienne
- Signature olfactive du sol vivant : COV microbiens (géosmine, pétrichor)
- IFT : Indice de Fréquence de Traitement : le compteur de dépendance chimique
Paradoxe P-Zn et biofortification du zinc : pendant Zn du continuum sol-aliment-santé
Trois mécanismes s'additionnent : le phosphore en excès emprisonne le zinc sous une forme insoluble, il dilue le zinc dans une biomasse gonflée, et surtout il endort la symbiose mycorhizienne, pourtant la principale voie d'absorption du zinc.
Résultat : un grain moins riche en zinc, qui pèse sur la nutrition humaine à l'échelle mondiale. La biofortification — par les pratiques agronomiques ou la sélection — cherche à rendre ce zinc au grain.
Science
Le paradoxe du phosphore-zinc : la sur-fertilisation phosphatée dégrade la nutrition zincique, par trois voies —
- adsorption / co-précipitation du Zn (phosphate de zinc insoluble, surtout en sol calcaire) ;
- effet de dilution par la biomasse stimulée ;
- surtout, suppression de la symbiose mycorhizienne : un excès de P réprime les gènes fongiques de transport du Zn (RiZRT1/RiZnT1 — gènes de transport du zinc du champignon, Tamayo et al., 2014), alors que les mycorhizes en sont le principal vecteur d'absorption.
Résultat : une densité en zinc du grain abaissée, qui se répercute sur la carence humaine (17,3 % de la population mondiale à risque d'apport insuffisant, de l'ordre d'un milliard de personnes — Wessells & Brown, 2012, estimation IZiNCG/FAO reprise par l'OMS : retards de croissance, immunité affaiblie, mortalité infantile).
Biofortification, deux voies : agronomique (nano-fertilisants ZnO, chélation, application foliaire — mais les nanoparticules ont un coût mycorhizien) ; génétique (édition CRISPR-Cas9 des gènes de l'acide phytique IPK1/ITPK, pour abaisser le ratio molaire phytate:Zn sous 5-10).
Pendant zinc de la famille micronutriments → santé (avec le cobalt et la densité nutritionnelle).
Cards en dialogue (12)
- Contredit
- Approfondit
- Voir aussi (8)
-
- Densité nutritionnelle alimentaire (sol → assiette)
- BCSR vs SLAN : doctrine équilibre cationique et limites du système Albrecht
- Triade Fe/Mo/Co pour la nitrogénase : stoechiométrie micronutritionnelle de la fixation biologique de l'azote
- Carence silencieuse en cobalt et transfert trophique sol-plante-microbiome humain : pendant Co du continuum sol-aliment-santé
- Cycle du phosphore : fixation, solubilisation biologique, mycorhizes
- Chélation organique et biostimulation foliaire : acides aminés, hydrolysats et mobilité des oligoéléments
- Sélénium : marge thérapeutique étroite et mimétisme sulfate : pendant Se du continuum sol-aliment-santé
- Iode : axe thyroïdien et maillon sol-plante ténu : pendant I du continuum sol-aliment-santé
Successions microbiennes de la fermentation lactique : continuum sol -> récipient -> tube digestif
Une même logique écologique se déroule partout où l'air manque : les microbes pionniers acidifient le milieu, puis les espèces tolérantes à l'acidité prennent le dessus, et la chute d'acidité stabilise l'ensemble. Dans le sol, dans le bocal, et jusqu'à l'ensemencement de notre intestin, la partition se ressemble.
La fermentation conserve l'énergie du substrat au lieu de la brûler, et les aliments fermentés apportent des microbes et des métabolites vivants — un ensemencement largement transitoire, mais qui prolonge le lien entre le sol, l'assiette et notre santé.
Science
Thèse transversale : les successions microbiennes de la fermentation lactique suivent une même logique écologique en milieu anoxique — dans les microsites du sol, dans le récipient de lactofermentation et lors de l'ensemencement du microbiote intestinal. La lactofermentation est, en quelque sorte, une microbiologie du sol confinée à un récipient contrôlé.
Succession canonique (légumes) : bactéries lactiques hétérofermentaires pionnières (Leuconostoc mesenteroides) amorcent l'acidification → Lactobacillus homofermentaires (L. plantarum) dominent à mesure que le pH chute → levures et acétobacters à l'interface oxique. La chute de pH stabilise le milieu et sélectionne les taxons acido-tolérants — séquence analogue à celle des microsites anoxiques du sol (Steinkraus, Handbook of Indigenous Fermented Foods). Cette succession est assez prévisible, mais sa reproductibilité dépend de la matrice, de la température et de la charge initiale.
Thermodynamique : la fermentation conserve l'énergie chimique du substrat (vs dissipation thermique du compostage aérobie), voie plus efficace sous anoxie ; positionnable sur la boussole Eh-pH (Pourbaix).
Continuum vers l'humain : les aliments fermentés (kéfir, kimchi, choucroute, miso) apportent lactobacilles vivants et métabolites bioactifs qui nourrissent le microbiote intestinal — un ensemencement toutefois largement transitoire —, prolongeant le continuum sol-aliment-santé. (C'est l'une des plus anciennes technologies alimentaires, parmi d'autres procédés au moins aussi anciens comme le séchage ou le fumage.)
Cards en dialogue (8)
- Voir aussi (8)
-
- Fermentations appliquées : bokashi, EM, KNF, JADAM, LiFoFer
- Continuum sol-plante-humain : le fil rouge du corpus
- PNSB (Purple Non-Sulfur Bacteria) : Rhodopseudomonas et la biofertilisation photosynthétique multi-fonctionnelle
- Mycobiome intestinal et axe gut-brain fongique : le 3ᵉ domaine oublié de la santé humaine
- Continuum sol-aliment-santé : ratio Na/K alimentaire et mortalité cardiovasculaire
- Doctrines fermentaires KNF vs JADAM : matrice des oppositions de Cho Han Kyu et Cho Youngsang
- Axe sucre simple → dysbiose intestinale → maladie cardiométabolique
- Conservation-transfert : stocker sans perte, laisser le sol transformer
Le ratio C/N du paillage pilote le ratio Fungi/Bacteria du sol
Un paillage ligneux élève des champignons ; une tonte fraîche élève des bactéries.
Le bois et les branchages, riches en carbone, favorisent les champignons — les architectes des sols stables, façon forêt. Les herbes jeunes, riches en azote, favorisent les bactéries à cycle rapide, qui libèrent vite les minéraux. Un paillage mixte, c'est une communauté mixte.
Un seul garde-fou : un bois frais, très chargé en carbone, accapare l'azote en passant — cette « faim d'azote » qui peut jaunir la culture. On l'anticipe, surtout sur les planches cultivées en permanence.
Science
Levier pratique : le type de paillage, via son ratio C/N, oriente la succession microbienne de surface et influence le ratio fongique/bactérien (F/B) du sol — un facteur parmi d'autres, le F/B dépendant aussi du travail du sol, du pH, de l'humidité et de la profondeur d'apport.
- paillage carboné/ligneux (BRF, broyat — C/N élevé, lignine + cellulose) → communautés fongiques (saprophytes lignolytiques, puis réseau mycorhizien) ;
- paillage vert/azoté (tonte, résidus jeunes — C/N bas) → communautés bactériennes à turnover rapide ;
- paillage mixte → module le gradient.
Le F/B est un indicateur de stade successionnel : tendance fongique = systèmes pérennes/forestiers, stables, à rétention ; tendance bactérienne = systèmes perturbés/annuels, à minéralisation rapide.
Garde-fou C/N : un paillage ligneux frais (C/N > 25) impose une faim d'azote transitoire (immobilisation microbienne de N tant que le carbone excédentaire n'est pas respiré) — à anticiper, surtout en planches permanentes où l'apport est de surface.
Cards en dialogue (7)
- Voir aussi (7)
-
- Amendements organiques : compostage aérobie thermophile vs fermentations vs autres voies
- MO–argile → transition stœchiométrique → stratégies microbiennes
- Cycle du carbone : de la photosynthèse à la MAOM
- Faim d'azote comme outil agronomique : déprise adventice et sélection de cortège
- Scavenging vs Mining : stratégies fongiques d'acquisition des nutriments dans le sol
- Biomarqueurs fonctionnels du sol vivant : diagnostic par activités et ratios plutôt que par stocks
- Couverts végétaux : design, biomasse et services rendus
Sélénium : marge thérapeutique étroite et mimétisme sulfate : pendant Se du continuum sol-aliment-santé
C'est la « carence invisible ».
Le sélénium entre dans la plante en imitant le soufre, dont il détourne les transporteurs. Dans le sol, sa forme change avec l'oxygène et l'acidité, ce qui décide s'il est disponible ou piégé.
Sa marge est la plus étroite des oligo-éléments : trop peu et le cœur souffre, trop et il devient toxique. Or sa présence dans le sol dépend fortement de la région. La biofortification — enrichir les plantes par voie foliaire plutôt que par le sol — est la correction la plus efficace.
Science
Le sélénium est non essentiel à la plante mais strictement essentiel à l'humain (~25 sélénoprotéines : glutathion peroxydases antioxydantes, désiodases thyroïdiennes) — d'où des cultures vigoureuses mais nutritionnellement insuffisantes (« carence invisible »).
Spéciation redox dans le sol : sélénate (SeO₄²⁻, +VI, oxique et mobile) vs sélénite (SeO₃²⁻, +IV, adsorbé sur les oxydes de fer), sous contrôle Eh/pH/microbes (Pseudomonas, Bacillus → nanoparticules biogéniques, méthylation).
Absorption par mimétisme moléculaire : le sélénate détourne les transporteurs de sulfate (famille SULTR) et emprunte la voie d'assimilation du soufre (ATP sulfurylase → APS réductase → sélénocystéine → sélénométhionine) ; le sélénite passe par les voies phosphate/silicium.
Marge thérapeutique étroite, unique parmi les oligo-éléments : carence (< 40-55 µg/j, maladie de Keshan) → optimum (RDA 55 µg/j ; UL 400 µg/j, apports de référence DRI américains — synthèse clinique : Rayman, 2012) → toxicité/sélénose (> 400 µg/j) ; biomarqueur SELENOP, plateau de saturation 90-130 µg/L.
Dépendance géographique forte (sols pauvres d'Europe et de Chine), aggravée par la déplétion climatique des sols (−4 % médian en Europe d'ici la fin du siècle — Jones et al., 2024). Correction : biofortification foliaire > sol, nanofertilisants Se (multiplication possible de la teneur en Se du grain, sous forme de sélénométhionine biodisponible — Schiavon et al., 2020), SeNPs biogéniques.
Pendant sélénium de la famille micronutriments → santé ; couple thyroïdien avec l'iode.
Cards en dialogue (8)
- Voir aussi (7)
-
- Continuum sol-plante-humain : le fil rouge du corpus
- Densité nutritionnelle alimentaire (sol → assiette)
- Carence silencieuse en cobalt et transfert trophique sol-plante-microbiome humain : pendant Co du continuum sol-aliment-santé
- Paradoxe P-Zn et biofortification du zinc : pendant Zn du continuum sol-aliment-santé
- Iode : axe thyroïdien et maillon sol-plante ténu : pendant I du continuum sol-aliment-santé
- Soufre : co-limitation N:S, acides aminés soufrés et antagonisme S-Se : pendant S du continuum sol-aliment-santé
- Axe thyroïdien I-Se-Fe : le triptyque substrat–organification–activation
Iode : axe thyroïdien et maillon sol-plante ténu : pendant I du continuum sol-aliment-santé
Pourtant il est vital pour nous — c'est l'unique matière première des hormones thyroïdiennes, qui règlent le développement du cerveau. Sa carence est la première cause évitable de déficience intellectuelle dans le monde.
Deux voies de correction s'opposent : enrichir le sel, qui court-circuite le lien au sol, ou enrichir les plantes, qui le réancre. Ironie du sort : la campagne mondiale pour réduire le sel menace cet apport iodé — un paradoxe à surveiller.
Science
L'iode est sans rôle essentiel connu chez la plante (désormais reconnu micronutriment bénéfique par hormèse : signalisation, défense antioxydante) mais strictement vital pour l'humain — constituant unique des hormones thyroïdiennes T3/T4.
C'est le maillon sol-plante le plus ténu de la famille micronutriments : iode volatil et lessivé (demi-vie de l'iodure ≈ 4 h, de l'iodate ≈ 10 h ; réduction IO₃⁻→I⁻ en < 5 h), retenu surtout par la matière organique (organo-iodés formés par des oxydases microbiennes), repoussé par les argiles (affinité quasi nulle pour I⁻), volatilisé en iodure de méthyle (CH₃I) par méthylation microbienne.
Axe thyroïdien I-Se-Fe : l'iode est le substrat, organifié par la thyroperoxydase (TPO, héminique → dépendante du fer) ; le sélénium active la conversion T4→T3 (désiodases à sélénocystéine).
Enjeu humain maximal : ~2 milliards de personnes carencées, première cause évitable de déficience intellectuelle (Zimmermann, 2009 ; Andersson et al., 2012) — pertes de QI pouvant atteindre une dizaine de points en carence sévère, millions d'enfants affectés chaque année.
Deux modèles de correction : l'iodation universelle du sel (étalon-or) a longtemps court-circuité le maillon sol-plante ; la biofortification agronomique (KI/KIO₃ foliaire, co-biofortification I+Se) ré-ancre la correction dans le continuum. Paradoxe : la cible OMS de −30 % de sel menace l'apport iodé (troubles thyroïdiens projetés en hausse).
Pendant iode de la famille micronutriments → santé ; couple thyroïdien avec le sélénium.
Cards en dialogue (9)
- Voir aussi (9)
-
- Continuum sol-plante-humain : le fil rouge du corpus
- Densité nutritionnelle alimentaire (sol → assiette)
- Triade Fe/Mo/Co pour la nitrogénase : stoechiométrie micronutritionnelle de la fixation biologique de l'azote
- Carence silencieuse en cobalt et transfert trophique sol-plante-microbiome humain : pendant Co du continuum sol-aliment-santé
- Paradoxe P-Zn et biofortification du zinc : pendant Zn du continuum sol-aliment-santé
- Immunité nutritionnelle : forme d'azote (NH₄⁺/NO₃⁻) → protéosynthèse → signalisation JA-SA
- Sélénium : marge thérapeutique étroite et mimétisme sulfate : pendant Se du continuum sol-aliment-santé
- Bore : carence la plus répandue, paroi/fécondation et marge étroite : pendant B du continuum sol-aliment-santé
- Axe thyroïdien I-Se-Fe : le triptyque substrat–organification–activation
Immunité nutritionnelle : forme d'azote (NH₄⁺/NO₃⁻) → protéosynthèse → signalisation JA-SA
Un excès d'azote — surtout sous forme ammoniacale — pousse la plante à accumuler des sucres et des acides aminés au lieu de fabriquer ses protéines de défense : un vrai buffet ouvert pour les pucerons et les maladies. Tendance générale, qui varie selon l'espèce, le stade et la dose : l'azote nitrique tend à stimuler les signaux d'alarme de la plante, l'azote ammoniacal les atténue. Et le piège se referme avec les pesticides : en perturbant le métabolisme de la plante, ils rendent les tissus plus appétissants pour les ravageurs. Autrement dit, le remède nourrit parfois le problème : trop d'azote et de pesticides entretiennent ensemble des plantes fragiles.
Science
Mécanisme central de la trophobiose (Chaboussou) : la forme d'azote assimilée gouverne l'immunité de la plante. Un excès d'azote — surtout ammoniacal (NH₄⁺) — inhibe la protéosynthèse et fait accumuler des métabolites solubles (acides aminés libres, sucres réducteurs), « effet cafétéria » pour les piqueurs-suceurs et les biotrophes (susceptibilité induite).
Dualité physiologique (tendance dominante, modulée par l'espèce, le stade et la dose — pas une loi absolue) : le nitrate (NO₃⁻) tend à stimuler l'oxyde nitrique et l'acide salicylique (résistance), tandis que l'ammonium les atténue ; la saturation azotée amortit le burst de jasmonate (arbitrage croissance/défense).
Leviers : piloter le ratio NH₄⁺/NO₃⁻, réduire le réservoir d'azote soluble, restaurer le crosstalk JA-SA. C'est la racine agronomique de la cascade qui alimente le résistome et la dépendance phytosanitaire (continuum One Health).
Volet pesticides (Martinez et al., 2021) : le mécanisme déborde l'azote. Les pesticides — dont le glyphosate — perturbent le métabolisme primaire et font accumuler des acides aminés spécifiques (glutamine, arginine, asparagine), augmentant la « qualité nutritionnelle » des tissus pour ravageurs et pathogènes. Le « remède » nourrit le problème : intrants azotés et phytosanitaires entretiennent un cercle vicieux de susceptibilité.
Cards en dialogue (25)
- Contredit
- À lire d’abord
- Voir aussi (21)
-
- Stratégies microbiennes : r/K et Y-A-S (rendement, acquisition, stress) le long de la succession
- Azote (formes, pertes) → stœchiométrie → stratégies microbiennes
- Résistome et transfert horizontal : la face sombre du continuum
- Continuum ami-ennemi microbien : plasticité rapide des statuts
- Phages et transduction des ARG : réservoir silencieux du résistome
- Diagnostic plante : pH et EC de sève foliaire/pétiolaire comme signatures nutritionnelles précoces
- Triangle des maladies végétales × extrêmes climatiques : cadre diagnostique renouvelé
- Cobalt, vitamine B12 et fixation biologique de l'azote : la chaîne oligoélémentaire oubliée
- Mycobiome intestinal et axe gut-brain fongique : le 3ᵉ domaine oublié de la santé humaine
- Brix réfractomètre : seuils opérationnels et interprétation agronomique
- Cycle de l'azote : fixation, minéralisation, nitrification, pertes
- Iode : axe thyroïdien et maillon sol-plante ténu : pendant I du continuum sol-aliment-santé
- Diagnostic par la sève : doctrine de calibration et limites des seuils « absolus »
- Crosstalk JA-SA : le dispatcher hormonal de la défense végétale
- Priming immunitaire végétal : opérateur cellulaire commun aux voies endogène (rhizosphère/ISR) et exogène (éliciteurs/PTI-SAR)
- Rhizosphère
- Phytohormones : le langage moléculaire de la plante
- Trophobiose (Chaboussou) : la plante nourrie attire son ravageur
- Voie du shikimate et EPSPS : inhibition par le glyphosate et conséquences microbiennes
- Séquence des formes d'azote : du nitrate à l'azote organique le long du gradient de carbone
- Les 4 stades culturaux à dominance hormonale
Calibration régionale du diagnostic de santé du sol : SMAF/CASH/SHAPE et groupes de pairs
Comparer un sol sableux à une argile, c'est juger un poisson sur sa façon de grimper.
La nouvelle approche compare donc chaque sol à ses pairs — même texture, même climat — et transforme la mesure brute en note relative. Un sol sableux peut alors briller parmi les sableux, là où il paraîtrait pauvre à côté d'une argile.
Cette lecture révèle l'écart entre ce que fait le sol et ce qu'il pourrait faire, en séparant la limite naturelle de l'effet de la conduite. Le kit minimal tient en trois mesures : le carbone, la stabilité des mottes, et la vitesse à laquelle le sol respire.
Science
Cadre d'interprétation du diagnostic de santé du sol qui dépasse les seuils universels arbitraires (source d'erreurs) au profit d'une calibration contextuelle.
Évolution des indices composites : SMAF (Soil Management Assessment Framework) et CASH (Comprehensive Assessment of Soil Health) → SHAPE (Soil Health Assessment Protocol and Evaluation), construit sur plus de 14 600 observations par modèles bayésiens.
Principe des groupes de pairs : un indicateur (carbone organique, stabilité des agrégats…) est comparé au sein d'un groupe climato-édaphique homogène (texture, sous-ordre taxonomique, climat), transformant une mesure brute en percentile de performance (0-100 %). Le soil health opportunity gap quantifie l'écart au potentiel du site, distinguant la contrainte intrinsèque (texture) de l'effet de la gestion.
Jeu minimal recommandé : carbone organique + stabilité des agrégats + minéralisation du carbone sur 24 h.
Cards en dialogue (7)
- Approfondi par
- Voir aussi (5)
-
- Diagnostic terrain intégré : du profil bêché au tableau de bord biologique
- Transition : chronoséquence 4 phases et indicateurs de suivi
- rH2, capacité redox et poising capacity : au-delà de l'Eh ponctuel
- Tests enzymatiques β-glucosidase / phosphatase / uréase : protocoles et seuils
- Biomarqueurs fonctionnels du sol vivant : diagnostic par activités et ratios plutôt que par stocks
Bore : carence la plus répandue, paroi/fécondation et marge étroite : pendant B du continuum sol-aliment-santé
Et c'est l'une des carences les plus répandues aux champs.
Dans le sol, il est traître : il file avec l'eau en sol sableux et acide, mais se fige en sol calcaire. Sa marge est l'une des plus étroites — l'écart entre ce qui manque et ce qui brûle est minuscule.
La correction se fait donc en douceur, par petites touches sur les feuilles plutôt qu'en une seule fois. Chez l'humain, il n'est pas formellement essentiel mais utile — son apport suit simplement la richesse des végétaux consommés.
Science
Le bore est un micronutriment essentiel à la plante — réticulation de la paroi cellulaire (complexes borate–rhamnogalacturonane II), intégrité membranaire et surtout fécondation (germination du pollen, croissance du tube pollinique) — et l'une des carences les plus répandues en grandes cultures.
Dans le sol : présent en borate (H₃BO₃ / B(OH)₄⁻), très lessivable en sols sableux et acides mais bloqué en sols calcaires et à pH élevé. Sa marge de suffisance est l'une des plus étroites des oligoéléments — l'écart entre carence et toxicité est faible.
Chez l'humain, le bore n'est pas formellement essentiel mais bénéfique (métabolisme osseux, équilibre Ca/Mg, hormones stéroïdes) ; son apport dépend de la teneur des végétaux consommés.
Correction : apport foliaire privilégié et fractionné (marge étroite), chélation, raisonnement selon le pH (blocage calcaire). Pendant bore de la famille des oligoéléments du continuum sol-aliment-santé.
Cards en dialogue (5)
- Voir aussi (5)
-
- Continuum sol-plante-humain : le fil rouge du corpus
- Densité nutritionnelle alimentaire (sol → assiette)
- Iode : axe thyroïdien et maillon sol-plante ténu : pendant I du continuum sol-aliment-santé
- Fer : chlorose, sidérophores et anémie ferriprive : pendant Fe du continuum sol-aliment-santé
- Magnésium : chlorophylle, antagonisme cationique et déclin cardiovasculaire : pendant Mg du continuum sol-aliment-santé
Fer : chlorose, sidérophores et anémie ferriprive : pendant Fe du continuum sol-aliment-santé
D'où ces feuilles qui jaunissent en sol calcaire.
Les microbes viennent à la rescousse : ils fabriquent de petites pinces — les sidérophores — qui capturent le fer et le livrent aux racines, aidés par l'acidification locale. La plante collabore au lieu de se battre seule.
Chez l'humain, le fer est le cœur de l'hémoglobine, et sa carence est la première cause d'anémie au monde. Sa disponibilité dépend aussi de l'assiette : certains composés végétaux le retiennent, la vitamine C le libère.
Science
Le fer est essentiel à la plante (synthèse de la chlorophylle, enzymes redox, chaîne photosynthétique) — sa carence donne la chlorose ferrique, fréquente en sols calcaires.
Dans le sol : abondant mais sous forme d'oxydes de Fe(III) peu solubles, surtout à pH élevé (blocage calcaire). Sa mobilisation passe par les sidérophores microbiens et les phytosidérophores, la réduction Fe(III)→Fe(II) et l'acidification rhizosphérique.
Chez l'humain, le fer est le cœur de l'hémoglobine : sa carence est la première cause d'anémie et l'une des carences nutritionnelles les plus répandues au monde. Sa biodisponibilité alimentaire est abaissée par l'acide phytique (et l'antagonisme avec le zinc) et améliorée par la vitamine C.
Correction : chélates (Fe-EDDHA en sol calcaire), foliaire, biofortification ; côté biologie, stimuler la mobilisation microbienne (sidérophores). Pendant fer de la famille des oligoéléments du continuum sol-aliment-santé, et maillon de l'axe thyroïdien I-Se-Fe (thyroperoxydase héminique).
Cards en dialogue (9)
- Approfondi par
- Voir aussi (8)
-
- Continuum sol-plante-humain : le fil rouge du corpus
- Densité nutritionnelle alimentaire (sol → assiette)
- Magnésium : chlorophylle, antagonisme cationique et déclin cardiovasculaire : pendant Mg du continuum sol-aliment-santé
- Bore : carence la plus répandue, paroi/fécondation et marge étroite : pendant B du continuum sol-aliment-santé
- Manganèse : disponibilité redox (carence ⇄ toxicité), oxydation de l'eau au PSII et défense : pendant Mn du continuum sol-plante
- Axe thyroïdien I-Se-Fe : le triptyque substrat–organification–activation
- Antagonismes et synergies cationiques (Ca-Mg-K-Na) : la doctrine de l'équilibre ionique
- Profil sol acide / podzol : toxicité aluminique, blocage du phosphore et chaulage
Magnésium : chlorophylle, antagonisme cationique et déclin cardiovasculaire : pendant Mg du continuum sol-aliment-santé
Une plante qui en manque jaunit entre les nervures, comme éteinte de l'intérieur.
Dans le sol, il se dispute la place avec le potassium et le calcium — un excès de l'un entraîne la carence de l'autre. Il est aussi facilement lessivé sur sols sableux et acides.
Chez l'humain, il est cofacteur de centaines d'enzymes et s'arrime à l'équilibre sel/potassium du cœur. Son déclin dans nos aliments — sols appauvris et raffinage — est documenté et associé à un risque cardiométabolique accru. Le vert de vos plantes et le rythme de votre cœur tiennent au même atome.
Science
Le magnésium est essentiel à la plante : atome central de la chlorophylle, cofacteur de centaines d'enzymes, stabilisation de l'ATP et des ribosomes. Sa carence donne une chlorose internervaire des vieilles feuilles.
Dans le sol : cation échangeable sur le complexe, en équilibre antagoniste avec K⁺ et Ca²⁺ (un excès de l'un induit la carence de l'autre — doctrine cationique) ; lessivable en sols sableux et acides.
Chez l'humain, le magnésium est cofacteur de plus de 300 enzymes et de la Na/K-ATPase — d'où son couplage direct à l'équilibre sodium/potassium cardiovasculaire. Son déclin alimentaire (sols appauvris + raffinage) est documenté et associé à un risque cardiométabolique accru.
Correction : amendements (dolomie en sol acide, sulfate de Mg/kiesérite si pH correct), foliaire ; surveiller l'antagonisme K/Mg (ratio ≈ 1:1 proposé favorable dans certains contextes, sans seuil universel). Pendant magnésium de la famille des oligoéléments du continuum sol-aliment-santé, couplé à l'équilibre cationique Na/K.
Cards en dialogue (7)
- Voir aussi (7)
-
- Continuum sol-plante-humain : le fil rouge du corpus
- Cycle du potassium : minéraux primaires, KSB et biodisponibilité dans les sols vivants
- Densité nutritionnelle alimentaire (sol → assiette)
- BCSR vs SLAN : doctrine équilibre cationique et limites du système Albrecht
- Bore : carence la plus répandue, paroi/fécondation et marge étroite : pendant B du continuum sol-aliment-santé
- Fer : chlorose, sidérophores et anémie ferriprive : pendant Fe du continuum sol-aliment-santé
- Antagonismes et synergies cationiques (Ca-Mg-K-Na) : la doctrine de l'équilibre ionique
Diagramme Eh-pH (Pourbaix) : domaines de stabilité et spéciation redox des éléments
Le diagramme qui croise ces deux axes est la carte qui prédit quelle forme est présente, donc disponible pour la plante.
Le fer en est l'exemple le plus parlant : selon la zone de la carte où se trouve le sol, il est soit de la rouille solide qui piège le phosphore, soit du fer dissous qui le libère. L'azote bascule lui aussi entre formes mobiles et formes piégées selon ce même couple.
L'acidité et la tension sont liées : bouger l'une déplace l'autre. Lire ce couple plutôt qu'un seul chiffre, c'est anticiper quelles formes de nutriments la plante va réellement trouver.
Science
Le diagramme Eh-pH (ou de Pourbaix) représente les domaines de stabilité des espèces chimiques en fonction du potentiel redox (Eh, ordonnée) et du pH (abscisse). C'est la « carte » qui prédit, pour un couple donné, quelle forme est stable et biodisponible.
Lecture : un point (Eh, pH) situe l'état redox-acidobasique du milieu et indique la spéciation des éléments redox-sensibles — Fe (Fe²⁺ mobile vs oxyhydroxydes Fe³⁺), Mn, N (NH₄⁺/NO₂⁻/NO₃⁻), S, et le P (mobilisé avec le Fe réduit). Eh et pH sont couplés : à 25 °C, une variation d'une unité de pH déplace l'Eh d'environ −59 mV (le rH2 normalise cette dépendance pour comparer les sols).
Zones : la fenêtre favorable à la biologie du sol se situe grossièrement vers Eh +200 à +400 mV à pH neutre (bornes variables selon les sources — +300 à +500 mV souvent cités) ; en dessous s'enchaîne la réduction (dénitrification, ferro-réduction, méthanogenèse — l'échelle redox) ; au-dessus, l'oxydation.
Prudence : l'électrode Pt mesure un potentiel mixte hors équilibre (dérive thermique diurne ~200 mV) — un point Pourbaix expérimental se lit en écarts relatifs, pas en valeur absolue.
mesure DU pH — la valeur dépend de la méthode : pH-eau, pH-KCl (1 M) ou pH-CaCl₂ (0,02 M), avec un écart courant de ~0,5-1 unité (le pH-KCl/CaCl₂ plus bas). Pour la toxicité aluminique, le pH-KCl (ou mieux l'aluminium échangeable, voire le pH-CaCl₂ vers lequel migre la pédologie) est un meilleur indicateur que le pH-eau, qui surestime la disponibilité (le KCl 1 M tend lui à surestimer l'Al toxique en ignorant la complexation par le carbone organique dissous). « Quel pH ? » est donc une question de méthode, pas une constante (conventions pH-eau/KCl/CaCl₂ et biais Al du KCl : Delhaize & Ryan 1995 ; Anderson et al. 2023).
Cards en dialogue (5)
- Donne naissance à
EROI : retour énergétique des systèmes agricoles (énergie utile / énergie investie)
Un EROI de 2 signifie qu'on récolte deux fois plus d'énergie qu'on n'en a dépensé ; en dessous de 1, le système brûle plus qu'il ne rend.
Cette jauge raconte une histoire que l'argent cache : l'agriculture industrielle, une fois comptée l'énergie des engrais, du carburant et des machines, affiche des retours énergétiques souvent faibles — parfois proches de 1, voire inférieurs à 1 pour certains maïs conventionnels. Les systèmes préindustriels étaient, eux, de vraies sources nettes d'énergie.
L'explication : l'agroécosystème a été désintégré — élevage séparé des cultures, cycles rompus — et le pétrole a compensé cette perte. L'illusion d'une productivité record masque une efficacité en berne.
Science
L'EROI (Energy Return On Investment) est le ratio entre l'énergie utile produite par un système et l'énergie investie pour la produire — une métrique de comparaison énergétique des systèmes agricoles, complémentaire des bilans monétaires et carbone.
Principe : un système n'est soutenable que si son EROI dépasse nettement 1 ; plus il est élevé, plus le système est autonome énergétiquement. L'agriculture industrielle, très dépendante des intrants fossiles (engrais de synthèse via Haber-Bosch, carburant, mécanisation), affiche souvent un EROI faible une fois l'énergie externe comptabilisée — parfois proche de 1 en énergie alimentaire nette (fortement variable selon le périmètre : < 1 pour certains systèmes maïs conventionnels chez Pimentel, de l'ordre de 1,5-3 dans d'autres études — revue : Giampietro, 2024).
Intérêt : l'EROI rend visible le coût énergétique réel masqué par la seule comptabilité monétaire (énergie fossile sous-évaluée, subventions), et permet de comparer sans biais conventionnel vs agroécologie / ACS / maraîchage sol vivant.
Limites : le périmètre comptable (frontières du système, énergie du travail humain, qualité de l'énergie — l'exergie) change fortement le résultat ; un EROI doit toujours préciser ses bornes.
Le « piège énergétique » (Tello 2023 ; Hall → Lambert et al. 2014 en substitut) : les systèmes préindustriels étaient des sources nettes d'énergie ; les systèmes intensifs sont devenus des puits. Le déclin de l'EROI externe vient de la désintégration de l'agroécosystème (séparation élevage/cultures) et de la dépendance aux intrants fossiles compensant la perte de circularité interne ; l'illusion de productivité masque une efficacité énergétique en berne (Gingrich 2017).
Cards en dialogue (8)
- Approfondi par
- Voir aussi (5)
-
- Coût réel de l'énergie fossile et 'esclaves énergétiques'
- Socio-économique : travail, filières, risques et dépendances
- Autonomie et low-tech : réduire la dépendance aux intrants et technologies externes
- Fragilité systémique fossile : la dépendance aux intrants de synthèse comme point de rupture
- Révolution verte : Haber-Bosch, blé nain et modernisation agricole
Sodicité et dispersion argileuse : SAR, ESP et effondrement de la conductivité hydraulique
Le sodium, faiblement chargé mais très entouré d'eau, écarte les feuillets d'argile, là où le calcium les colle. Résultat : les argiles dispersées bouchent les pores, l'eau ne s'infiltre plus, le sol bat et asphyxie.
Pour le diagnostic, on mesure la part de sodium dans l'eau du sol et sur le complexe d'échange, et l'on regarde la « charge dispersive nette » — les éléments dispersants face au calcium, qui les colle.
La correction passe par le calcium : le gypse (sulfate de calcium) l'apporte sans alcaliniser, contrairement au chaulage. Une fois les argiles recollées, on lessive le sodium, puis la matière organique stabilise l'ensemble.
Science
La sodicité désigne l'excès de sodium échangeable (Na⁺) sur le complexe d'un sol, qui provoque la dispersion des argiles et l'effondrement de la structure.
Mécanisme : le Na⁺, à faible charge et grande sphère d'hydratation, écarte les feuillets argileux — à l'inverse du Ca²⁺ qui les flocule par pontage. Les argiles dispersées colmatent la porosité → effondrement de la conductivité hydraulique, battance, asphyxie.
Diagnostic : le SAR (Sodium Adsorption Ratio de la solution) et l'ESP (Exchangeable Sodium Percentage du complexe) ; la charge dispersive nette (Na+Mg+K dispersants vs Ca floculant) affine le risque — un ratio Ca/Mg trop faible aggrave la dispersion (le Mg²⁺ floculant moins que le Ca²⁺).
Correction : apport de calcium (gypse CaSO₄ — qui ne relève pas le pH, contrairement au chaulage), lessivage du Na après floculation, matière organique structurante. Concerne surtout les sols irrigués, salins-sodiques et certains argilo-limoneux.
Cards en dialogue (5)
- Voir aussi (5)
-
- Eau facteur limitant : potentiel, continuité hydraulique, diffusion des gaz
- Structure du sol (agrégats/EPS) → habitats → stabilité/résilience
- Battance / croûte / ruissellement (surface)
- Cycle de l'eau : potentiel hydrique, flux, résilience biologique
- Conductivité hydraulique / loi de Darcy : la vitesse de l'eau, attribut biologique du sol
Extraits microbiens aérobies : thé de compost oxygéné (AACT) et lombrithé
C'est le thé de compost.
Le brassage maintient l'air, qui garde en vie les bons microbes pendant qu'ils se multiplient ; une pointe de mélasse nourrit ce bouillon avant l'épandage. Objectif : repeupler et relancer la vie du sol, occuper les places libres, livrer des nutriments.
Soyons honnêtes : l'effet est inégal et discuté. Tout dépend de la qualité du compost de départ et de l'aération — un thé mal brassé tourne à l'aigre et peut même favoriser les pathogènes. C'est un coup de pouce dans un système vivant, pas un remède miracle ; et l'hygiène n'est pas un détail.
Science
Les extraits microbiens aérobies — thé de compost oxygéné (AACT, Actively Aerated Compost Tea) et lombrithé — consistent à extraire et multiplier, sous aération forcée, les micro-organismes d'un compost mûr ou d'un lombricompost, pour application au sol ou en foliaire.
Principe : à la différence des préparations anaérobies (bokashi, KNF, LiFoFer), l'aération maintient un cortège aérobie (bactéries, champignons, protozoaires) ; un ajout de carbone (mélasse) stimule un bloom microbien avant application. Objectif : inoculer/relancer la biologie, occuper les niches (exclusion compétitive), apporter des nutriments solubilisés.
Rigueur : l'efficacité des thés de compost est inégale et débattue en littérature révisée — elle dépend fortement de la qualité du compost source, de l'oxygénation (un thé mal aéré bascule en anaérobiose et peut favoriser des pathogènes), du timing et du sol receveur. À considérer comme un inoculum d'appoint dans un système (couverts, MO), pas une solution miracle ; risque sanitaire si matières fécales mal compostées (E. coli, Salmonella).
Cards en dialogue (6)
- Voir aussi (6)
-
- Amendements organiques : compostage aérobie thermophile vs fermentations vs autres voies
- Stratégies microbiennes : r/K et Y-A-S (rendement, acquisition, stress) le long de la succession
- Biostimulation indigène KNF/JADAM et thermodynamique redox
- Fermentations appliquées : bokashi, EM, KNF, JADAM, LiFoFer
- Biostimulants microbiens vs non-microbiens : cadre fonctionnel de la biostimulation
- Biofumigation : glucosinolates des Brassica → isothiocyanates, suppression des bioagresseurs telluriques
Biostimulants microbiens vs non-microbiens : cadre fonctionnel de la biostimulation
C'est un coach, pas un repas.
Deux familles se partagent le rôle : les substances sans vie (extraits d'algues, acides aminés, molécules qui déclenchent les défenses) et les inoculants vivants (bactéries et champignons amis, ferments). Leur mécanisme commun : réveiller les défenses, imiter les hormones, débloquer les nutriments, aider à traverser la sécheresse.
Mais c'est un levier, pas une baguette magique : il ne remplace pas un sol vivant. Son effet dépend du contexte, et il s'additionne aux fondations — couverts, matière organique, diversité — jamais à leur place.
Science
Cadre transversal de la biostimulation : un biostimulant n'apporte pas (ou peu) de nutriments mais module la physiologie de la plante ou du sol pour améliorer l'efficience d'usage des ressources, la tolérance aux stress et la qualité. Deux grandes familles :
- non-microbiens (substances actives) : éliciteurs (chitosane, oligogalacturonides, laminarine), extraits d'algues (phytohormones, bétaïnes, phycocolloïdes), hydrolysats et acides aminés (chélation, nutrition organique), acides humiques et fulviques (catégorie commerciale/réglementaire — le cadre « substances humiques » n'est pas mécanistique au sens du SCM) ;
- microbiens (inoculants vivants) : PGPR, mycorhizes, Trichoderma, ferments indigènes (KNF/JADAM, EM), SynComs caractérisées, co-inoculation rhizobienne.
Mécanismes communs : induction des défenses (priming ISR/SAR), production ou mimétisme de phytohormones, mobilisation et chélation des nutriments, tolérance osmotique et redox. Cadre réglementaire : Règlement (UE) 2019/1009 — texte officiel (distinct des fertilisants et des produits phytopharmaceutiques).
Doctrine : les biostimulants sont des leviers d'efficience, pas des substituts à un sol vivant ; leur effet est contexte-dépendant et se conçoit en complément des pratiques de fond (couverts, MO, diversité).
Cards en dialogue (9)
- Voir aussi (8)
-
- Biostimulation indigène KNF/JADAM et thermodynamique redox
- Éliciteurs biologiques exogènes : chitosane et oligogalacturonides (priming PTI/SAR)
- Extraits microbiens aérobies : thé de compost oxygéné (AACT) et lombrithé
- Autonomie et low-tech : réduire la dépendance aux intrants et technologies externes
- Trichoderma
- Santé du sol
- Microbiome du sol
- Mycorhize
Diagnostic par la sève : doctrine de calibration et limites des seuils « absolus »
Mais le piège, c'est de vouloir un chiffre universel.
Le sucre, l'acidité, la conductivité de la sève donnent une alerte précoce, avant l'apparition des symptômes. Sauf que les « valeurs idéales » qui circulent sont trompeuses : elles bougent selon l'espèce, l'organe, le stade, l'heure de la journée, l'hydratation.
La bonne méthode est donc relative : suivre la même culture dans le temps, la comparer à un témoin local, et croiser plusieurs mesures au lieu d'en isoler une. Ce sont des outils de pilotage et d'alerte, pas des verdicts.
Science
Doctrine de référencement du diagnostic par la sève (pH, EC, Brix, rH2, profil minéral). Ces mesures donnent une signature précoce de l'état nutritionnel intra-plante, mais leur interprétation par seuils universels est le principal écueil.
Le problème des seuils « absolus » : les valeurs repères de praticiens (Brix > 12, pH ~6, EC 2-6 mS/cm) circulent comme des constantes alors qu'elles varient fortement selon l'espèce, l'organe, le stade, l'heure et l'hydratation — d'où faux positifs et faux négatifs.
Doctrine de calibration (transposée du diagnostic de sol par groupes de pairs) : lire en relatif — suivi dans le temps sur une même parcelle/culture, comparaison à un témoin ou à un référentiel local (même espèce, même stade, même conduite), et croisement des paramètres (pH + EC + Brix + rH2) plutôt qu'un indicateur isolé.
Statut : outils de pilotage et d'alerte (fenêtres de vulnérabilité avant symptômes), non des verdicts — à articuler avec l'analyse de sol et l'observation agronomique.
Cards en dialogue (4)
- Voir aussi (4)
-
- Diagnostic plante : pH et EC de sève foliaire/pétiolaire comme signatures nutritionnelles précoces
- Triangle des maladies végétales × extrêmes climatiques : cadre diagnostique renouvelé
- Brix réfractomètre : seuils opérationnels et interprétation agronomique
- Immunité nutritionnelle : forme d'azote (NH₄⁺/NO₃⁻) → protéosynthèse → signalisation JA-SA
Biofumigation : glucosinolates des Brassica → isothiocyanates, suppression des bioagresseurs telluriques
C'est la biofumigation, la chimie douce des crucifères.
La moutarde ou le radis fourrager contiennent des molécules qui, quand la plante est broyée, se transforment en gaz volatil toxique pour les vers du sol, les champignons et les mauvaises herbes en germination. Un fumigant naturel, sans produit de synthèse.
Mais le geste a ses exigences : semer dense, broyer fin, enfouir aussitôt, humidifier et bâcher pour piéger le gaz, par temps doux. L'effet est bref et non sélectif — à forte dose, il touche aussi les alliés. Le bénéfice global (couvert, structure, matière organique) dépasse d'ailleurs le seul effet biocide.
Science
La biofumigation exploite les glucosinolates des Brassicacées (moutardes, radis fourrager, roquette) : à la destruction du couvert (broyage + incorporation humide), l'enzyme myrosinase hydrolyse les glucosinolates en isothiocyanates (ITC), composés volatils biocides à large spectre.
Cibles : nématodes (dont Meloidogyne), champignons telluriques (Fusarium, Rhizoctonia, Verticillium, Sclerotinia), certaines bactéries et adventices en germination — un « fumigant » naturel, sans bromure de méthyle.
Conditions d'efficacité : maximiser la biomasse et la teneur en glucosinolates (espèce/variété, destruction à floraison), broyer finement (libère la myrosinase), incorporer aussitôt et humidifier/bâcher pour piéger les ITC, par température douce. L'effet est transitoire (jours-semaines).
Limites : forte variabilité (espèce, sol, conditions), effet non sélectif (touche aussi des organismes bénéfiques à forte dose), et bénéfice global (couvert + structure + MO) qui dépasse le seul effet biocide. Levier du pilier « interférence ciblée » de la lutte intégrée.
Cards en dialogue (5)
- Voir aussi (5)
-
- Éliciteurs biologiques exogènes : chitosane et oligogalacturonides (priming PTI/SAR)
- Gestion systémique des nématodes à galles : rotations, cultures-pièges et régulation trophique
- Top-down vs bottom-up : doctrine de régulation des communautés microbiennes du sol
- Extraits microbiens aérobies : thé de compost oxygéné (AACT) et lombrithé
- ASD : désinfection anaérobie du sol par biofumigation
Sidérophores et voie de capture mycorhizienne : mobilisation biologique des micronutriments métalliques
Ce sont les microbes qui les débloquent : certaines bactéries des racines sécrètent de minuscules pinces chimiques, les sidérophores, capables d'arracher le fer à des oxydes très stables, surtout dans les sols alcalins. Le réseau des champignons symbiotiques des racines (mycorhiziens) prend le relais, explorant loin de la racine pour livrer ces métaux, en particulier le zinc et le cuivre. Sans cette mobilisation, les légumes et céréales seraient plus pauvres en micronutriments — l'une des causes de la faim cachée humaine. Entretenir la diversité microbienne (couverts, matière organique, mycorhization) vaut mieux que d'épandre des engrais peu disponibles.
Science
Mécanisme amont de la mobilisation biologique des micronutriments métalliques (Fe, Zn, Cu, Mn) du sol — le départ de la chaîne « micronutriments du sol → faim cachée ».
Sidérophores : des bactéries de la rhizosphère (et certains champignons) sécrètent ces molécules de très haute affinité qui chélatent et solubilisent le Fe³⁺ (et d'autres métaux) des oxydes peu disponibles, surtout à pH élevé ; le complexe est ensuite récupéré par la plante ou les microbes.
Voie de capture mycorhizienne : le réseau mycorhizien à arbuscules étend l'exploration bien au-delà de la rhizosphère et achemine les micronutriments mobilisés jusqu'à la plante — voie majeure d'acquisition du Zn et du Cu en particulier.
Portée : cette mobilisation microbienne conditionne la densité en micronutriments des tissus comestibles (biofortification biologique) et, en bout de chaîne, la faim cachée humaine. Levier régénératif : entretenir la diversité et l'activité microbienne (couverts, MO, mycorhization) plutôt que de compter sur des apports minéraux peu disponibles.
Cards en dialogue (8)
- Approfondit
- Voir aussi (6)
-
- Cry-for-help : recrutement stress-induit du microbiome
- Chélation organique et biostimulation foliaire : acides aminés, hydrolysats et mobilité des oligoéléments
- Glomaline : glycoprotéine fongique et stockage C profond
- Cuivre : rétention organique, transport d'électrons (plastocyanine) et accumulation cuprique : pendant Cu du continuum sol-plante
- Suppressivité
- Métabolites secondaires
Vésicules extracellulaires et small-RNA cross-règne : modalité moléculaire du dialogue holobionte
À l'arrivée, ces messages pourraient moduler l'activité des gènes du destinataire — la plante qui influe sur un pathogène, le microbe qui joue sur l'immunité de l'hôte. Ce serait une couche de dialogue qui complète les signaux chimiques habituels.
C'est un paradigme récent et encore en construction : la portée réelle dans le sol, la stabilité de ces vésicules et l'ampleur des transferts restent à établir. À raconter au conditionnel.
Science
Modalité moléculaire émergente du dialogue au sein de l'holobionte : les vésicules extracellulaires (EV), nanovésicules membranaires, transportent des petits ARN non codants (small non-coding RNA, sncRNA) entre règnes (plante ↔ champignon ↔ bactérie ↔ animal).
Mécanisme : ces sncRNA véhiculés par les EV peuvent réguler l'expression génique de l'organisme receveur (interférence ARN cross-règne) — la plante module la virulence d'un pathogène, le microbe influence l'immunité de l'hôte… C'est une couche de signalisation cross-règne qui complète les signaux chimiques (exsudats, hormones, volatils).
Portée pour le continuum : ce canal donne une base matérielle à la communication sol-microbe-plante (et potentiellement vers l'humain via l'alimentation), et un levier biotechnologique (le Spray-Induced Gene Silencing l'exploite).
Statut : paradigme récent et en construction — la portée in natura, la stabilité des EV dans le sol et l'ampleur réelle des transferts restent à établir. À manier au conditionnel.
Cards en dialogue (6)
- Approfondi par
- Voir aussi (5)
Manganèse : disponibilité redox (carence ⇄ toxicité), oxydation de l'eau au PSII et défense : pendant Mn du continuum sol-plante
C'est l'air qui décide.
Bien aéré, le manganèse s'oxyde et se verrouille sous une forme insoluble : la plante en manque. Gorgé d'eau et acide, il se dissout d'un coup jusqu'à devenir toxique. Le couplage avec le fer et le carbone règle cette bascule.
Chez la plante, il tient un rôle irremplaçable : c'est lui qui déchire l'eau pour fabriquer l'oxygène de la photosynthèse, et qui blinde les parois contre les maladies. Le piloter, c'est avant tout gérer le pH et l'aération — pas multiplier les apports.
Science
Le manganèse est un micronutriment essentiel à la plante dont la disponibilité est gouvernée par le couple redox–pH (paramètre pe+pH) : un même sol peut priver ou intoxiquer selon son état d'oxydoréduction.
Dans le sol : en milieu aéré / alcalin (Eₕ élevé, pH > 7), le Mn²⁺ s'oxyde — surtout par voie microbienne — en oxydes de Mn(III/IV) insolubles (MnO₂), d'où des carences ; en milieu engorgé / acide (anoxie), la réduction rapide de ces oxydes (en quelques jours à quelques semaines d'engorgement — Gotoh & Patrick, 1972) libère du Mn²⁺ soluble jusqu'à des seuils phytotoxiques. Couplage étroit avec les cycles du fer (oxydes Fe-Mn) et du carbone ; rhodochrosite (MnCO₃) si pe+pH < ~16 (équilibre d'après Lindsay, 1979).
Chez la plante : prélevé en Mn²⁺ (transporteurs NRAMP, IRT1, complexes Mn-nicotianamine via YSL ; riz : OsNRAMP5), il est peu mobile dans le phloème — d'où un diagnostic sur la feuille la plus récemment arrivée à maturité (carence 10–20 mg/kg MS). Fonctions irremplaçables : complexe d'oxydation de l'eau du Photosystème II (cluster Mn₄Cao₅, photolyse de l'eau), cofacteur de la Mn-superoxyde dismutase (détoxification des ROS), lignification et voie du shikimate (PAL) — donc défense structurale face aux pathogènes.
Gestion : piloter le pH et l'aération plutôt que multiplier les apports (le Mn au sol s'immobilise vite à pH élevé). Correction foliaire privilégiée — biocomplexes acides aminés (absorption foliaire favorisée à faible hygrométrie — Rezende et al., 2025) et nanoparticules de MnO₂ (entrée stomatique, sans phytotoxicité même à 4 g/L — Pinna et al., 2026). Pendant manganèse des oligoéléments du continuum sol-plante (couplage Fe-Mn, voisin du zinc).
Cards en dialogue (5)
- Voir aussi (5)
-
- Continuum sol-plante-humain : le fil rouge du corpus
- Densité nutritionnelle alimentaire (sol → assiette)
- Fer : chlorose, sidérophores et anémie ferriprive : pendant Fe du continuum sol-aliment-santé
- Cuivre : rétention organique, transport d'électrons (plastocyanine) et accumulation cuprique : pendant Cu du continuum sol-plante
- Couleur du sol : code Munsell et lecture chromatique du profil
Cuivre : rétention organique, transport d'électrons (plastocyanine) et accumulation cuprique : pendant Cu du continuum sol-plante
Il s'accroche avec une force exceptionnelle à la matière organique : celle-ci le retient quand elle est solide, mais le libère quand elle se dissout. Résultat, un double risque — carence sur sols pauvres, accumulation durable sous fongicides cupriques — et des bactéries du sol qui apprennent à y résister, entraînant parfois la résistance aux antibiotiques avec elles.
Chez la plante, il transporte les électrons de la photosynthèse et cimente les parois. La gestion tient en trois mots : corriger sans accumuler, en pilotant l'acidité et la matière organique plutôt que la dose.
Science
Le cuivre est un micronutriment essentiel à la plante (transport d'électrons, lignification) à fenêtre étroite : carence sur sols pauvres, mais accumulation toxique là où les traitements cupriques se répètent (vigne, vergers).
Dans le sol : affinité exceptionnelle pour la matière organique (log K des complexes Cu-humiques de l'ordre de 4 à 6 selon les modèles — Brümmer et al., 1986) — la MO solide immobilise le Cu (25-55 % irréversiblement non labile — Marzouk et al., 2022), mais la MO dissoute le mobilise (lixiviation). Double risque : carence sur sols sableux/organiques/calcaires, accumulation persistante sous fongicides cupriques (Cu moyen des sols européens ~17 mg/kg, vignobles ~49 mg/kg — Ballabio et al., 2018 ; exportations viticoles : Droz et al., 2021). Toxicité microbienne dès EC₅₀ 9-142 mg/kg (champignons les plus sensibles) → tolérance induite par la pollution et transfert horizontal de gènes de résistance au Cu (co-sélection avec les gènes de résistance aux antibiotiques, cf. résistome #57).
Chez la plante : prélèvement et redistribution via les transporteurs YSL (complexes Cu-nicotianamine ; YSL3/YSL16 → organes reproducteurs). En carence, le facteur SPL7 déclenche une « économie du cuivre » (micro-ARN Cu : miR397/398/408) qui sacrifie les cuproprotéines non essentielles (Cu/Zn-SOD, laccases) pour préserver la plastocyanine (transport d'électrons photosynthétique). Les laccases (oxydases multicuivre) assurent la lignification — leur déficit altère la déhiscence des anthères (stérilité mâle).
Gestion : « corriger sans accumuler » — piloter par le pH et la matière organique (capacité tampon), viticulture de précision (doses ciblées), diagnostic sur la biodisponibilité réelle (pH, aromaticité de la MO dissoute) plutôt que le Cu total ; nanofongicides à doses réduites mais sous vigilance (polluants émergents — toxicité nano vs bulk débattue). Pendant cuivre des oligoéléments du continuum sol-plante (voisin du zinc, partage la lignification avec le manganèse #175).
Cards en dialogue (4)
- Voir aussi (4)
-
- Continuum sol-plante-humain : le fil rouge du corpus
- Densité nutritionnelle alimentaire (sol → assiette)
- Sidérophores et voie de capture mycorhizienne : mobilisation biologique des micronutriments métalliques
- Manganèse : disponibilité redox (carence ⇄ toxicité), oxydation de l'eau au PSII et défense : pendant Mn du continuum sol-plante
Le tube digestif comme bioréacteur anaérobie : principe convergent du fermenteur intestinal (ver, ruminant, humain)
Partout, on retrouve les mêmes pièces : un milieu privé d'oxygène, des microbes qui digèrent les fibres végétales coriaces, un travail en chaîne où chacun nourrit le suivant, et une sortie commune — des acides gras qui nourrissent l'hôte, plus un peu de méthane.
Mais attention à ne pas tout confondre : le ver recycle vite le sol, la vache extrait l'énergie de la paille sur la durée, l'humain est entre les deux. Ce qui est partagé, c'est le plan d'architecture, pas le mode d'emploi.
Science
Cadre : lire le tube digestif animal comme un bioréacteur anaérobie à flux continu, architecture convergente réapparaissant à travers les taxons — drilosphère du ver de terre (card #21), rumen du ruminant (fiche #249), côlon humain (card #95) — toujours sur les mêmes invariants :
- anaérobiose (redox fortement négatif, #5) et régulation pH / temps de séjour ;
- guildes fibrolytiques (bactéries, champignons anaérobies) dégradant les polysaccharides végétaux récalcitrants ;
- syntrophie + transfert interspécifique d'H₂ vers les archées méthanogènes (card #81), la méthanogenèse jouant le rôle de puits d'H₂ (card #143) ;
- sortie en AGCC (acétate / propionate / butyrate, fiche #219) nourrissant l'hôte, + CH₄.
Pivot du continuum sol-animal-humain (card #56) : le fermenteur intestinal recycle la matière végétale en nutriments et minéraux biodisponibles, et connecte les microbiomes (sol ↔ plante ↔ animal ↔ humain), résistome inclus (card #57).
Déclinaisons divergentes (ne pas sur-unifier) : le ver (transit court, substrat sol + litière, finalité = stabilisation MAOM / bioturbation) diffère du rumen (rétention longue, lignocellulose, finalité = extraction énergétique) ; le côlon humain est intermédiaire. Le principe est l'architecture fonctionnelle partagée, pas une identité mécanistique.
Cards en dialogue (5)
- Voir aussi (5)
-
- Lombriciens : catégories écologiques, drilosphère, turricules, biopores et interactions racines
- Continuum sol-plante-humain : le fil rouge du corpus
- Mycobiome intestinal et axe gut-brain fongique : le 3ᵉ domaine oublié de la santé humaine
- Acides gras à chaîne courte (AGCC) : pivot fibres → barrière → immunité → axe intestin-cerveau
- Aquaponie sur sable (iAVs) : le lit de sable comme sol
Soufre : co-limitation N:S, acides aminés soufrés et antagonisme S-Se : pendant S du continuum sol-aliment-santé
C'est le paradoxe du soufre moderne.
Ce macronutriment, pilier du cycle avec le carbone, l'azote et le phosphore, circule dans le sol sous la seule impulsion des microbes. Sans lui, l'azote apporté en masse reste inutilisé : les deux avancent de pair, comme deux roues d'un même engrenage.
Le soufre entre aussi dans la construction de nos protéines — les acides aminés soufrés. Mais il a une face sombre : en sol inondé, trop de soufre peut aider à transformer le mercure en une forme neurotoxique. Un élément à la fois nourricier et à surveiller.
Science
Le soufre (S) est un macronutriment du verrou stœchiométrique CNPS, longtemps masqué par les retombées atmosphériques industrielles. La désulfuration de l'air (effondrement des émissions de SO₂) a fait rechuter de 34 à 86 % la disponibilité du S assimilable entre 2000 et 2020 (Sharma et al., 2024), exposant >20 % des terres agricoles à une carence potentielle — le « paradoxe du soufre moderne » : un gain sanitaire (qualité de l'air) devenu contrainte agronomique.
Cycle microbien : le S alterne entre les états d'oxydation −2 (sulfures) et +6 (sulfates), piloté quasi exclusivement par les micro-organismes via des gènes marqueurs — réduction assimilatrice (cysNC, cysH, sat), dissimilatrice (aprAB, dsrAB) et oxydation (soxB) — avec une régulation émergente par les gènes métaboliques auxiliaires (AMG) viraux des bactériophages telluriques.
Co-limitation N:S : le S gouverne la valorisation de l'azote (efficience nue). Ratio plante optimal N:S ≈ 15:1 (plante entière) à 17:1 (graines) (Salvagiotti et al., 2012) ; sans S synchronisé, l'azote massif reste non métabolisé (nitrates, pertes). Signature stœchiométrique de la MO stabilisée C:N:P:S ≈ 100:8:2:1,5 (ordre de grandeur variable selon les pools, card #45).
Continuum vers la santé (One Health) : le S est le constituant des acides aminés soufrés (méthionine, cystéine) → valeur biologique des protéines, ponts disulfures du gluten, arômes (méthanethiol). Antagonisme S-Se : sulfate (SO₄²⁻) et sélénate (SeO₄²⁻) partagent les transporteurs SULTR — un excès de S inhibe l'absorption du sélénium (card #159), d'où l'enjeu d'une biofortification équilibrée S-Se.
Écotoxicologie : en conditions anoxiques (rizières, zones humides), l'apport de sulfates stimule les bactéries sulfato-réductrices → méthylation du mercure (MeHg neurotoxique, bioamplifié) ; l'oxydation du S⁰ acidifie et mobilise Al/Mn. Leviers : biochar (séquestration du Hg en complexes stables — effet dépendant du type de biochar et de la température de pyrolyse, #82), soufre nanométrique, et pilotage de précision (capteurs hyperspectraux + modèles ML — Random Forest/YOLOv8s, R²=0,96).
Cards en dialogue (6)
- Voir aussi (6)
-
- Stœchiométrie CNPS et modèle AMG
- Continuum sol-plante-humain : le fil rouge du corpus
- Biochar : architecte de sol (habitat, CEC, C stable)
- Couplages biogéochimiques Fe-P-S-N sous alternance redox : vivianite, NDFO et gouvernance des nutriments
- Densité nutritionnelle alimentaire (sol → assiette)
- Sélénium : marge thérapeutique étroite et mimétisme sulfate : pendant Se du continuum sol-aliment-santé
Le sol comme incubateur évolutif : microsites anoxiques, reliques de l'Archéen et matière noire microbienne
Ces micro-sites sans oxygène, nichés dans les pores du sol, abritent des métabolismes ancestraux hérités d'un monde sans oxygène, vieux de plus de deux milliards d'années : transformation du fer, production de méthane. La grande majorité des microbes du sol reste inconnue faute de pouvoir les cultiver — une « matière noire » aux fonctions essentielles pour les cycles et le stockage du carbone. Or l'absence d'oxygène ralentit fortement la décomposition de la matière organique, ce qui préserve le carbone. Les sols cultivés abritent nettement moins de ces niches que les sols non travaillés. Conserver les sols, c'est protéger un patrimoine évolutif.
Science
Les sols modernes, globalement oxydés, abritent des microsites anoxiques (jusqu'à 85 % du volume des pores en sol non saturé) qui agissent comme des reliques évolutives de l'Archéen : ils préservent les métabolismes anaérobies ancestraux (ferriréduction, méthanogenèse, triade H₂-Fe-CH₄) hérités du monde pré-GOE (avant ~2,33 Ga).
Pilotage : ces microsites sont gouvernés par la demande microbienne locale (points chauds corrélés au carbone organique) en interaction avec la géométrie des pores (Keiluweit et al. 2017, card #119) ; leur persistance temporelle en fait des noyaux de réduction durables (card #118).
Matière noire microbienne : ~97 % des bactéries/archées des sols ne sont pas cultivées — branches évolutives majeures aux fonctions non redondantes (cycles, séquestration du carbone).
Enjeu climatique & agronomique : l'anaérobiose divise par ~10 la minéralisation du carbone — le passage anaérobie→aérobie multiplie par ~10 le taux volumique (Keiluweit et al. 2017 ; préservation des composés réduits) ; l'abondance des gènes anaérobies explique jusqu'à 41 % de la variance du carbone des sols cultivés, dont 5 % de variance unique une fois les autres mécanismes de protection pris en compte (Lacroix et al. 2024). Les pratiques de gestion façonnent ces niches : les sols non cultivés portent 2-4× plus de gènes anaérobies que leurs homologues cultivés (Lacroix et al. 2024) → conserver les sols, c'est protéger un patrimoine évolutif.
Cards en dialogue (8)
- Contredit
- Illustre
- Voir aussi (6)
-
- Soil Continuum Model (SCM) : fin du paradigme de l'humification, necromasse microbienne et fractions fonctionnelles MAOM/POM
- Mémoire redox et noyaux de réduction persistants : la dimension temporelle des microzones anoxiques
- Bascule paradigme microzones anoxiques : demande biologique vs géométrie de l'agrégat
- Archées Asgard et origine eucaryote : la lignée eucaryote prend ses racines dans le domaine archéen
- Couplage Méthane-Fer-Soufre archéen : oxydation anaérobie du méthane (AOM) et puits CH4 globaux
- Anaérobiose
Exposome chimique alimentaire et Reactobiome : le microbiote comme filtre des xénobiotiques
Ce réacteur intérieur digère, transforme ou neutralise ces substances : sa capacité à le faire — le « reactobiome » — dépend de sa diversité. Un microbiote appauvri, c'est un filtre qui laisse passer plus de toxines vers l'organisme.
La parade est en amont : cette diversité se construit largement au contact du sol, des plantes et des aliments fermentés. Un lien direct, encore une fois, entre la santé du sol et notre capacité à encaisser la chimie ambiante.
Science
L'alimentation est le vecteur d'un exposome chimique (micro/nanoplastiques (estimations très variables — de ~1 mg/j à 5 g/sem selon les études, les chiffres hauts débattus), additifs/émulsifiants, résidus de pesticides, métaux lourds) dont le microbiote intestinal est le premier réacteur. Face sombre chimique du continuum aliment-santé : MNP → hyperperméabilité intestinale, dysbiose et inflammation de bas grade ; émulsifiants à effet hétérogène (mono/diglycérides et polysorbates érodent le mucus dans certains modèles, lécithine relativement sûre) ; glyphosate inhibe la voie du shikimate des commensales. Réponse : le Reactobiome/Xénobiome — capacité du microbiote à métaboliser/détoxifier les xénobiotiques —, dont la résilience (diversité issue de l'axe Soil-Plant-Human Gut, « Edible Microbiome ») conditionne le seuil de toxicité systémique. Cadre One Health Microbiome, opérationnalisé par les feuilles de route EFSA/RIMICIA.
Cards en dialogue (6)
- Voir aussi (6)
-
- Continuum sol-plante-humain : le fil rouge du corpus
- Résistome et transfert horizontal : la face sombre du continuum
- Axe sucre simple → dysbiose intestinale → maladie cardiométabolique
- Continuum sol-aliment-santé : ratio Na/K alimentaire et mortalité cardiovasculaire
- PFAS : les polluants éternels du recyclage agricole
- Voie du shikimate et EPSPS : inhibition par le glyphosate et conséquences microbiennes
Autonomie et low-tech : réduire la dépendance aux intrants et technologies externes
Le low-tech n'est pas un retour en arrière, mais le choix de technologies appropriées, reproductibles et frugales.
Trois piliers se répondent : des intrants auto-produits (composts, fermentations, captures de micro-organismes indigènes) ; une efficience énergétique et économique qui évite les coûts cachés ; une souveraineté qui touche l'azote, les semences et l'alimentation.
Le vrai enjeu n'est jamais la recette, mais le mécanisme scientifique derrière elle : la thermodynamique et l'écologie microbienne qui permettent au vivant local de remplacer l'intrant acheté.
Science
Capacité d'un système agricole à réduire sa dépendance aux intrants et technologies externes (engrais de synthèse, inoculants standardisés, énergie fossile, capital) en mobilisant les ressources, la biologie et le savoir-faire de la ferme. Trois volets articulés : (1) intrants auto-produits / indigènes — biostimulations à la ferme (KNF, JADAM, LiFoFer — systèmes paysans de littérature grise —, bokashi, EM), capture de microorganismes locaux (IMO/IPMO), hydrolyses et solubilisations minérales maison ; (2) efficience énergétique et économique — EROI favorable, coûts cachés évités, faible capital, réparabilité ; (3) souveraineté — azotée (FBN vs Haber-Bosch), alimentaire et semencière, face à la fragilité systémique fossile. Le low-tech n'est pas un retour en arrière mais le choix de technologies appropriées, reproductibles et frugales (Schumacher, 1973 ; Bihouix, 2014) : l'intérêt réside dans le mécanisme générique (thermodynamique redox, écologie microbienne), jamais dans la recette typée.
Cards en dialogue (12)
- Contredit
- Approfondi par
- Voir aussi (9)
-
- Socio-économique : travail, filières, risques et dépendances
- Fermentations appliquées : bokashi, EM, KNF, JADAM, LiFoFer
- Cascade des coûts cachés : €0 direct → €5 civilisationnel (qui paye, et quand)
- Capture indigène vs inoculum standardisé : doctrine de l'origine du consortium microbien
- EROI : retour énergétique des systèmes agricoles (énergie utile / énergie investie)
- Biostimulants microbiens vs non-microbiens : cadre fonctionnel de la biostimulation
- Fragilité systémique fossile : la dépendance aux intrants de synthèse comme point de rupture
- Métabolisme sociétal : régimes minier vs circulaire
- Antifragilité des préparations microbiennes paysannes
Axe thyroïdien I-Se-Fe : le triptyque substrat–organification–activation
L'iode fournit la matière première des hormones ; le fer fait tourner l'enzyme qui l'assemble ; le sélénium active l'hormone une fois fabriquée. Trois rôles distincts, une seule chaîne : si un maillon manque, donner plus des deux autres ne sert à rien — et peut même nuire.
Or, pour ces trois éléments, le lien du sol à l'assiette est fragile. Raisonner la thyroïde, c'est donc penser la densité de ces minéraux dans la ration — et, en amont, leur présence dans le sol qui les fait pousser.
Science
La fonction thyroïdienne dépend de trois micronutriments en cascade, où la carence d'un seul rompt la chaîne — d'où l'intérêt de les penser ensemble.
- Iode = substrat : seul constituant irremplaçable des hormones T4 et T3 ; l'organification fixe l'iode sur les tyrosines de la thyroglobuline (card #160).
- Fer = organification : la thyroperoxydase (TPO), enzyme héminique, catalyse cette fixation ; une carence en fer (card #164) bride la synthèse hormonale indépendamment de l'iode.
- Sélénium = activation : les désiodases (sélénoprotéines, card #159) convertissent la T4 réservoir en T3 active dans les tissus, et protègent la glande du stress oxydatif de l'organification.
Conséquence diagnostique : une supplémentation iodée sur fond de carence en fer ou en sélénium est inefficace voire délétère. Le maillon sol→aliment étant ténu pour les trois, la densité de ces éléments dans la ration est un déterminant direct de la santé thyroïdienne.
Cards en dialogue (3)
- Voir aussi (3)
Acides gras à chaîne courte (AGCC) : pivot fibres → barrière → immunité → axe intestin-cerveau
Les fibres des légumes ne sont pas digérées par vous, mais fermentées par vos bactéries.
Ce festin produit de petites molécules qui nourrissent la paroi de l'intestin et la gardent étanche, calment l'inflammation et parlent même au cerveau par le nerf vague.
Le point décisif : ce petit carburant dépend des bactéries que vous hébergez, donc des fibres que vous mangez — elles-mêmes issues d'un sol vivant. La boucle se ferme, de la terre à votre ventre.
Science
Les acides gras à chaîne courte (AGCC : acétate, propionate, butyrate) sont produits par la fermentation bactérienne des fibres dans le côlon — maillon central reliant la qualité du sol à la physiologie humaine.
- Énergie et barrière : le butyrate est le carburant des colonocytes ; il entretient les jonctions serrées et limite la perméabilité (« leaky gut »).
- Immunité : les AGCC induisent les lymphocytes T régulateurs (inhibition des histone-désacétylases, récepteurs GPR41/43), modulant l'inflammation systémique.
- Axe intestin-cerveau : propionate et butyrate influencent la signalisation vagale et les neuromédiateurs.
Leur production dépend d'un microbiote fermentaire diversifié et d'un apport en fibres — variables gouvernées par les pratiques agricoles. Les AGCC sont le pivot par lequel « la vie fait le sol » se prolonge en santé.
Cards en dialogue (4)
- Voir aussi (4)
-
- Mycobiome intestinal et axe gut-brain fongique : le 3ᵉ domaine oublié de la santé humaine
- Axe sucre simple → dysbiose intestinale → maladie cardiométabolique
- Continuum sol-aliment-santé : ratio Na/K alimentaire et mortalité cardiovasculaire
- Le tube digestif comme bioréacteur anaérobie : principe convergent du fermenteur intestinal (ver, ruminant, humain)
Antagonismes et synergies cationiques (Ca-Mg-K-Na) : la doctrine de l'équilibre ionique
Trop de l'un peut affamer la plante en un autre, même si cet autre est pourtant présent.
Versez trop de potassium, et la plante peine à absorber le magnésium : ses feuilles jaunissent, faute d'un élément qui est bien là, sous ses racines. Le calcium et le magnésium jouent le même jeu à trois.
La leçon à retenir : raisonner en équilibre entre ces éléments, selon le sol, plutôt qu'en doses isolées. Et la même grammaire se retrouve dans l'assiette — le rapport entre le sel et le potassium raconte la santé mieux que chacun pris à part.
Science
Les cations majeurs du complexe d'échange — calcium, magnésium, potassium, sodium — se gèrent comme un équilibre concurrentiel : l'excès de l'un induit la carence relative d'un autre par compétition à l'absorption et sur les sites d'échange.
- K ↔ Mg : un excès de potassium bloque l'absorption du magnésium → chlorose induite (card #165).
- Ca ↔ Mg ↔ K : les ratios relatifs fondent le débat BCSR Vs SLAN (card #117).
- Na ↔ K : le ratio Na:K, au champ comme dans l'assiette, prédit la mortalité cardiovasculaire mieux que chaque ion isolé (card #116).
Principe directeur : raisonner en ratios et en contexte (capacité d'échange, type de sol) plutôt qu'en absolus. L'antagonisme cationique relie la chimie du complexe d'échange (card #86) à la nutrition végétale puis humaine — une même grammaire ionique du sol à l'assiette.
Cards en dialogue (5)
- Voir aussi (5)
-
- Cycle du potassium : minéraux primaires, KSB et biodisponibilité dans les sols vivants
- Continuum sol-aliment-santé : ratio Na/K alimentaire et mortalité cardiovasculaire
- BCSR vs SLAN : doctrine équilibre cationique et limites du système Albrecht
- Fer : chlorose, sidérophores et anémie ferriprive : pendant Fe du continuum sol-aliment-santé
- Magnésium : chlorophylle, antagonisme cationique et déclin cardiovasculaire : pendant Mg du continuum sol-aliment-santé
Saturation du MAOM et plafond de séquestration : la limite du stockage organo-minéral
La voie la plus stable — le carbone collé aux particules d'argile et d'oxydes — finit par saturer, un peu comme une éponge qui ne peut absorber qu'une quantité donnée. Plus cette éponge se remplit, moins chaque gramme de carbone apporté trouve de place, et plus il est respiré au lieu d'être stocké. Concrètement, un sol déjà riche répond mal à des apports supplémentaires, alors qu'un sol appauvri offre la plus grande marge de stockage. Ce plafond tempère les promesses de séquestration : la capacité dépend de la nature des argiles et oxydes du sol et de son état de départ — et l'existence même de ce plafond universel fait encore débat parmi les chercheurs.
Science
La matière organique associée aux minéraux (MAOM) est la voie de stockage du carbone la plus stable (card #98, SCM), mais elle n'est pas illimitée : la capacité de sorption sur les surfaces minérales (argiles, oxydes Fe/Al) finit par saturer.
- Mécanisme : à mesure que les sites de surface se remplissent, l'efficience de stabilisation d'un C entrant supplémentaire décroît — le sol approche son plafond.
- Conséquence : un sol déjà riche en MAOM répond peu à un surcroît d'apports ; le potentiel additionnel est maximal dans les sols sous-saturés (texture fine appauvrie).
- Articulation : ce plafond borne la stœchiométrie de stabilisation (card #45) et conditionne l'arbitrage CUE — au-delà de la saturation, le C bascule vers la respiration plutôt que le stockage.
Le plafond MAOM tempère les promesses de « stockage de carbone » : la capacité est finie, fonction de la minéralogie et de l'état de saturation initial — paradigme débattu : capacité finie (Georgiou et al., 2022) vs absence de plafond universel (Begill et al., 2023).
Cards en dialogue (7)
- Voir aussi (7)
-
- Stœchiométrie CNPS et modèle AMG
- Cycle du carbone : de la photosynthèse à la MAOM
- Soil Continuum Model (SCM) : fin du paradigme de l'humification, necromasse microbienne et fractions fonctionnelles MAOM/POM
- Adsorption
- Oxydes Fe/Al
- Carbone organique du sol
- Pompe microbienne à carbone : voies in vivo/ex vivo, effet Tombeau et leviers d'activation
Carbon Use Efficiency (CUE) microbienne : l'arbitrage stockage / respiration
La part qu'il garde pour lui s'appelle l'efficacité d'utilisation du carbone, et c'est elle qui décide si le carbone est stocké ou perdu en gaz carbonique. Une efficacité élevée fabrique des microbes, puis leurs restes, qui viennent nourrir le stock stable du sol ; une efficacité faible laisse presque tout partir en respiration. Détail important : un chaulage peut à la fois aider les microbes à mieux utiliser le carbone frais des feuilles mortes, tout en accélérant la dégradation du vieux carbone déjà enfoui — un stockage qui se vide par un autre côté. Raisonner le stockage demande donc de distinguer ces deux compartiments.
Science
La Carbon Use Efficiency (CUE) est la fraction du carbone assimilé par les micro-organismes allouée à la biomasse plutôt que respirée en CO₂ — le paramètre charnière qui décide du sort du carbone exsudé.
- CUE élevée → plus de biomasse → plus de nécromasse → plus de MAOM (card #98). Un C labile à CUE élevée séquestre plus qu'un résidu ligneux récalcitrant (« paradoxe » du SCM).
- CUE basse → le C est majoritairement respiré : pas de stockage.
- Déterminants : stœchiométrie de la ressource (ratio C:N, card #45), température, communauté (stratégies r/K), nutriments, pH.
- Non-linéarité et dualité du substrat : l'effet du pH sur la CUE est non linéaire (creux puis remontée au-delà d'un point d'inflexion). La CUE n'est par ailleurs pas monolithique : un relèvement du pH (p. ex. chaulage) peut améliorer la CUE du carbone exogène (litière fraîche) tout en dégradant celle du carbone endogène (matière organique native), dont la minéralisation s'accélère — un déstockage du carbone ancien (réversibilité biotique de la MAOM, cf. déstabilisation pH-induite). Optimiser le stockage suppose de distinguer le compartiment visé.
La CUE relie le cycle du carbone (card #54) à son plafond (saturation MAOM) : elle gouverne le flux entrant vers le stock stable, que la saturation borne. Maximiser le stockage, c'est entretenir une CUE élevée sous le plafond de sorption.
Cards en dialogue (9)
- Voir aussi (9)
-
- Stœchiométrie CNPS et modèle AMG
- Cycle du carbone : de la photosynthèse à la MAOM
- Soil Continuum Model (SCM) : fin du paradigme de l'humification, necromasse microbienne et fractions fonctionnelles MAOM/POM
- Effet d’amorçage
- Biomasse microbienne
- Diversité microbienne
- Respiration du sol : indicateur d'activité microbienne
- Pompe microbienne à carbone : voies in vivo/ex vivo, effet Tombeau et leviers d'activation
- Seuils de fonctionnement du carbone : le sol non-répondant et la concentration
Banque de semences microbienne dormante : prophages, persisters et spores, le réservoir invisible
Une grande partie dort, en réserve, invisible aux mesures d'activité — comme une banque de semences.
Certains sont des virus silencieux intégrés dans les bactéries, d'autres des cellules en veille qui tolèrent les coups durs sans devenir résistantes, d'autres encore des spores prêtes à germer au bon signal.
Cette réserve est la mémoire du sol : quand une communauté est décimée, elle se reconstitue à l'identique à partir de ce qui dormait. Un sol qui paraît pauvre peut cacher un immense potentiel assoupi.
Science
Une fraction majeure de la diversité microbienne est non active mais dormante — un réservoir invisible absent des comptages d'activité mais qui conditionne résilience et mémoire.
- Prophages : génomes viraux intégrés, silencieux, réactivables — vecteurs de gènes (dont ARG, card #74) et de transfert horizontal.
- Persisters : cellules en quiescence métabolique, tolérantes aux stress et antimicrobiens sans mutation de résistance (Lewis, 2006) — origine des rechutes.
- Spores et formes de résistance : survie de long terme, germination sur signal.
Fonction systémique : cette banque de semences est le support de la mémoire du sol (card #145) et de l'auto-régulation suppressive ; elle explique qu'une communauté décimée se reconstitue à l'identique. Elle nuance les bilans de biodiversité fondés sur la seule fraction active : un sol « pauvre » à l'instant t peut receler un potentiel dormant considérable.
VBNC : le masque de la dormance
Le concept de VBNC (Viable But Non-Culturable), ou état viable non cultivable, est indissociable de la banque de semences microbienne. Lorsqu'une bactérie entre en dormance, elle réduit son métabolisme à un niveau minimal mais reste vivante. Le problème : les méthodes classiques de culture (boîte de Pétri, milieu liquide) échouent à détecter ces cellules — elles sont « viables » (métaboliquement actives, capables de ressortir de dormance) mais « non cultivables » sur milieux standards. On estime que <1% des bactéries du sol sont cultivables, les 99% restants incluant les cellules VBNC.
Le VBNC n'est pas une pathologie : c'est une stratégie de survie face au stress (faim nutritive, dessiccation, température extrême, antibiotiques). La cellule VBNC maintient un métabolisme minimal (respiration, réparation de l'ADN, surveillance de l'environnement via les two-component systems) et peut ressortir de cet état lorsque les conditions redeviennent favorables. Ce réveil est souvent déclenché par des signaux spécifiques : acides aminés, acides organiques, signaux de quorum sensing produits par des bactéries actives voisines.
Le VBNC crée une discordance fondamentale entre les données moléculaires (ADN → toutes les cellules, actives + dormantes + VBNC) et les données culturales (seules les cellules actives cultivables). Cette discordance explique pourquoi les études de métagénomique shotgun et de Qpcr surestiment l'abondance fonctionnelle d'une communauté par rapport aux tests enzymatiques. Le VBNC est aussi le mécanisme qui permet aux pathogènes de persister dans le sol sans être détectés, puis de ressortir brutalement lors d'une perturbation.
Cards en dialogue (6)
- Voir aussi (6)
-
- Phages et transduction des ARG : réservoir silencieux du résistome
- Mycobiome intestinal et axe gut-brain fongique : le 3ᵉ domaine oublié de la santé humaine
- Mémoire du sol et auto-régulation suppressive : la dimension transgénérationnelle de la résilience pédologique
- Virome et gènes métaboliques auxiliaires (AMG) : le phage reprogramme l'hôte et co-pilote les cycles biogéochimiques
- Microbiome de la graine : transmission verticale et héritage fonctionnel
- Coalescence microbienne : quand les communautés se mélangent
Profil sol acide / podzol : toxicité aluminique, blocage du phosphore et chaulage
À bas pH, cet élément se solubilise et devient toxique pour les racines, dont il bloque la croissance — le premier facteur limitant, avant toute carence.
S'y ajoute un second piège : le phosphore se retrouve prisonnier, précipité avec le fer et l'aluminium. Le podzol est la forme la plus évoluée de ce monde acide : sous climat humide et litière acidifiante, fer et aluminium partent en profondeur, laissant en surface un horizon gris, lessivé.
Le levier de base est le chaulage : remonter le pH précipite l'aluminium toxique et redonne accès au phosphore, à doser selon le pouvoir tampon. Le bon réflexe : partir de l'aluminium échangeable plutôt que des seuls éléments majeurs.
Science
Les sols acides (pH eau < 5,5 ; certains auteurs réservent « acide fort » à pH < 5,5 et « acide » à < 6,5), dont le podzol est la forme évoluée, forment un type fonctionnel distinct, gouverné par la chimie de l'aluminium et du fer.
- Toxicité aluminique : à pH bas, l'Al³⁺ échangeable se solubilise et devient rhizotoxique (inhibition de l'élongation racinaire) — premier facteur limitant, avant toute carence.
- Blocage du phosphore : le P est immobilisé par précipitation avec Fe et Al, d'où une carence induite malgré les apports.
- Podzolisation : sous climat humide et litière acidifiante, lessivage des complexes organo-métalliques vers un horizon d'accumulation, laissant un horizon éluvial cendreux appauvri.
- Levier : le chaulage relève le pH, précipite l'Al toxique et redonne accès au P — à doser selon le pouvoir tampon.
Ce profil complète la série des types de sols par le pôle acide, où le diagnostic part de l'Al échangeable et du pH Kcl plutôt que des seuls éléments majeurs.
Mise à jour (2026-08-03) : la fiche dédiée fiche #312 approfondit l'angle toxicité Al × microbiote racinaire (STOP1, MATE/ALMT, mycorhizes éricoïdes) — un second levier au-delà du chaulage.
Cards en dialogue (3)
Allélopathie : interférence biochimique végétale et leviers agronomiques (couverts, déprise, suppression)
C'est l'allélopathie, et on peut la mettre à son service.
Le seigle, le sorgho ou les moutardes en mulch libèrent des composés qui empêchent les graines de mauvaises herbes de germer — un désherbage naturel. Le noyer fait pareil, et c'est pour cela qu'on voit peu pousser à son pied.
Mais l'arme est à double tranchant : les mêmes résidus peuvent gêner la culture suivante et bousculer la vie du sol. L'effet dépend du sol lui-même, qui dégrade plus ou moins ces molécules. C'est un service de régulation à dessiner dans les couverts, pas une recette universelle.
Science
L'allélopathie est l'interférence biochimique par laquelle une plante libère des allélochimiques (exsudation racinaire, lessivage foliaire, volatilisation, décomposition des résidus) qui inhibent ou stimulent germination, croissance ou microbiome voisins (Rice, 1984).
- Familles : phénols, terpénoïdes, glucosinolates (Brassicacées → biofumigation), acides hydroxamiques (DIBOA/DIMBOA du seigle), sorgoléone (sorgho), juglone (noyer).
- Couverts allélopathiques : seigle, sorgho, Brassicacées en mulch suppriment les adventices par inhibition de germination — levier de déprise complémentaire de la faim d'azote (card #60) et service des couverts (card #50).
- Double tranchant : autotoxicité (résidus inhibant la culture suivante), effets non spécifiques sur le microbiome — mais aussi suppression de pathogènes (biofumigation).
- Dépendance au sol : libération et persistance des allélochimiques dépendent de l'adsorption (argile/MO), de la dégradation microbienne et de l'Eh — effet de terrain variable, à calibrer.
Position retenue : un service de régulation biotique à intégrer au design des couverts/rotations, pas une recette universelle — son expression dépend du sol vivant qui métabolise les allélochimiques.
Cards en dialogue (3)
Fragilité systémique fossile : la dépendance aux intrants de synthèse comme point de rupture
C'est la fragilité des agricultures dopées à l'azote de synthèse. Leur productivité repose sur un intrant unique, l'azote fabriqué industriellement. Si cet intrant devient cher ou inaccessible, les rendements s'effondrent, car aucune solution biologique n'est prête à prendre le relais. Paradoxe : un système optimisé pour le rendement maximal supprime ses redondances — diversité, fixation naturelle de l'azote, matière organique vivante. Il devient performant mais cassant. Et cette fragilité ne se voit pas en temps normal : elle ne se révèle qu'au choc. Le remède n'est pas un substitut identique, mais la reconstruction des redondances : autonomie, fixation biologique, fertilité durable.
Science
La fragilité systémique fossile est le diagnostic, pendant négatif de l'antifragilité (card #102), d'un système agricole dont la productivité repose sur un intrant fossile unique et peu substituable : un choc sur cet intrant (prix, géopolitique, déplétion) ne le dégrade pas — il le casse.
- Point de rupture : l'azote de synthèse (Haber-Bosch) est le maillon critique — sans lui, les rendements des systèmes dépendants s'effondrent faute d'alternative biologique en place (#140 souveraineté azote).
- Optimisation = fragilisation : un système optimisé pour le rendement maximal sous intrants abondants supprime ses redondances (diversité, fixation symbiotique, MO active) — performant mais cassant.
- Coût ≠ fragilité : distincte du coût énergétique (#1, #167 EROI) mesurable en régime normal, la fragilité ne se révèle qu'au choc — invisible tant que le fossile est abondant.
- Remède structurel : non par substitution 1:1, mais par reconstruction des redondances — autonomie/low-tech (card #181), fixation biologique, fertilité-mémoire — c'est-à-dire bâtir l'antifragilité (card #102).
Position retenue : la sécurité n'est pas la performance maximale sous intrants, mais la fragilité lisible d'un système dont on cultive les redondances.
Cards en dialogue (6)
- Voir aussi (6)
-
- Coût réel de l'énergie fossile et 'esclaves énergétiques'
- Antifragilité : stress modéré → diversification de l'hologénome
- Souveraineté azote-fertilisation : l'autonomie nationale face à la dépendance Haber-Bosch
- EROI : retour énergétique des systèmes agricoles (énergie utile / énergie investie)
- Autonomie et low-tech : réduire la dépendance aux intrants et technologies externes
- Révolution verte : Haber-Bosch, blé nain et modernisation agricole
Crosstalk JA-SA : le dispatcher hormonal de la défense végétale
Deux hormones se disputent le pupitre de la défense.
L'une mobilise contre les insectes broyeurs et les champignons qui tuent les tissus ; l'autre contre les parasites qui s'installent discrètement dans la cellule vivante. Sauf que les deux voies se répriment mutuellement : activer l'une, c'est souvent museler l'autre — un compromis coûteux.
Certains agresseurs savent même pousser le commutateur du mauvais côté pour passer inaperçus. D'où l'intérêt de pré-armer les deux voies à l'avance, sans payer le coût en permanence.
Science
Le dispatcher hormonal qui arbitre l'allocation de la défense végétale entre deux voies antagonistes — un index de bascule, pas un mécanisme supplémentaire.
- JA (acide jasmonique) domine : herbivores mâcheurs et pathogènes nécrotrophes → défense par blessure (inhibiteurs de protéases, composés volatils, glucosinolates).
- SA (acide salicylique) domine : pathogènes biotrophes/hémibiotrophes (bactéries, champignons obligatoires, virus) → SAR, protéines PR, renforcement pariétal.
Arbitrage : antagonisme mutuel — SA réprime la voie JA et réciproquement ; la plante n'active qu'un axe à la fois, d'où un compromis coûteux. Modulé par l'éthylène, l'ABA, le statut azoté et l'état épigénétique (antagonisme histone SA/JA).
Enjeu agronomique : un bioagresseur peut détourner le commutateur (effecteurs orientant vers la mauvaise voie) ; le priming pré-arme les deux voies sans coût permanent ; le recrutement microbien (cry-for-help) et les extrêmes climatiques déplacent l'équilibre. Carrefour de l'immunité nutritionnelle (azote→JA-SA), de l'antagonisme épigénétique, du priming par éliciteurs, du cry-for-help et de la mémoire transgénérationnelle.
Cards en dialogue (8)
- Approfondi par
- Voir aussi (7)
-
- Mémoire transgénérationnelle plante-microbiome
- Cry-for-help : recrutement stress-induit du microbiome
- Éliciteurs biologiques exogènes : chitosane et oligogalacturonides (priming PTI/SAR)
- Triangle des maladies végétales × extrêmes climatiques : cadre diagnostique renouvelé
- Code des histones et marques permissives/répressives : architecture épigénétique de la mémoire immunitaire végétale
- Immunité nutritionnelle : forme d'azote (NH₄⁺/NO₃⁻) → protéosynthèse → signalisation JA-SA
- Les 4 stades culturaux à dominance hormonale
Virome et gènes métaboliques auxiliaires (AMG) : le phage reprogramme l'hôte et co-pilote les cycles biogéochimiques
Les phages, ces virus qui infectent les bactéries, emportent avec eux des gènes volés à leurs hôtes et les réinjectent en les activant : une sorte de mise à jour du métabolisme de la bactérie, qui participe ainsi aux grands cycles du carbone, du phosphore et du soufre. Un phage n'est donc ni bon ni mauvais par nature : c'est un module métabolique mobile. Beaucoup de bactéries du sol hébergent aussi des virus endormis, réveillables par une perturbation — un antibiotique, un herbicide, un ver de terre — ce qui restructure durablement la communauté microbienne, comme une mémoire écologique du sol. Tout bilan de fertilité qui ignore ce compartiment viral sous-estime un véritable copilote des cycles.
Science
Le virome du sol (phages + virus) est le compartiment le plus abondant et le moins exploré du microbiome. Le réduire à un prédateur top-down (lyse, « viral shunt ») ou à un réservoir de gènes de résistance (cf. card #74) masque sa fonction générative : les phages portent des gènes métaboliques auxiliaires (AMG) qu'ils expriment pendant l'infection pour reprogrammer le métabolisme de leur hôte bactérien — et, indirectement, co-piloter les cycles biogéochimiques de l'holobionte.
Principe génératif
Le phage n'est ni « bon » ni « mauvais » par nature (axe « aucun microbe n'est bénéfique par nature ») : c'est un module métabolique mobile. En transférant et en exprimant des AMG, il devient un acteur fonctionnel des cycles, pas un simple parasite — un renversement du statut habituel du virus.
Mécanisme
- AMG = gènes d'origine bactérienne capturés par le phage, ré-exprimés durant l'infection pour soutenir les fonctions de l'hôte (énergie, transformation d'éléments) le temps de la production virale (Sun et al., 2022).
- Cycles C/P/S : les AMG telluriques touchent la transformation du carbone, du phosphore et du soufre ; en rizière, jusqu'à ~24 % des AMG concernent la fixation du carbone, et leur expression — stimulée par le stress (métaux lourds) — réduit les émissions de CO2 et accroît le carbone microbien (Zhu et al., 2024).
- Rhizosphère : les phages y augmentent la valeur sélective (valeur sélective) de leurs hôtes, contribuent à la suppression des pathogènes et au recyclage des nutriments, dans un cadre One Health (Wang et al., 2024).
- Mémoire / réveil : une large fraction des bactéries du sol héberge des virus dormants (prophages) réactivables par perturbation (vers de terre, herbicide, antibiotique) ; ce réveil restructure durablement le microbiome — le virome est une composante de la mémoire écologique du sol (Braga & Schumacher, 2023 ; cf. card #187).
- Holobionte végétal : le virome (phagéome) est intégré à l'holobionte étendu de la plante, co-existant dynamiquement avec ses hôtes dans la phyllosphère et la rhizosphère (Roitman et al., 2026).
Distinction clé
- ≠ card #74 — phages = vecteurs d'ARG, angle résistome/transduction.
- ≠ card #187 — prophages = fraction du réservoir dormant.
- Complète la fiche #225 (virosphère du sol, régulation top-down / viral shunt) par l'angle bottom-up : le phage augmente le métabolisme, il ne fait pas que tuer.
Portée
Tout bilan fonctionnel d'un sol (cycle du carbone, fertilité, suppressivité) qui ignore le compartiment viral sous-estime un co-pilote métabolique. Le virome est un levier — et un risque — de l'ingénierie de l'holobionte.
Cards en dialogue (6)
Priming immunitaire végétal : opérateur cellulaire commun aux voies endogène (rhizosphère/ISR) et exogène (éliciteurs/PTI-SAR)
C'est le priming : un état d'alerte au repos.
Deux écoles activent ce même sas. La première, par le sol vivant : les bons microbes des racines entretiennent l'alerte en continu. La seconde, par pulvérisation de substances qui imitent l'agresseur, à la demande. Même mécanisme, deux stratégies qui ne se remplacent pas.
L'une construit un capital immunitaire de fond, l'autre déclenche une option défensive ponctuelle. Une piste relierait ce niveau d'alerte à la vitalité biologique du sol — pour l'instant une hypothèse à tester, pas un acquis.
Illustration : Fig. card 193-A · ISR / SAR — immunité plante…
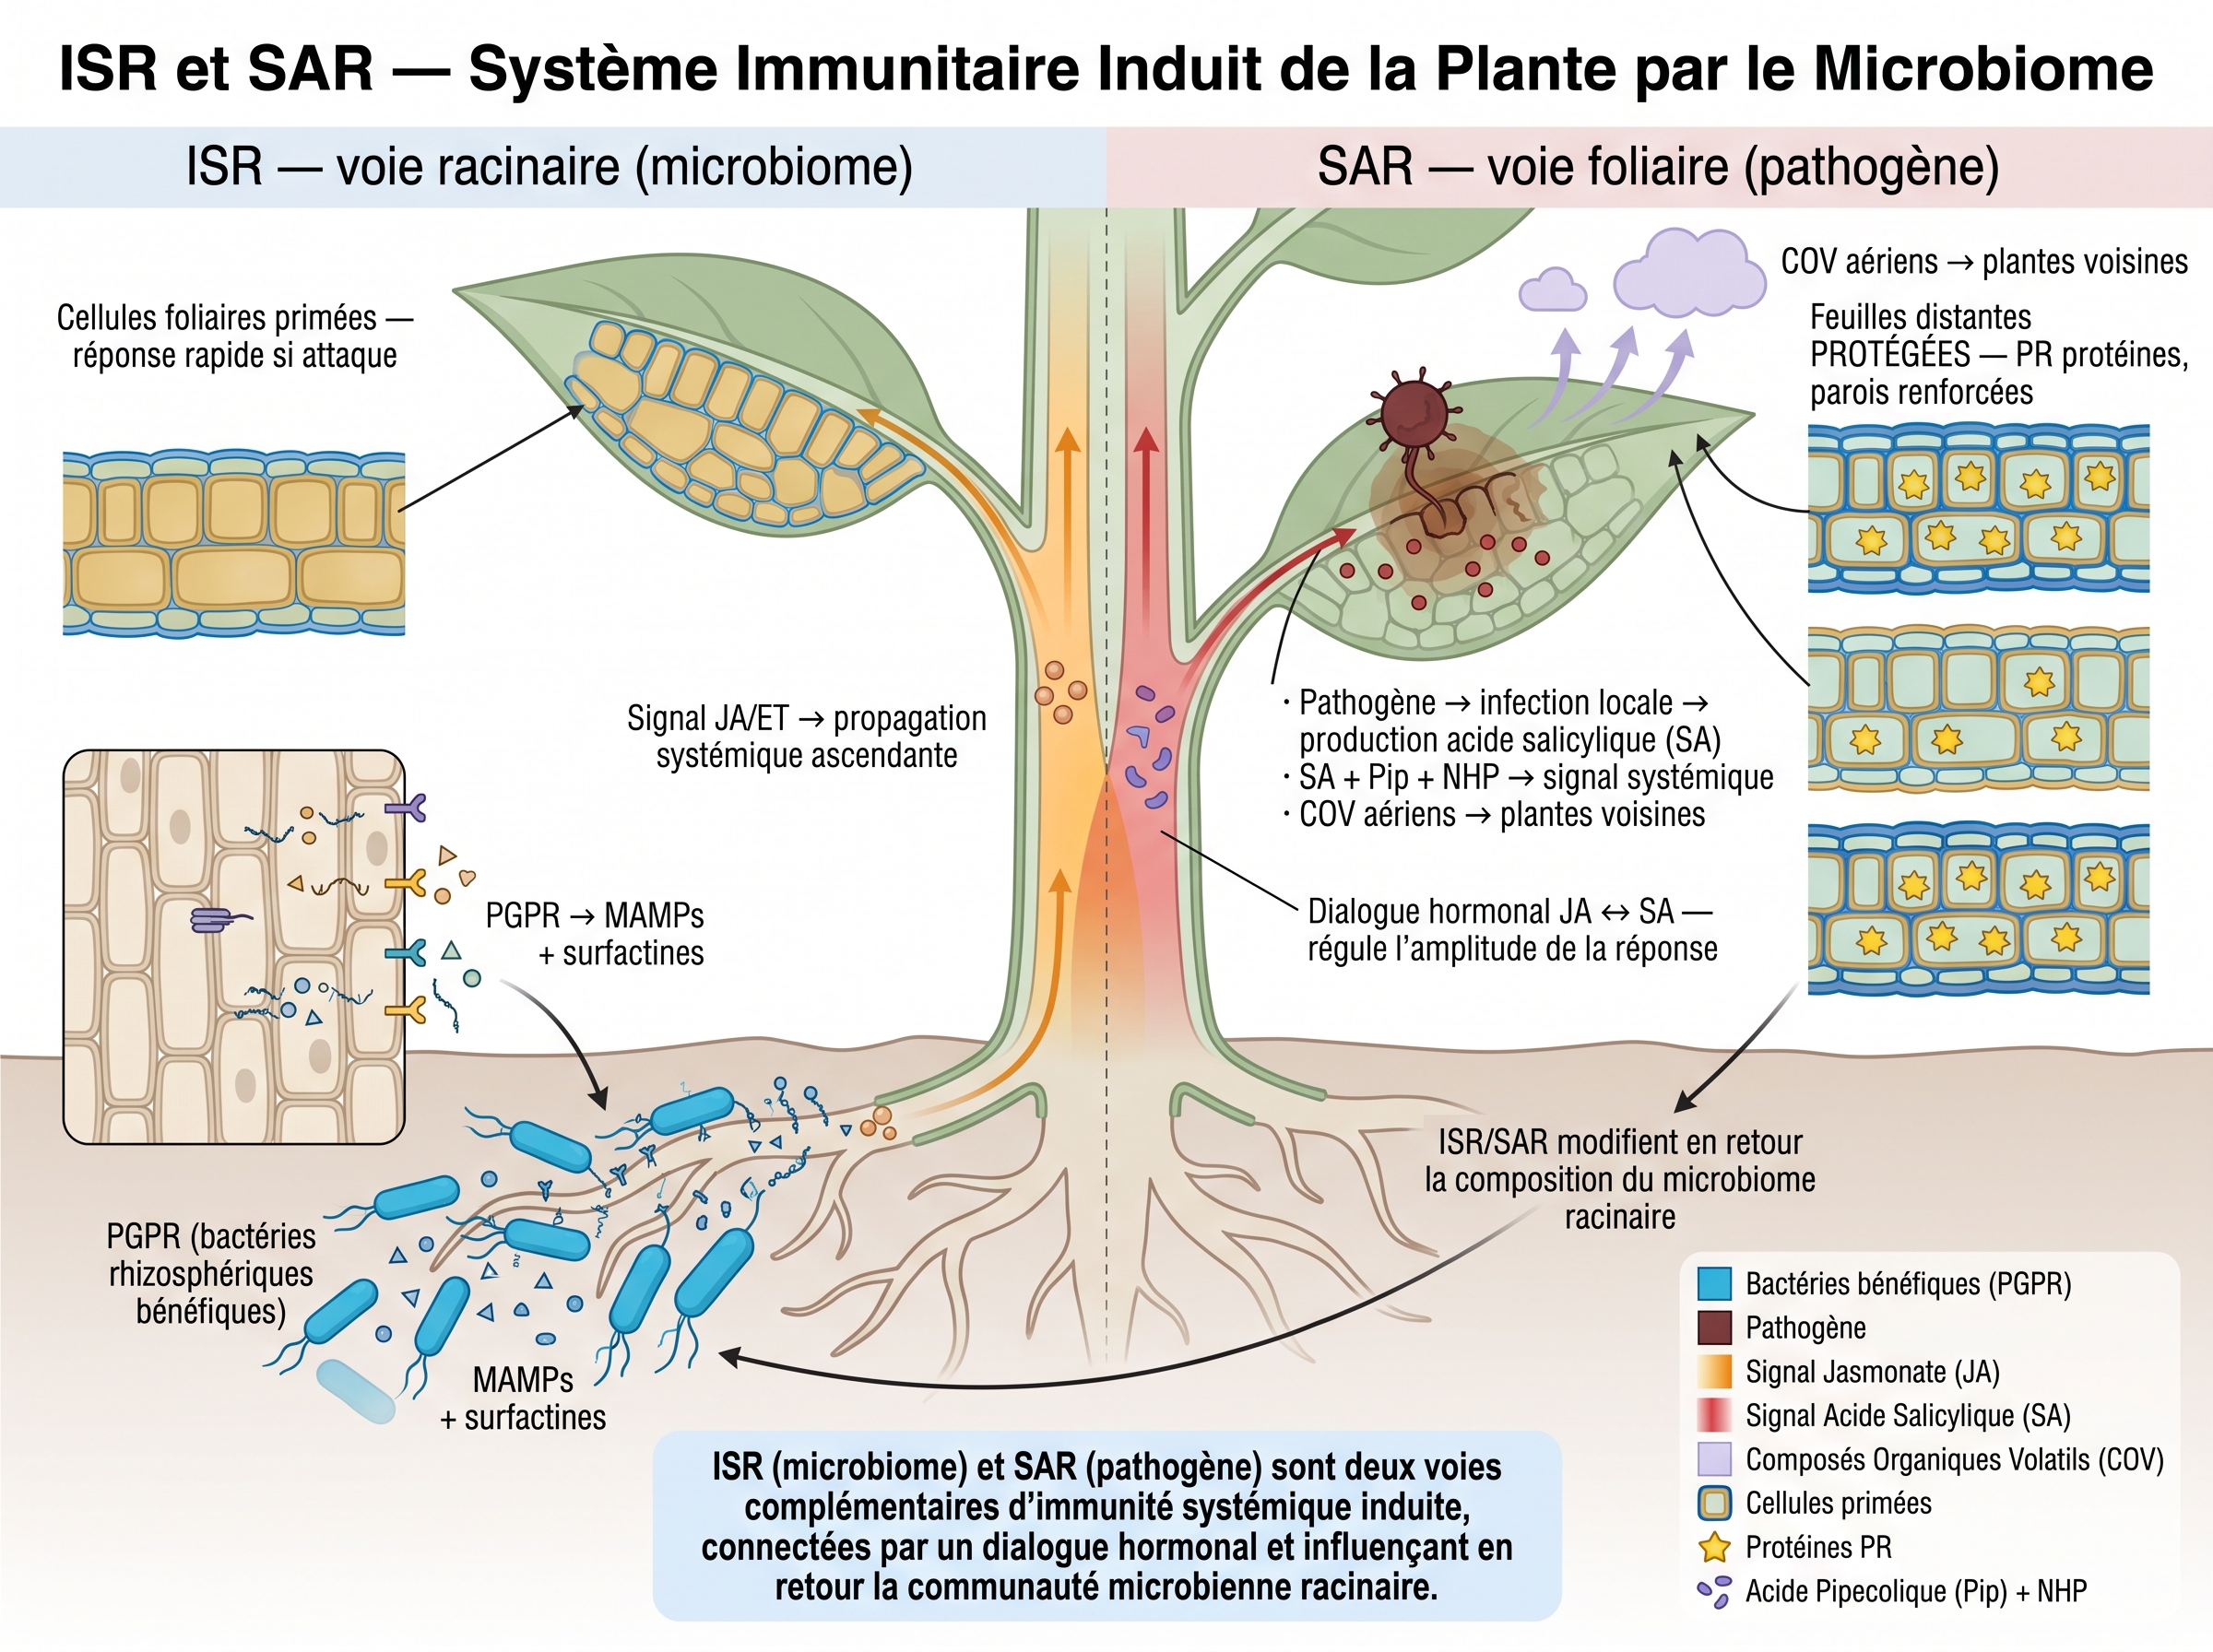
Science
§1 — État d'alerte stabilisé. Les PRR racinaires (FLS2/EFR/CERK1) perçoivent à bas bruit les MAMPs microbiennes et activent sans coût immédiat les voies jasmonate/salicylate, inscrites dans des marques épigénétiques (méthylation ADN, chromatine ouverte sur les promoteurs de PR-1 et PDF1.2). À l'attaque réelle, l'ARN Pol II est recruté plus vite — la plante « souvient » et anticipe.
§2 — Deux doctrines agronomiques opposées activent ce même sas. Branche endogène : la rhizosphère vivante (PGPR, mycorhizes) délivre en continu des MAMPs → ISR (Induced Systemic Resistance) persistante, inscrite en marques H3K4me3 stables sur plusieurs générations (Luna 2012) — paradigme « sélectionner la vie du sol ». Branche exogène : la pulvérisation d'éliciteurs (chitosane, oligogalacturonides) mime les MAMPs → PTI/SAR ponctuelle, renouvelable à chaque stress — paradigme « appliquer un stimulateur ». Même sas mécanistique, deux stratégies non substituables : la première construit un capital immunitaire de fond, la seconde déclenche une option défensive à la demande.
§3 — Le continuum s'opère par les SynComs (ingénierie de l'endogène) et les éliciteurs exogènes (raccourci du temps d'établissement). Le quorum quenching complète : désarmer le pathogène en parallèle de l'induction plante.
§4 — Hypothèse à tester (intersection inédite à notre connaissance). Le test Haney (indicateur indirect d'activité biologique du sol, Haney 2018) pourrait corréler avec le niveau de H3K4me3 foliaire sur PR-1 (marqueur de priming, Ramírez 2013 ; Cañizares 2025) — pont mesurable entre signature du sol vivant et état d'alerte épigénétique de la plante. Les prémisses séparées sont établies : (a) Haney test comme indicateur indirect d'activité biologique (Haney 2018 ; Hu 2025) ; (b) H3K4me3 sur promoteur PR-1 comme marqueur de priming végétal (Ramírez 2013 ; Cañizares 2025) ; (c) lien sol-plante via ISR et microbiome (Flors 2024 ; López Sánchez 2021 ; Du 2025 ; Kaya 2026).
État de la veille (juin 2026) : l'intersection directe Haney × H3K4me3 reste largement inexplorée : aucune étude ne la teste directement à notre connaissance ; c'en est une question de recherche prioritaire. Mais plusieurs évidences empiriques indirectes soutiennent la plausibilité du pont : Bloom et al., 2025 (85 fermes biologiques : pratiques sol → microbiome → défenses JA/SA) ; Wu 2025 (rotation sarrasin-chou, couplage microbiote-immunité) ; Lv 2022 (IBM1 → restructuration conjointe épigénome + microbiote) ; Beltrán-Torres 2026 (mycorhizes → marques épigénétiques systémiques). Mécanisme candidat identifié : marques chromatine H3K4me3/H3K36me3 associées aux gènes de défense type PR-1 (codes chromatiniens de l'immunité : Xie & Duan, 2023 ; bivalences décrites : Zeng et al., 2019 ; Zhao et al., 2024). Limite principale : compromis SA/JA (Spoel 2007 ; Vos 2013) — activer une voie défensive peut en supprimer une autre. Fallback opérationnel : split-plot avec/sans inoculation PGPR mesurant l'écart de sévérité maladie comme indicateur intégré.
Cards en dialogue (8)
- Voir aussi (6)
-
- Cry-for-help : recrutement stress-induit du microbiome
- Éliciteurs biologiques exogènes : chitosane et oligogalacturonides (priming PTI/SAR)
- Quorum Quenching One Health : désarmement enzymatique des pathogènes vs antibiorésistance
- Synthetic Communities (SynComs) : ingénierie rationnelle de consortia microbiens pour l'agriculture régénérative
- Immunité nutritionnelle : forme d'azote (NH₄⁺/NO₃⁻) → protéosynthèse → signalisation JA-SA
- Résilience
Réserve utile
Elle se mesure en millimètres par mètre de sol, comme un réservoir qu'on remplirait à chaque pluie.
Ce réservoir dépend d'abord de la texture : les sables retiennent peu, les argiles gardent une part d'eau trop collée pour être bue, les limons offrent le meilleur compromis. La matière organique l'améliore de façon modeste mais réelle, surtout en sol sableux.
La RU n'est pas un réservoir inerte : c'est l'eau que transpire le couvert entre deux pluies. Quand elle s'épuise, la plante ferme ses stomates et la vie microbienne ralentit ; un excès d'eau chasse l'air et asphyxie les racines.
Science
La réserve utile (RU) d’un sol désigne le volume d’eau retenu entre la capacité au champ (pF ≈ 2,5, potentiel matriciel d’environ −0,03 MPa) et le point de flétrissement permanent (pF ≈ 4,2, potentiel de −1,5 MPa), c’est-à-dire l’eau capillaire physiquement extractible par les racines. Exprimée en millimètres par mètre de sol, elle dépend principalement de la texture : les sols argileux présentent une RU élevée mais retiennent aussi une fraction d’eau fortement liée aux surfaces minérales, indisponible au-delà du point de flétrissement ; les limons optimisent le compromis entre rétention et accessibilité ; les sables ont une faible RU en raison de leur macroporosité dominante. La matière organique accroît la RU de façon modeste mais réelle, plus marquée en sols sableux — la méta-analyse Minasny 2017 conclut à un effet limité (+1,16 mm/100 mm pour +10 g C/kg), en tension avec les travaux défendant un effet plus fort (Hudson, 1994).
Dans le continuum sol-plante-microbiome, la réserve utile n’est pas un réservoir inerte : elle représente le stock d’eau transpiré par le couvert entre deux précipitations ou irrigations. Son épuisement progressif abaisse le potentiel hydrique du sol, réduit la continuité hydraulique sol-racine-xylème et déclenche des régulations stomatiques. L’eau est également le vecteur des nutriments dissous et le support des films liquides où diffusent les substrats et les signaux microbiens ; un dessèchement en deçà du point de flétrissement perturbe les communautés microbiennes de la rhizosphère et les cycles biogéochimiques. Une RU élevée permet de tamponner les périodes de déficit hydrique, mais un excès d’eau, au-delà de la capacité au champ, réduit la diffusion des gaz (O₂, CO₂) en saturant la porosité, ce qui freine la respiration racinaire et microbienne. La gestion de la réserve utile constitue ainsi un levier pour maintenir les fonctions agroécologiques du sol, en lien avec la profondeur d’enracinement et la dynamique de la matière organique. Au retrait, la continuité hydraulique sol-racine est maintenue par la rhizogaine (rhizosheath, terme #5033) — manchon racine-mucilage-sol qui préserve le contact avec la réserve.
Cards en dialogue (8)
- Voir aussi (8)
-
- Eau facteur limitant : potentiel, continuité hydraulique, diffusion des gaz
- Cycle du carbone : de la photosynthèse à la MAOM
- Amendements minéraux structurants : levier minéral vs levier organique
- Irrigation pilotée : l'appoint mesuré, filet de sécurité du sol vivant
- Interaction chaleur × sécheresse : quand un plus un dépasse deux
- Rhizosheath : la gaine racinaire, trait holobiontique de la tolérance à la sécheresse
- Remontée hydraulique : l'eau remontée par les racines, assurance-sécheresse du sol vivant
- Sécheresse structurelle : de l'aléa au régime
Adsorption
C'est cette adsorption qui garde en réserve le calcium, le magnésium, le potassium et l'ammonium, quand l'azote nitrique — lui, non retenu — s'échappe avec l'eau de pluie. Elle a aussi un revers : elle piège si fortement le phosphore sur les oxydes de fer et d'aluminium que la plante peine à y accéder, sauf quand les microbes et les mycorhizes viennent le décoller. Enfin, c'est cette même attraction qui colle les restes de microbes aux minéraux pour former le stock de carbone stable du sol. L'adsorption est donc la main invisible qui règle à la fois la fertilité et le stockage.
Science
L'adsorption est la fixation réversible d'ions ou de molécules à la surface des colloïdes du sol : minéraux argileux, oxydes et hydroxydes de fer, d'aluminium et de manganèse, et matière organique. Ce phénomène met en jeu des forces électrostatiques, des liaisons hydrogène, des interactions de van der Waals ou des liaisons de coordination (complexes de surface). Il détermine la capacité d'échange cationique (CEC) en retenant les cations nutritifs (Ca²⁺, Mg²⁺, K⁺, NH₄⁺) sur les charges permanentes ou variables des surfaces. L'adsorption contrôle en particulier la rétention du phosphore : les ions phosphate se lient fortement aux oxydes de fer et d'aluminium, réduisant leur disponibilité ; les microorganismes rhizosphériques et les mycorhizes peuvent néanmoins solubiliser ce phosphore adsorbé. Dans une perspective de continuum sol-plante-microbiome, l'adsorption gouverne aussi le stockage du carbone organique : les molécules microbiennes s'associent aux minéraux pour former la matière organique associée aux minéraux (MAOM), réservoir stable du carbone. Elle agit de même sur le cycle de l'azote en piégeant l'ammonium sur le complexe d'échange, alors que le nitrate, non adsorbé, est lessivable. Les modèles de stœchiométrie CNPS et de dynamique de la matière organique comme AMG intègrent ces échanges pour simuler la fertilité des sols. Enfin, l'adsorption diffère de la précipitation (ex. carbonates pédogéniques) mais crée des conditions locales favorables à celle-ci.
Approfondissement : la fiche fiche #306 déploie le mécanisme complet — surfaces et charges, échange cationique vs sorption spécifique, relâchement et portée agronomique.
Cards en dialogue (3)
Oxydes Fe/Al
Une poignée en cache une surface immense, tapissée de sites capables de retenir le phosphore presque pour de bon.
Mais ces éponges ne dorment pas : elles sont aussi des piles. Quand les microbes respirent et consomment l'oxygène, le fer se dissout et relâche ce qu'il retenait, notamment le phosphore. À chaque retour d'air, il se reforme. Ce va-et-vient fait de la rouille un métronome de la fertilité.
Sur les sols acides, ce piège à phosphore se referme fort : le phosphore s'y fixe et devient rare pour la plante. Comprendre ces oxydes, c'est comprendre où part — et d'où revient — l'un des nutriments les plus limitants.
Science
Les oxydes de fer (goethite, hématite, ferrihydrite) et d'aluminium (gibbsite, boehmite) constituent des minéraux secondaires néoformés lors de l'altération des silicates. Caractérisés par une surface spécifique exceptionnelle (100 à 600 m²/g ; Cornell et Schwertmann, 2003) et une charge électrique variable selon le pH, ils agissent comme des puits biogéochimiques majeurs au sein du continuum sol-plante-microbiome. Leur rôle le plus documenté est l’adsorption quasi irréversible du phosphate, particulièrement en sols acides (pH < 5), où des complexes de sphère interne se forment par échange de ligands avec les hydroxyles de surface. Cette affinité gouverne la disponibilité du phosphore, un nutriment souvent limitant. Au-delà de cette fixation, ces oxydes pilotent la stabilisation organo-minérale en protégeant la matière organique via la formation de complexes MAOM, socle de la fertilité à long terme. Sous l’impulsion de l’activité microbienne et racinaire, ces minéraux sont pourtant de puissants échangeurs d’électrons. Dans les microzones anoxiques créées par l’hétérogénéité structurale et la respiration, le fer ferrique (Fe³⁺) subit une réduction dissolutive, libérant le phosphore adsorbé et alimentant les couplages biogéochimiques avec l’azote et le soufre. Cette dynamique oscillante entre immobilisation aérobie et mobilisation anaérobie, couplée à la formation de minéraux authigènes comme la vivianite, confère à ces oxydes un rôle central dans la mémoire redox des sols. Loin d’être des surfaces inertes, ils participent activement à la gouvernance des nutriments et au tampon redox (poising capacity) de la matrice solide, véritable métronome de l’holobionte édaphique.
Cards en dialogue (4)
Effet d’amorçage
En recevant ce carburant facile — sucres des racines, litière — les microbes fabriquent des enzymes capables de s'attaquer aux stocks stables qu'ils laissaient tranquilles : c'est l'effet d'amorçage, un coup de fouet donné à la décomposition (minéralisation). Ce phénomène a deux visages : il libère en même temps de l'azote et du phosphore utiles aux plantes, mais s'il s'emballe, il peut faire perdre plus de carbone ancien qu'il n'en apporte de neuf. La leçon : le carbone du sol n'est pas figé par nature, il vit en équilibre dynamique entre ce que le vivant construit et ce qu'il dégrade.
Illustration : Fig. card 197-A · Priming effect…
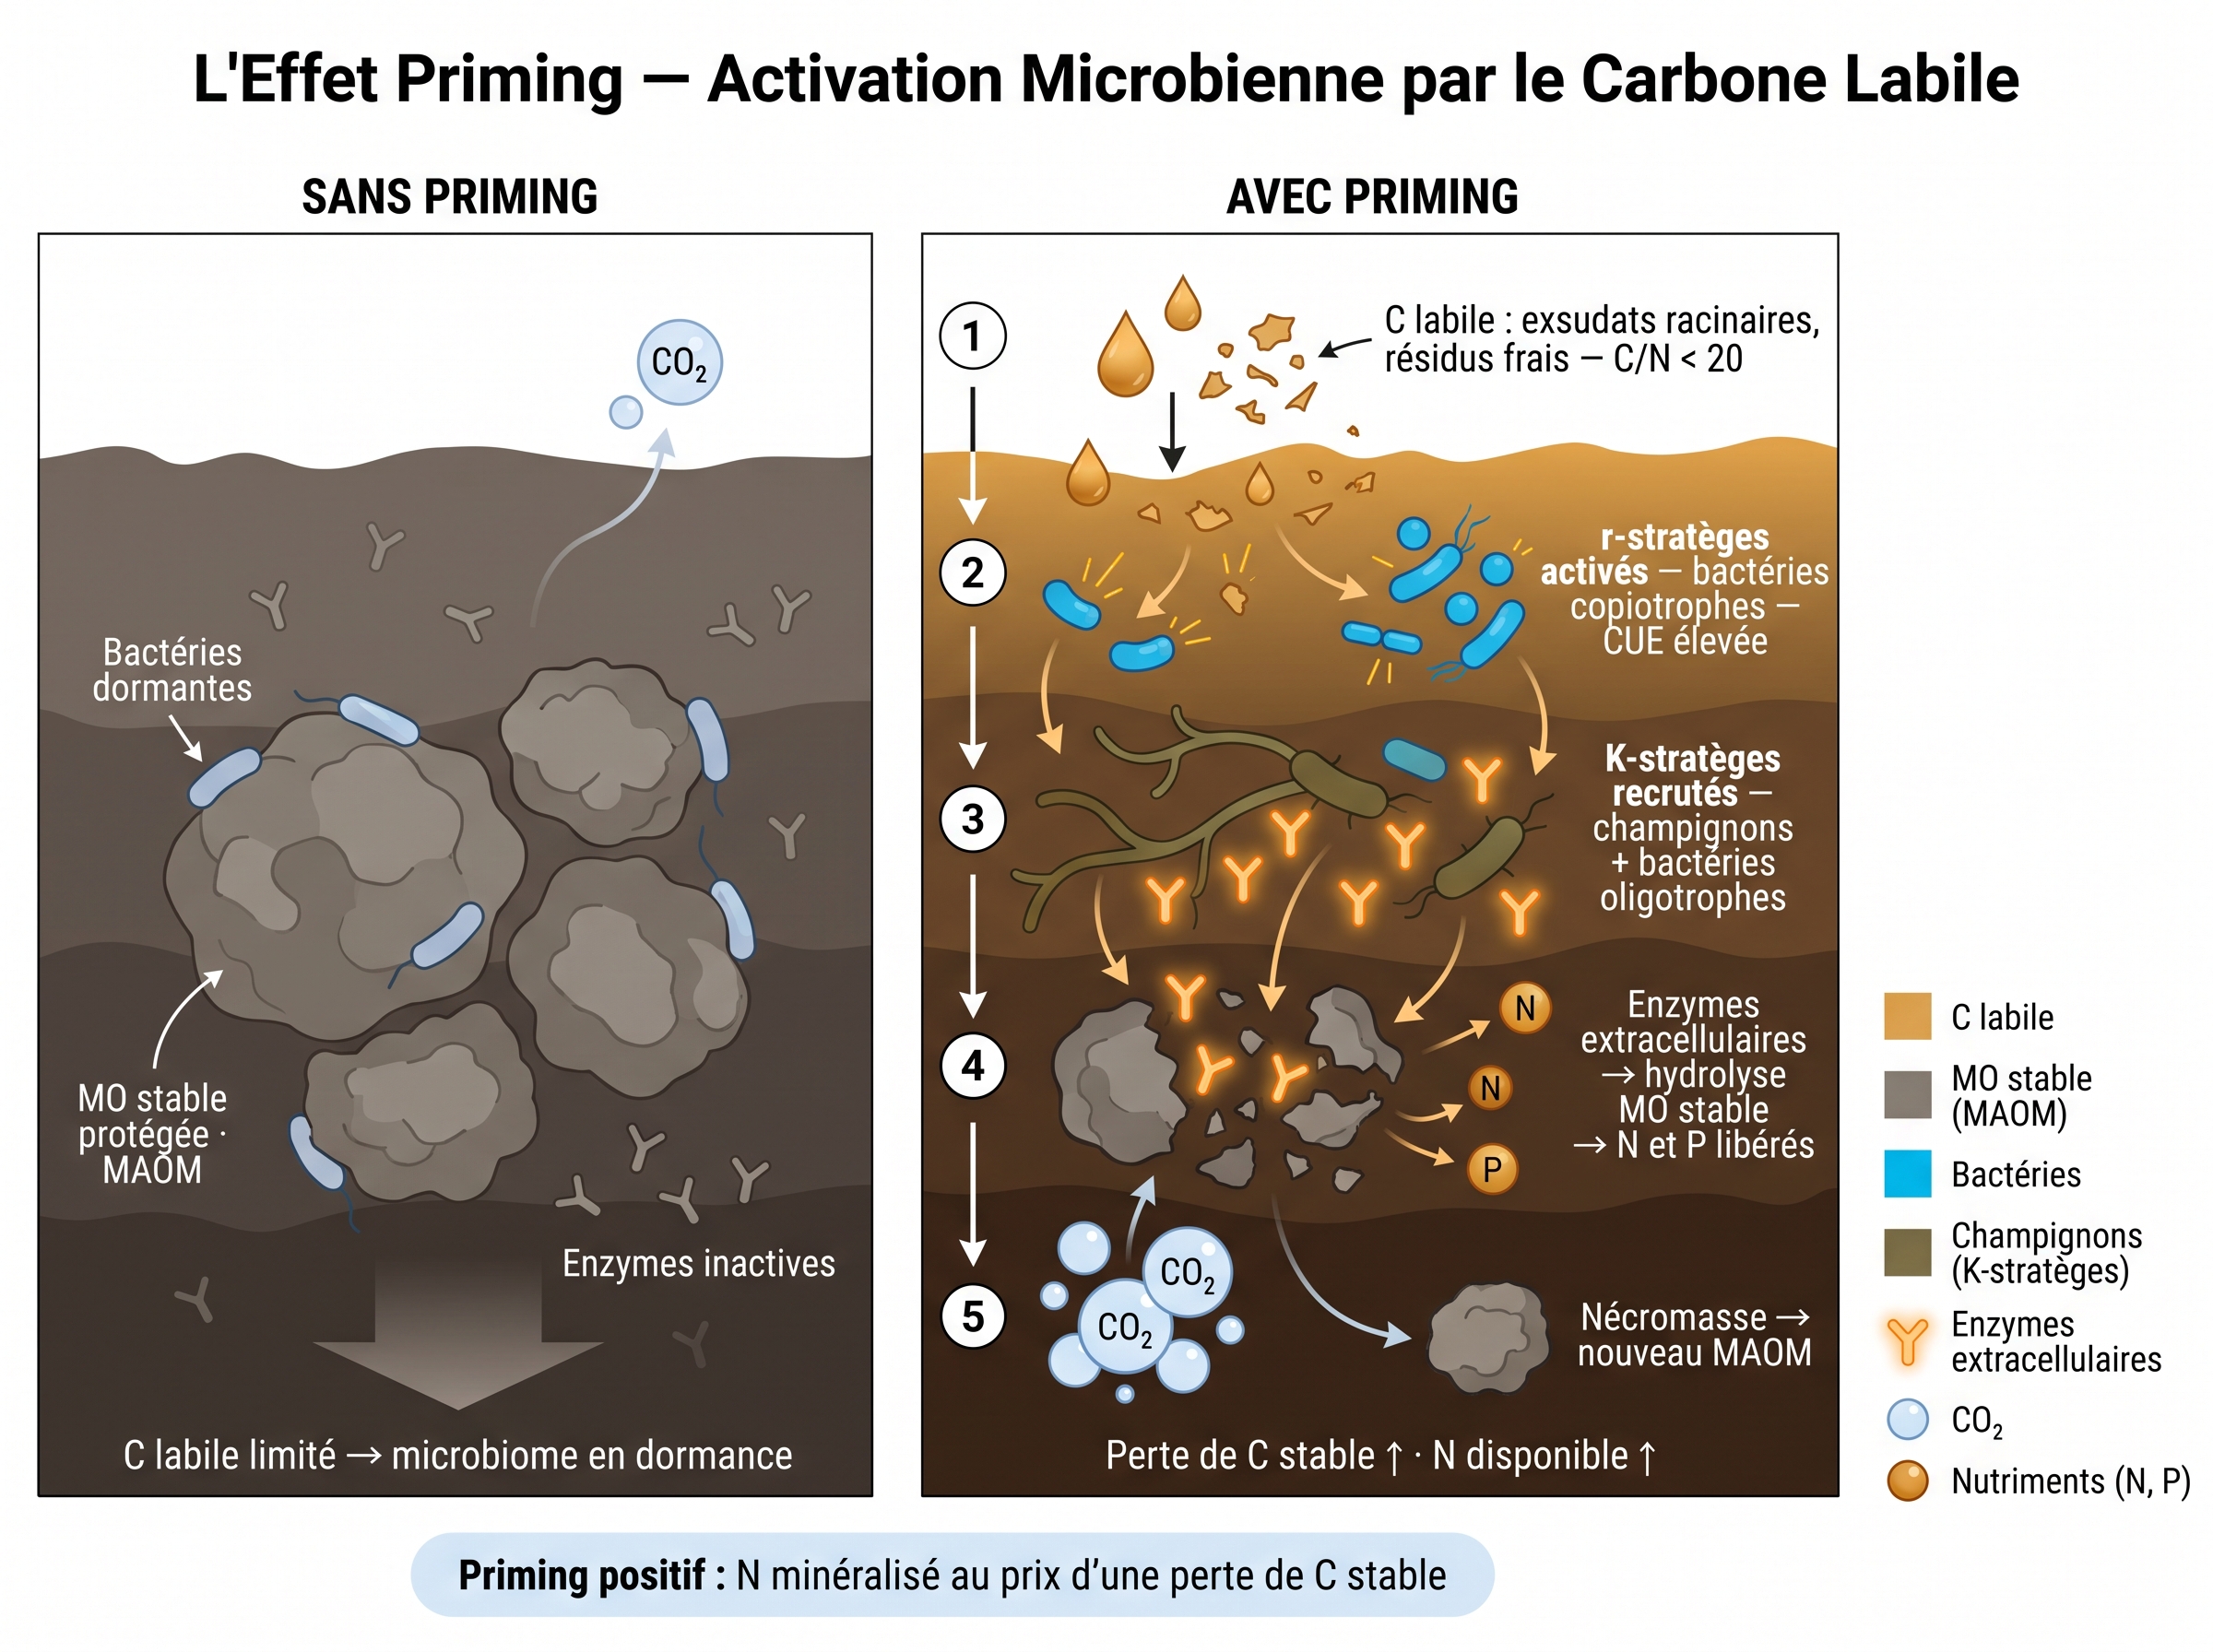
Science
L'effet d'amorçage (priming effect) désigne la stimulation de la minéralisation de la matière organique stable du sol consécutive à un apport de matière organique fraîche ou de composés facilement assimilables, tels que le glucose ou les exsudats racinaires (Bernard et al., 2022 ; Kuzyakov, 2010 ; Védère, 2020). Ce phénomène, observé principalement dans la rhizosphère, résulte d'une activation rapide du microbiome tellurique : l'afflux de substrat énergétique lève la limitation en carbone des micro-organismes hétérotrophes, qui synthétisent alors des enzymes extracellulaires capables de dégrader les fractions organiques plus récalcitrantes, notamment la matière organique associée aux minéraux (MAOM). L'amorçage est donc un levier biologique qui reconnecte le carbone récent (photosynthèse, litière) aux stocks profonds, illustrant le continuum sol-plante-microbiome. Il est étroitement couplé aux cycles de l'azote et du phosphore : la minéralisation accélérée de la matière organique libère de l'azote inorganique et du phosphore, modifiant la stœchiométrie CNPS du milieu et pouvant stimuler la croissance microbienne ou végétale. Dans les modèles de dynamique du carbone (comme AMG), l'effet d'amorçage est un facteur de variabilité du taux de minéralisation, essentiel pour prédire l'évolution des stocks sous l'influence des pratiques agricoles ou du changement climatique. Toutefois, son intensité dépend de l'équilibre entre la nécromasse microbienne produite (qui peut venir alimenter la MAOM) et la déstabilisation des complexes organo-minéraux : un amorçage fort peut entraîner une perte nette de carbone stable si la respiration microbienne dépasse les apports. Ce mécanisme rappelle que la persistance du carbone organique n'est pas une propriété chimique intrinsèque mais le résultat d'un équilibre dynamique gouverné par l'activité biologique et les conditions physico-chimiques (redox, disponibilité en accepteurs d'électrons), où le vivant construit autant qu'il recycle.
Cards en dialogue (5)
- Voir aussi (5)
-
- Cycle de l'azote : fixation, minéralisation, nitrification, pertes
- Cycle du carbone : de la photosynthèse à la MAOM
- Carbon Use Efficiency (CUE) microbienne : l'arbitrage stockage / respiration
- Respiration du sol : indicateur d'activité microbienne
- La MOS comme géo-batterie : le carbone, stock d'électrons
Méthanogènes
Ils ne peuvent vivre qu'en l'absence totale d'oxygène, dans les agrégats saturés, les profondeurs ou la zone des racines des plantes inondées. Ils ferment le cycle du carbone en produisant du méthane à partir des restes déjà fermentés — et ce méthane, remonté vers les zones aérées, est alors consommé par d'autres microbes qui le transforment. Ils sont le maillon final d'une chaîne où chacun respire en utilisant, l'un après l'autre, les composés disponibles. Leur présence signale un sol fortement privé d'air, où le carbone part en gaz plutôt qu'en stock stable.
Science
Les méthanogènes sont des archées qui synthétisent du méthane (CH₄) en anaérobiose stricte (Eh < –200 mV). Longtemps considérée comme l'apanage exclusif du phylum Euryarchaeota, la capacité méthanogène ne s'y limite pas : sa méthyl-coenzyme M réductase (MCR) a depuis été identifiée au-delà de ce phylum — Methanomethylicales (ex-Verstraetearchaeota), Korarchaeia, Nitrososphaeria. Cette enzyme contient du nickel, un élément qui a façonné leur évolution.
Ils occupent la dernière position de la succession thermodynamique des accepteurs d'électrons : après épuisement de l'oxygène, des nitrates, des oxydes de fer et des sulfates, ils transforment le CO₂ (voie hydrogénotrophe) ou l'acétate (voie acétotrophe) issus des fermentations amont. La voie acétotrophe prédomine dans les systèmes d'eau douce et côtiers (environ 67 % des émissions annuelles de CH₄), la voie hydrogénotrophe contribuant pour environ 30-33 % des émissions globales.
Dans le continuum sol-plante-microbiome, ces micro-organismes colonisent les microsites anoxiques – profondeurs, agrégats saturés, rhizosphère de plantes inondées – où la matière organique particulaire (POM) et les exsudats racinaires alimentent leur métabolisme. Ils ferment ainsi le cycle du carbone en produisant un gaz à effet de serre que les méthanotrophes oxydent à l'interface oxygénée.
Leur activité s'inscrit dans le modèle AMG : la méthanogénèse ralentit le retour du carbone au CO₂ et influence la stabilisation organo-minérale. Elle interagit avec le cycle de l'azote (compétition avec la dénitrification pour les donneurs d'électrons) et celui du phosphore (libération de phosphates en conditions réductrices). En milieu calcaire, le CO₂ coproduit module l'équilibre des carbonates pédogéniques.
Ainsi, les méthanogènes, indicateurs d'un statut rédox avancé, sont un maillon clé de la dynamique du carbone organique, orientant le devenir de la matière organique vers la minéralisation gazeuse ou vers la constitution de matière organique associée aux minéraux (MAOM).
Cards en dialogue (5)
- Donne naissance à
Résistance systémique induite
C'est la résistance systémique induite.
Les bonnes bactéries des racines envoient un signal qui remonte dans toute la plante : elles ne déclenchent pas la bataille, elles arment le système. À la première vraie attaque, la défense part plus vite et plus fort.
Cette immunité se construit dans la rhizosphère vivante, nourrie par les racines et les vers de terre. La santé d'une plante est un dialogue permanent avec le sol — moins de produits chimiques, des récoltes plus saines.
Science
La résistance systémique induite (ISR) désigne un état de défense immunitaire de la plante entière, déclenché par des microorganismes bénéfiques du sol, en particulier des rhizobactéries promotrices de la croissance des plantes (PGPR) et certains champignons. Contrairement à la résistance systémique acquise (SAR), qui dépend de la voie de l’acide salicylique, l’ISR est indépendante de cette molécule et repose sur la signalisation via le jasmonate et l’éthylène (Pieterse et al., 2014). Les éliciteurs microbiens (MAMPs) perçus au niveau racinaire activent une cascade de signalisation qui se propage dans toute la plante, sans déclencher directement l’expression de gènes de défense, mais en induisant un état de priming : les cellules végétales, sensibilisées, montent une réponse plus rapide et plus intense face à une attaque pathogène ultérieure. L’ISR s’inscrit pleinement dans le continuum sol-plante-microbiome. La rhizosphère, façonnée par les exsudats racinaires, les turricules de vers de terre et l’activité de la mésofaune (collemboles, acariens), constitue le berceau des interactions bénéfiques qui initient cette immunité. Des organismes comme les champignons entomopathogènes (Metarhizium, Beauveria), capables d’une double vie endophyte et pathogène d’insectes, peuvent également établir une ISR, élargissant le spectre de protection à des stress biotiques multiples. L’ISR illustre comment la santé végétale résulte d’un dialogue moléculaire avec le microbiome tellurique, réduisant la dépendance aux intrants chimiques et améliorant la qualité sanitaire des récoltes, ce qui relie directement la biologie des sols à la santé humaine. Toutefois, dans un contexte où le sol héberge un résistome dynamique, des questions émergent sur les possibles interférences entre les voies de signalisation de l’ISR et les mécanismes de transfert horizontal de gènes de résistance aux antimicrobiens, point nodal pour une gestion intégrée des risques.
Cards en dialogue (5)
- Approfondit
Holobionte
Ce tout a un nom : l'holobionte.
Racines, feuilles, intérieur des tissus : partout, des partenaires qui nourrissent, protègent, régulent. L'ensemble fonctionne comme une seule entité, dont les capacités dépassent celles de chaque partie.
Cette vision va encore plus loin : elle relie le sol, la plante et jusqu'à notre intestin, en un seul continuum de vie. Changer de regard, c'est cesser de soigner la plante isolée pour soigner l'équipe.
Illustration : Fig. card 200-A · Holobionte — l'unité fonctionnelle plante-microbiome…
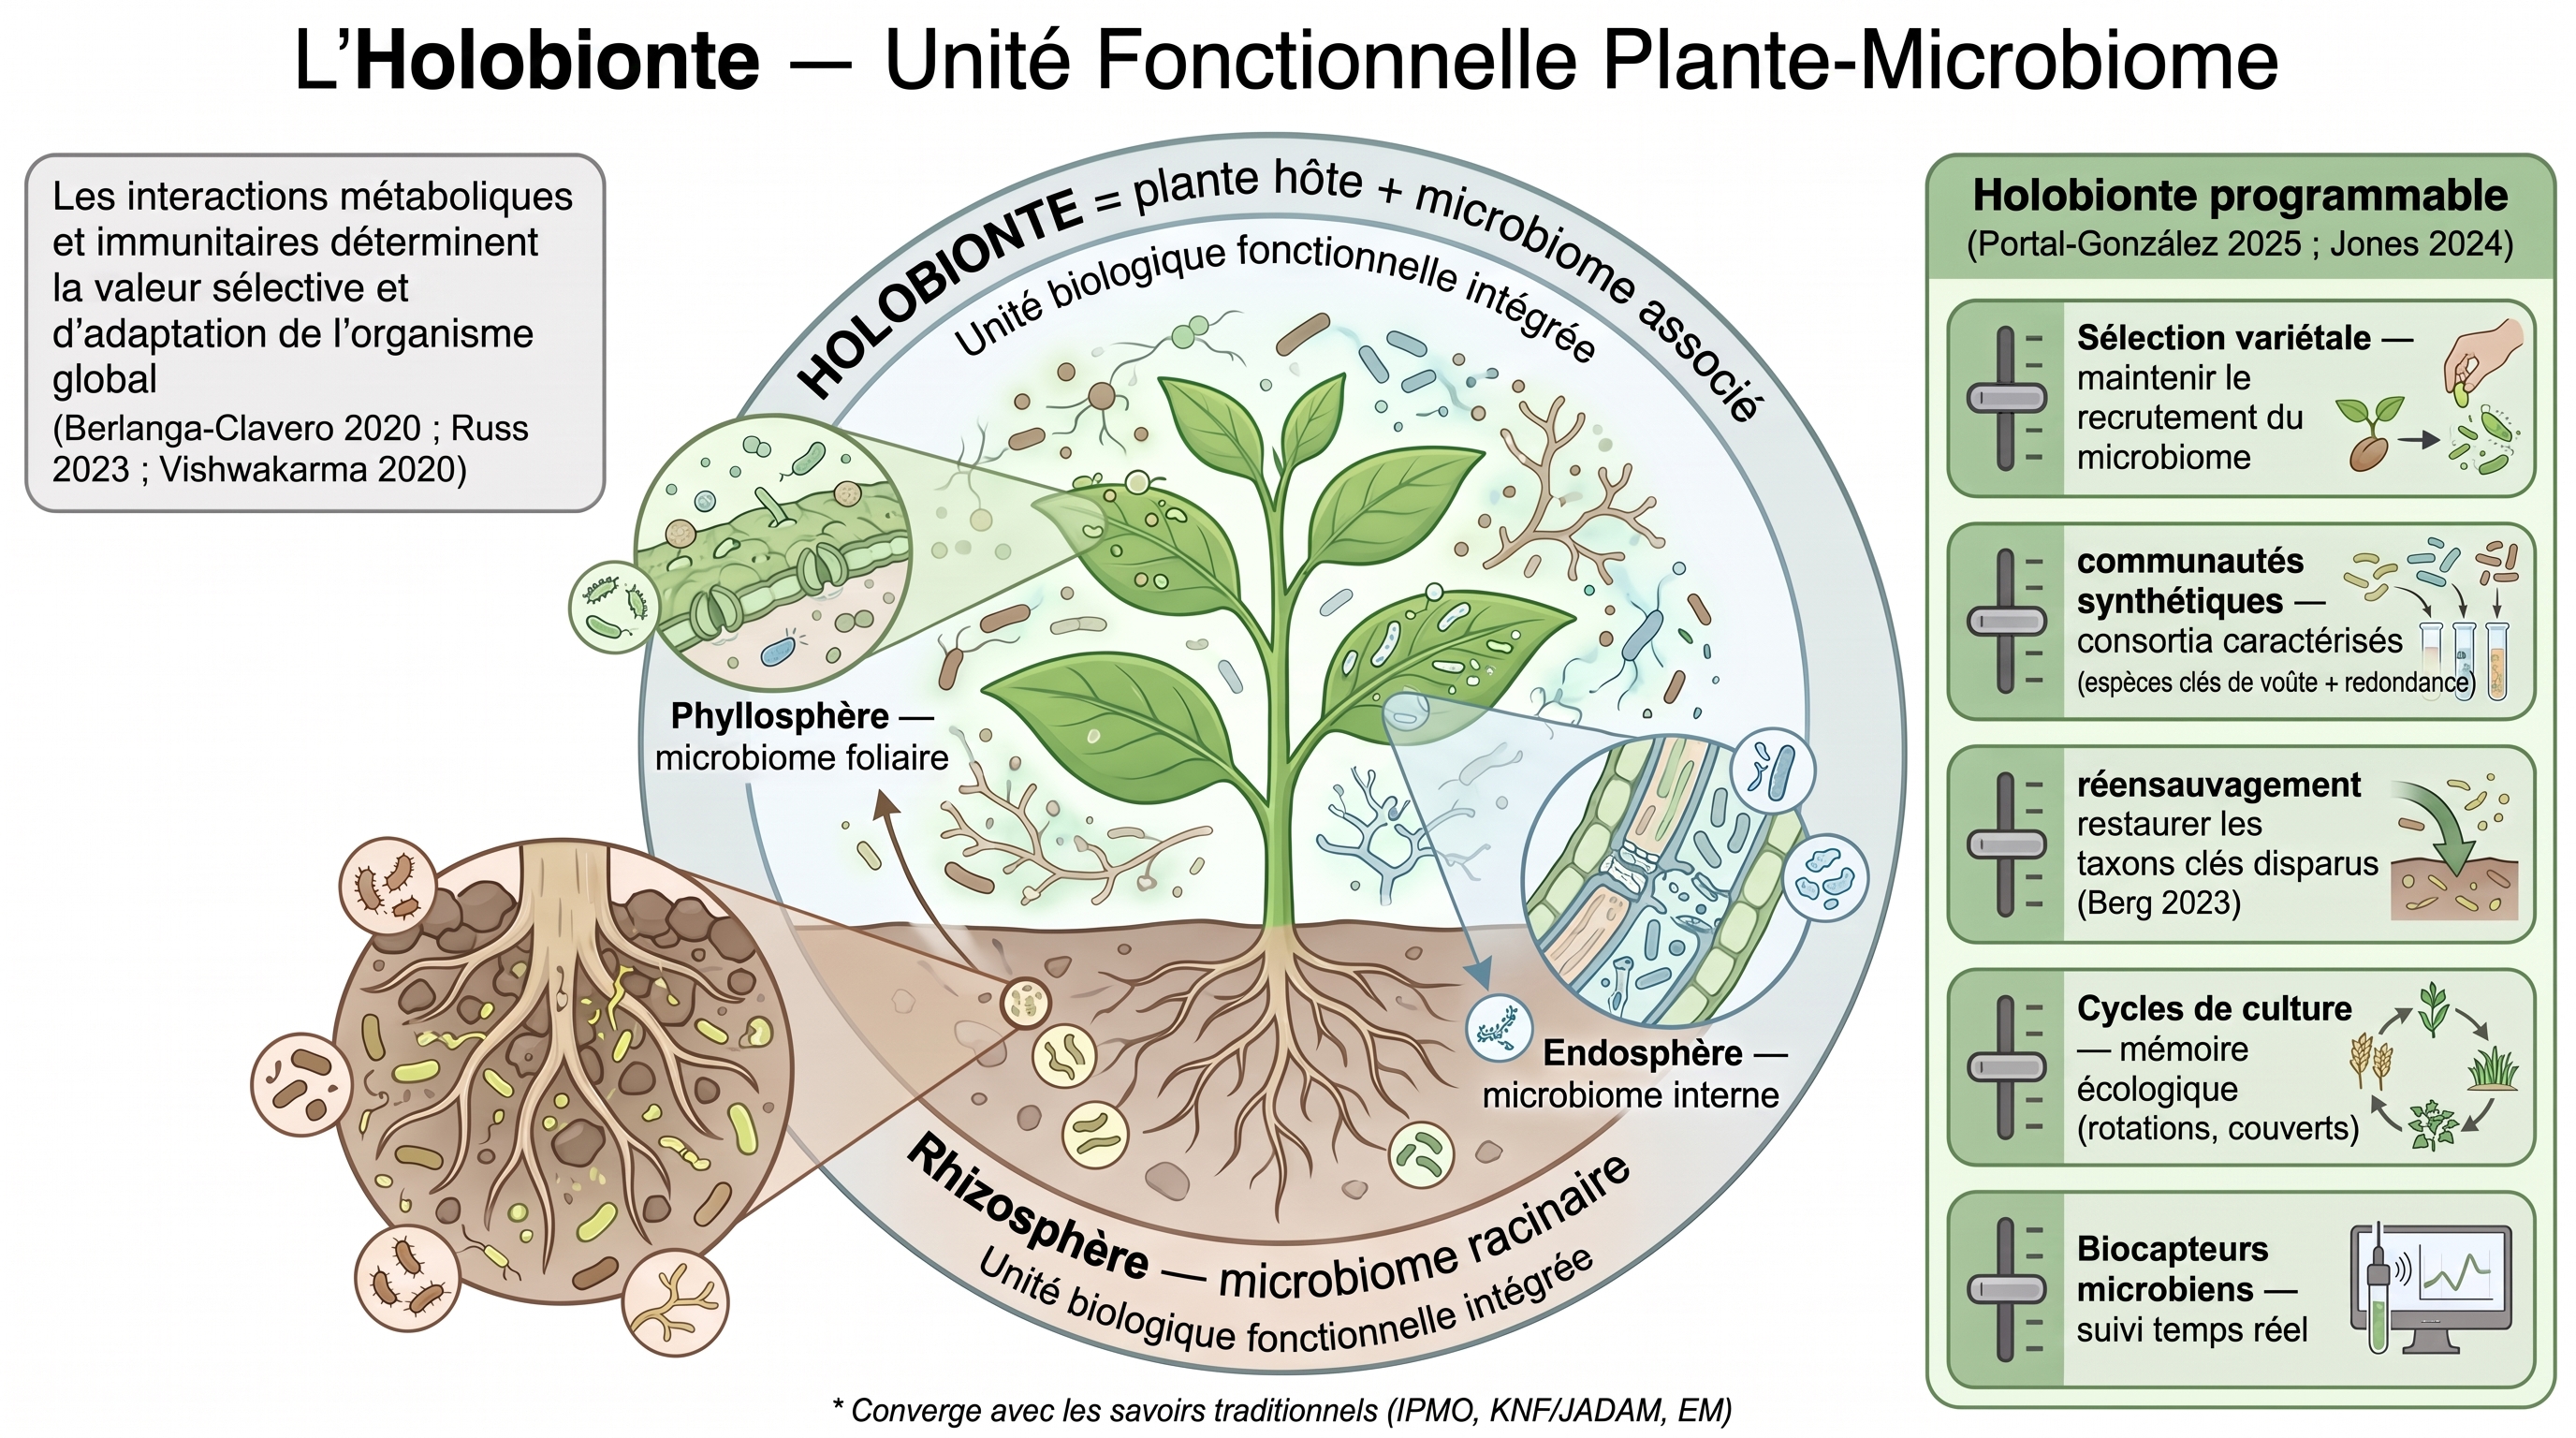
Science
L'holobionte désigne l'unité biologique fonctionnelle formée par un hôte eucaryote et l'ensemble de ses microorganismes associés (le microbiome : bactéries, archées, champignons, virus). Cette association intime transcende la simple coexistence : les interactions métaboliques, immunitaires et développementales entre les partenaires génèrent une entité intégrée, dont la valeur sélective et l'adaptation dépendent des propriétés émergentes du système. Chez les plantes, l'holobionte s'étend de la rhizosphère au phyllosphère en passant par l'endosphère, et s'inscrit dans un continuum sol-plante-microbiome. Les microorganismes modulent la nutrition minérale (azote, phosphore), la synthèse de phytohormones, la résistance aux stress biotiques et abiotiques, et la signalisation. Cette vision holistique renouvelle notre compréhension des interactions écologiques : les lombriciens, via leurs turricules et la drilosphère, construisent des biopores riches en microorganismes qui colonisent les racines, prolongeant l'holobionte dans la matrice du sol. Les champignons entomopathogènes à double identité endophyte (CEP) illustrent la plasticité fonctionnelle du microbiome, où un même organisme peut basculer d'un rôle mutualiste à un rôle parasitaire selon le contexte. Le transfert horizontal de gènes et le résistome circulant entre le sol et les plantes rappellent que l'holobionte est un nœud d'échanges génomiques constant. La mésofaune (collemboles, acariens) régule les communautés microbiennes du sol, influençant ainsi la composition et la stabilité de l'holobionte végétal. Enfin, le continuum sol-plante-humain étend cette conception à la santé globale, où l'holobionte agricole dialogue avec le microbiote intestinal humain (Zilber-Rosenberg & Rosenberg, 2008).
Cards en dialogue (9)
- Approfondit
- Approfondi par
- Voir aussi (5)
-
- Lombriciens : catégories écologiques, drilosphère, turricules, biopores et interactions racines
- CEP : double identité entomopathogène/endophyte et CBC
- Bio-indication précoce du microbiome (métabarcoding multi-marqueurs) : détection des dégradations avant manifestation visuelle
- Coalescence microbienne : quand les communautés se mélangent
- Assemblage des communautés : sélection, dispersion, dérive
Exsudats racinaires
Chaque jour, elles libèrent des sucres et des acides qui nourrissent la vie souterraine.
Ce festin recrute les bons microbes, amorce les alliances — fixation d'azote, champignons — et réveille les défenses de la plante. Il injecte aussi une bonne part du carbone capté par la photosynthèse dans le réseau du sol.
Ainsi la racine sculpte son entourage : elle choisit ses alliés et alimente la machine qui fabrique la matière organique durable. La plante ne se contente pas de grandir : elle construit son sol.
Science
Les exsudats racinaires désignent l’ensemble des composés organiques de faible poids moléculaire (sucres simples, acides organiques, acides aminés, composés phénoliques, mucilages) activement libérés par les racines vivantes dans la rhizosphère. Ce flux de rhizodéposition mobilise entre 5 et 40 % du carbone fixé par la photosynthèse — la borne haute incluant la respiration racinaire, l'exsudation nette étant plutôt de 5-20 % (Jones et al., 2009). Moteur premier de l’activité biologique, les exsudats opèrent un recrutement chimiotactique des populations microbiennes bénéfiques (PGPR) et initient un dialogue moléculaire précoce (nodulation, mycorhization), tout en activant les défenses systémiques de la plante (résistance induite). Ils génèrent un intense gradient redox à l’interface racinaire qui alimente la cascade biophysique du sol : le carbone labile soutient la bouffée respiratoire microbienne et un priming effect sur la matière organique native. Les nécromasses et métabolites secondaires issus de cette activité empruntent la voie de la stabilisation organo-minérale (matière organique associée aux minéraux, MAOM) (Cotrufo et al., 2013), tandis qu’une fraction est ingérée par la mésofaune (collemboles, acariens) qui réagence les micro-habitats au sein des biopores façonnés par les lombriciens. En sculptant la composition du rhizobiome, les exsudats exercent une pression sélective qui module le résistome environnemental et relie fonctionnellement le continuum sol-plante-microbiome, de la porosité biologique à la nutrition minérale, illustrant le paradigme du Soil Continuum Model (Lehmann & Kleber, 2015).
Cards en dialogue (3)
Résistance systémique acquise
C'est la résistance systémique acquise.
Un signal part du point d'attaque, voyage dans toute la plante et reprogramme les tissus sains : des protéines de défense s'accumulent, et la réponse suivante sera plus rapide, plus ample — un souvenir de l'agression.
Cette mémoire à large spectre est une facette de l'immunité du tout. Elle complète l'autre voie, celle ouverte par les microbes amis des racines, et s'inscrit dans le même dialogue entre le sol, la plante et son microbiome.
Science
La résistance systémique acquise (SAR) est un état de défense végétale induit, à large spectre et durable, qui rend les tissus sains de la plante résistants à une gamme étendue de pathogènes. Suite à une infection localisée, un signal mobile, souvent l'acide salicylique et ses dérivés, est généré, se propage via le système vasculaire et active une reprogrammation transcriptionnelle dans les parties distales. Cela conduit à l'accumulation de protéines liées aux pathogénèses (protéines PR) et à un état de priming immunitaire, permettant une réponse amplifiée et plus rapide lors d'attaques ultérieures (Durrant & Dong, 2004). Dans le continuum sol-plante-microbiome, cette résistance n'est qu'une facette de l'immunité intégrée de l'holobionte. En parallèle, les racines dialoguent avec la microflore rhizosphérique pour induire une résistance systémique induite (ISR), dépendante des voies du jasmonate et de l'éthylène, souvent amorcée par des rhizobactéries promotrices de la croissance. L'activité des lombriciens, qui créent des biopores et des turricules, et la régulation des micro-habitats par les collemboles modulent la structure des communautés microbiennes du sol. Cette ingénierie écologique influence indirectement la palette de signaux immunogènes perçus par les racines, estompant la frontière entre défense constitutive et acquise dans un environnement édaphique où les propriétés biophysiques, telles que le potentiel redox et la stabilité des agrégats, façonnent les éliciteurs microbiens disponibles pour la plante.
Cards en dialogue (5)
- Approfondi par
Résilience
La résilience, c'est la capacité d'un sol à maintenir fertilité, rétention d'eau et stockage du carbone face aux chocs. Elle ne se réduit pas à un retour à l'état initial : elle englobe l'absorption du choc, la réorganisation, voire un nouvel équilibre. Elle émerge de la diversité microbienne et de la redondance : si un microbe disparaît, un autre prend le relais. Certains bâtissent le rendement, d'autres chassent les ressources, d'autres tolèrent le stress — ces derniers assurent la stabilité. Labour et intrants, à l'inverse, simplifient les communautés et épuisent le capital du sol. Restaurer un sol dégradé exige des décennies.
Science
La résilience désigne la capacité d'un système sol-plante-microbiome à maintenir ses fonctions essentielles (fertilité, rétention d'eau, séquestration du carbone) face à des perturbations, qu'elles soient climatiques, anthropiques ou pathogènes. Elle ne se réduit pas à un retour à l'état initial, mais englobe l'aptitude à absorber le choc, à se réorganiser en préservant sa structure et son identité fonctionnelle, voire à évoluer vers un nouvel état stable (Holling, 1973 ; Gunderson & Holling, 2002). Dans les agrosystèmes, cette résilience émerge de la diversité microbienne et de la redondance fonctionnelle, qui garantissent le maintien des cycles biogéochimiques même après une perturbation. Les stratégies écologiques Y-A-S (rendement, acquisition, stress) y jouent un rôle clé : une communauté dominée par des micro-organismes stress-tolérants (S) assure une meilleure stabilité temporelle, tandis que les phases de recolonisation après perturbation mobilisent des stratégies d'acquisition (A — copiotrophes, analogues microbiens des rudérales R de Grime). L'évolution du sol depuis l'état nu jusqu'au climax illustre comment la résilience se construit avec le temps long : l'établissement de réseaux trophiques complexes, les associations mycorhiziennes et la formation de matière organique associée aux minéraux (MAOM) renforcent la capacité à tamponner les chocs. Le cadre redox est également déterminant : un sol bien structuré maintient des gradients d'oxygénation qui favorisent une diversité de niches et une flexibilité métabolique. À l'inverse, des pratiques intensives (labour, intrants de synthèse) réduisent cette résilience en simplifiant les communautés et en consommant le capital organique du sol. Ainsi, la résilience s'inscrit dans une temporalité irréversible : restaurer un sol dégradé exige des décennies, car la succession écologique ne se commande pas.
Cards en dialogue (7)
- Approfondit
- Voir aussi (5)
-
- Temporalité, irréversibilités et entropie des pratiques humaines
- Stratégies microbiennes : r/K et Y-A-S (rendement, acquisition, stress) le long de la succession
- Priming immunitaire végétal : opérateur cellulaire commun aux voies endogène (rhizosphère/ISR) et exogène (éliciteurs/PTI-SAR)
- Stabilité contre rendement moyen : évaluer sous climat non stationnaire
- Le marché de la résilience : produits miracles, gourous du sans-arrosage et promesse sans preuve
Antibiorésistance
La résistance s'y échange comme un secret.
Les gènes de résistance voyagent sur de petits supports mobiles que les bactéries se passent entre elles, surtout là où elles sont serrées : autour des racines, dans les galeries des vers. Le sol est un réservoir ancien de cette diversité.
Les apports de l'élevage et des eaux usées y ajoutent des pressions et des résistances nouvelles. Et le fil remonte jusqu'à nous : sol, plante, assiette, intestin — la même circulation relie la santé des champs à celle des hôpitaux.
Science
L'antibiorésistance désigne la capacité des micro-organismes à survivre et à se multiplier en présence de concentrations d'agents antimicrobiens normalement inhibitrices. Dans les sols, cette propriété est majoritairement codée par des gènes de résistance (ARGs) souvent portés par des éléments génétiques mobiles — plasmides, transposons, intégrons — qui facilitent leur dissémination par transfert horizontal entre taxons phylogénétiquement éloignés. Ce phénomène est exacerbé dans les hotspots microbiens où la densité cellulaire et les contacts physiques sont élevés : la rhizosphère, interface d'échanges entre racines et micro-organismes, ou la drilosphère, le tube digestif et les turricules des vers de terre. Le sol constitue un réservoir ancestral de diversité de résistance, le résistome (D'Costa et al., 2011), mais les apports anthropiques (effluents d'élevage, boues d'épuration, eaux usées) y introduisent des pressions sélectives et des déterminants de résistance clinique. Les champignons entomopathogènes endophytes, de même que la mésofaune (collemboles, acariens), participent à la redistribution spatiale des bactéries résistantes. Cette circulation s'inscrit dans un continuum sol-plante-humain : les gènes de résistance peuvent se retrouver sur les parties aériennes des végétaux, contaminer les aliments et, in fine, le microbiote humain, avec des conséquences thérapeutiques potentielles. Comprendre l'antibiorésistance comme une propriété écologique émergente, favorisée par la promiscuité microbienne dans des habitats partagés, invite à une gestion intégrée des effluents et à une réduction des pressions sélectives à l'échelle du paysage.
Cards en dialogue (5)
Microbiome intestinal
Les micro-organismes du sol passent aux plantes, puis à nous via les légumes crus, les fruits et les aliments fermentés. Un sol riche en vie entretient ainsi la diversité de notre flore intestinale.
L'envers : ce même pont peut faire circuler des gènes de résistance aux antibiotiques. Et un intestin appauvri, reflet d'une nourriture moins vivante, va de pair avec davantage de maladies inflammatoires et métaboliques. La santé humaine se joue aussi sous nos pieds.
Science
Le microbiome intestinal désigne la communauté microbienne complexe résidant dans le tube digestif humain, comprenant plus de 10¹³ cellules bactériennes et plus de 1 000 espèces. Cet écosystème fonctionne comme un méta-organe influençant la digestion, l’immunité et le métabolisme.
Sa composition dépend étroitement de l’exposition environnementale et de l’alimentation. Les micro-organismes du sol transitent vers les plantes par la rhizosphère et la phyllosphère, puis sont ingérés avec les végétaux crus, les fruits ou les aliments fermentés. Cette voie d’inoculation continue constitue un véritable continuum sol-plante-microbiome intestinal : la diversité microbienne du sol, entretenue par l’activité des lombriciens (drilosphère, biopores) et de la mésofaune (collemboles, acariens), se répercute sur celle du microbiome humain.
Cependant, ce continuum peut aussi servir de passerelle à des gènes de résistance aux antibiotiques, comme l’illustrent les concepts de résistome et de transfert horizontal de gènes entre compartiments.
Un microbiome intestinal appauvri, consécutif à une perte de biodiversité microbienne dans l’alimentation et l’environnement, est associé à une augmentation des maladies inflammatoires chroniques, de l’obésité et du diabète. Cette perspective holobiontique souligne que la santé humaine est indissociable de la santé des sols et des écosystèmes microbiens qui les habitent.
Cards en dialogue (3)
Flavonoïdes
Ce sont les pigments et protecteurs que les légumineuses utilisent pour inviter les bactéries fixatrices d'azote, et pour appeler les champignons qui livrent le phosphore. Un vrai tri des communications : attirer les amis, écarter les intrus.
Exsudées par la racine, elles façonnent le peuplement microbien qui l'entoure, puis se recyclent dans les cycles du sol. La plante, par sa chimie, est l'architecte de sa propre équipe racinaire.
Science
Les flavonoïdes sont une vaste famille de polyphénols, issus du métabolisme secondaire des plantes. Ils incluent les flavones, isoflavones, flavonones, catéchines et anthocyanes, et sont traditionnellement reconnus pour leurs puissantes propriétés antioxydantes (Jiménez-García et al., 2013). Au sein du continuum sol-plante-microbiome, leur rôle dépasse la simple protection cellulaire : ils constituent des signaux rhizosphériques majeurs. Exsudés par les racines, les flavonoïdes orchestrent d'étroits dialogues chimiques avec le vivant. Ils déclenchent l'activation des gènes de nodulation chez les rhizobiums, initiant la symbiose fixatrice d'azote chez les légumineuses, et stimulent la croissance des champignons mycorhiziens à arbuscules, facilitant l'accès au phosphore. Ces exsudats modèlent la structure des communautés microbiennes de la rhizosphère, favorisant des bactéries bénéfiques ou, au contraire, inhibant des pathogènes. Ce tri des communications chimiques contribue au recrutement actif du microbiome par la plante, faisant des flavonoïdes des architectes de l'holobionte racinaire. Leur dégradation et transformation par les microorganismes du sol alimentent en retour les cycles biogéochimiques, illustrant une cascade biophysique où les synthèses végétales régulent les flux d'énergie et les assemblages biologiques souterrains.
Cards en dialogue (3)
Biodisponibilité
Un élément doit d'abord se décrocher de la matrice minérale ou organique pour passer dans la solution du sol — c'est un flux permanent, pas un stock figé. Les microbes sont au cœur de ce va-et-vient : leurs réactions d'échanges d'électrons changent la solubilité des nutriments, et la zone des racines, riche en sucres, est un point chaud où la plante et ses alliés microbiens débloquent phosphore et oligo-éléments. La biodisponibilité n'est pas un simple indicateur de fertilité : c'est le vivant qui, par une cascade de processus couplés, construit la fertilité du sol.
Science
La biodisponibilité désigne la fraction d'un élément chimique du sol effectivement accessible aux organismes vivants, qu'il s'agisse des plantes ou des microorganismes. Elle ne se réduit pas à une concentration totale, mais résulte d'équilibres dynamiques entre les phases solide, liquide et gazeuse, régis par des processus physico-chimiques (adsorption/désorption, dissolution/précipitation, spéciation) et biologiques. Dans le continuum sol-plante-microbiome, la biodisponibilité est un flux plutôt qu'un stock : l'élément doit quitter la matrice minérale ou organique pour être absorbé. Les microorganismes jouent un rôle central en catalysant des réactions de redox qui modifient la solubilité des nutriments (par exemple, la réduction du fer ou la nitrification de l'ammonium). La rhizosphère, enrichie en exsudats racinaires, est un point chaud où pH et conditions redox sont localement modifiés, améliorant la biodisponibilité du phosphore et des micronutriments (Marschner, 2012). Les symbioses mycorhiziennes étendent cette exploration. À l'échelle des cycles, la biodisponibilité est régulée par la stœchiométrie C:N:P:S de la matière organique, qui détermine l'orientation nette de la minéralisation ou de l'immobilisation microbienne. La stabilisation organo-minérale (formation de complexes avec les surfaces argileuses) réduit l'accessibilité enzymatique, modulant ainsi la libération des nutriments. La biodisponibilité n'est pas simplement un indicateur de fertilité : c'est un principe génératif par lequel le vivant construit la fertilité du sol, à l'opposé d'une vision extractive. Elle reflète la capacité du système sol-holobionte à orchestrer l'alimentation des écosystèmes via une cascade de processus couplés.
Approfondissement : la fiche fiche #307 déploie le concept — pools et mesure, verrous physico-chimiques et déverrouillage biologique, double filtre sol→plante→humain.
Cards en dialogue (4)
Texture du sol
Une donnée presque immuable : on ne change pas la texture d'un champ. Si l'on ne pouvait faire qu'une analyse, ce serait l'analyse de la taille des grains, la granulométrie : le taux d'argile reste le moins mauvais repère à retenir.
Or tout en découle. Plus les particules sont fines, plus elles offrent de surface : les argiles retiennent l'eau et les nutriments, les sables les laissent filer. Un sol sableux est perméable mais pauvre et sec ; un sol argileux retient beaucoup mais respire mal ; le limon, entre les deux, bat sous la pluie. Vers 30 % d'argile, les sables et les limons sont probablement noyés dans la masse : le sol se comporte alors en argile.
La texture organise aussi la vie du sol : les argiles abritent des bactéries protégées dans leurs micro-pores, les sables favorisent les filaments de champignons. Et c'est sur l'argile et le limon fin que se fixe la matière organique durable.
Science
La texture du sol définit la composition granulométrique de la fraction minérale fine, classée selon la taille des particules en sable (50 µm à 2 mm), limon (2 à 50 µm) et argile (<2 µm) (classification USDA — Ditzler et al., 2017). Les deux seuils de 2 mm et 2 µm ne sont pas conventionnels : sous 2 mm, tout système meuble devient cohérent au contact de l’eau ; sous 2 µm, les particules peuvent prendre un état dispersé (Baize, 2018). En dessous de 2 µm se concentrent en outre les minéraux argileux et les oxyhydroxydes de fer, minéraux de néoformation issus de l’altération des minéraux primaires (Baize, 2018). Cette propriété, stable à l’échelle humaine, gouverne la surface spécifique des particules – de quelques cm²/g pour les sables à plusieurs centaines de m²/g pour les argiles (Ditzler et al., 2017) –, d’où découlent la capacité d’échange cationique (CEC), la rétention en eau et l’adsorption de molécules organiques. Un sol à dominance sableuse présente une forte perméabilité, une faible CEC et une réserve hydrique limitée ; un sol argileux offre cohésion, forte rétention mais aération restreinte avec risque d’asphyxie racinaire en excès d’eau ; le limon, intermédiaire, est sensible à la battance et à l’érosion structurale de surface. Le régime change de nature autour de 30 % d’argile : au-delà, le comportement devient « argileux », sables et limons vraisemblablement noyés dans la masse argileuse, avec une microstructure dite porphyrique (Baize, 2018). En deçà de 35 % d’argile, à l’inverse, ce sont les limons et les sables qui conditionnent les dimensions du système poral, en rapport direct avec le comportement de l’eau (Baize, 2018). Les classes texturales jouent un rôle prédictif : les diagrammes français croisent composition granulométrique, stabilité structurale, aptitude à la fissuration et risque d’asphyxie (Monnier & Stengel), aptitude au tassement (Rémy & Mathieu) ou sensibilité à la battance, diagramme de l’INRA d’Orléans (Baize, 2018). Leur validité reste bornée, ces relations concernant surtout les horizons de surface labourés (Baize, 2018). Le taux d’argile n’explique cependant pas tout : une argile purement kaolinitique n’a pas les mêmes propriétés qu’une argile smectitique, et l’histoire pédogénétique, la matière organique, les éléments grossiers ou la présence de calcaire modulent le comportement observé (Baize, 2018). Dans le continuum sol-plante-microbiome, la texture organise l’habitat microbien : les argiles offrent une porosité fine abritant des communautés bactériennes protégées, tandis que les sables favorisent les filaments fongiques et la décomposition aérobie. La stabilisation du carbone organique emprunte la voie de la nécromasse microbienne pour former la matière organique associée aux minéraux (MAOM), dont la capacité de saturation est corrélée à la teneur en argile et en limons fins. Un sol sableux montre ainsi un plafond MAOM bas, limitant sa fertilité potentielle, alors qu’un sol argileux stocke davantage de carbone, avec une dynamique redox modulant la disponibilité de l’azote et du phosphore. Dans les sols calcaires, la texture interagit avec le calcium pour bloquer partiellement le phosphore. Support physique du réseau trophique, la texture oriente les flux d’eau, de gaz et d’éléments minéraux, conditionnant la résilience et la trajectoire évolutive du sol sous l’effet des racines et des organismes ingénieurs.
Cards en dialogue (4)
- Voir aussi (4)
-
- Profil sol sableux : plafond MAOM bas, marge structurale maximale, métastabilité biologique
- Profil sol argileux : potentiel élevé mais risques redox si enfouissement et excès d'eau
- Profil sol limoneux : battance/érosion, priorité couverture et biofilms de surface
- Structure du sol (agrégats/EPS) → habitats → stabilité/résilience
Porosité
On distingue les micropores, qui retiennent l'eau capillaire, des macropores, qui assurent drainage, aération et passage des racines.
Ce qui compte n'est pas seulement le volume de vide, mais la façon dont les pores communiquent : des pores mal connectés, c'est un sol qui étouffe. Cette architecture est fabriquée par le vivant — galeries de vers de terre, canaux de racines mortes, filaments de champignons.
La texture fixe le cadre, mais c'est la structure — l'assemblage en agrégats — qui fait la porosité utile. Le sable a trop de gros pores, l'argile a beaucoup de micro-pores mais peut se compacter, le calcaire garde une macroporosité durable.
Science
La porosité d’un sol représente la fraction volumique occupée par les vides, exprimée en pourcentage (Djabelkhir, 2015 ; Wang & Zhang, 2024). On distingue la microporosité, qui retient l’eau capillaire et protège la matière organique, de la macroporosité, qui assure le drainage rapide, l’aération et la pénétration racinaire. Au-delà du volume total, la connectivité et la tortuosité des pores gouvernent les transferts d’eau, de gaz et les gradients d’oxydoréduction. Cette architecture n’est pas une propriété inerte : elle résulte de l’activité des racines (biopores), des vers de terre (galeries) et des hyphes fongiques qui stabilisent les agrégats, créant une porosité secondaire où la nécromasse microbienne se lie aux minéraux (voie MAOM). La texture (argile, limon, sable) fixe le cadre granulaire, mais c’est la structure — l’assemblage en agrégats — qui détermine la porosité fonctionnelle. Un profil sableux montre une macroporosité excessive et une microporosité trop faible pour retenir l’eau et la matière organique. Un profil argileux développe une microporosité intense mais, sans structuration biologique, il peut se compacter et basculer en anaérobiose. Les limons battants subissent le colmatage des pores superficiels sous l’impact des pluies, tandis que le calcium des sols calcaires stabilise les agrégats et maintient une macroporosité durable. Ainsi, la porosité conditionne le régime redox du sol et sa capacité à héberger un holobionte fonctionnel, faisant de chaque pore un microsite d’interactions entre le minéral et le vivant.
Cards en dialogue (4)
- Voir aussi (4)
-
- Profil sol sableux : plafond MAOM bas, marge structurale maximale, métastabilité biologique
- Lombriciens : catégories écologiques, drilosphère, turricules, biopores et interactions racines
- Compaction / semelle / faible porosité
- Conductivité hydraulique / loi de Darcy : la vitesse de l'eau, attribut biologique du sol
Labour
Le labour donne un lit de semence net, au prix de l'architecture vivante.
Le soc de charrue brise les mottes, ces logements des microbes, et expose la matière organique protégée : elle brûle alors d'un coup. Il déchire les toiles des champignons et les galeries des vers de terre, ces autoroutes de l'eau et des nutriments.
L'air forcé favorise au passage les bactéries opportunistes aux dépens des champignons bâtisseurs. La voie inverse — ne pas labourer, couvrir en permanence — reconstruit ce que le labour défait. Pas un interdit, mais un choix qui a une facture cachée.
Science
Le labour est une opération de travail du sol qui consiste à fragmenter et retourner la couche supérieure du sol afin de préparer un lit de semence, d'enfouir les résidus de culture et de contrôler les adventices (Thapa & Dura, 2024 ; Nweke, 2018). Cette perturbation mécanique intense provoque un pic temporaire de minéralisation de la matière organique et une rupture brutale de l'architecture des agrégats, qui constituent l'habitat et le support des communautés microbiennes. En exposant la matière organique protégée au sein des micro-agrégats, le labour accélère sa décomposition et réduit le stock de carbone stable selon la voie de stabilisation organo-minérale. Dans le continuum sol-plante-microbiome, cette pratique perturbe les réseaux trophiques : elle détruit les hyphes des champignons mycorhiziens et fragmente les galeries des vers de terre, rompant ainsi les continuités physiques et fonctionnelles qui assurent le transfert d'eau, de nutriments et de signaux. L’aération forcée crée des conditions oxydatives qui favorisent des communautés bactériennes opportunistes au détriment de l’activité fongique, modifiant profondément le potentiel redox et les cycles biogéochimiques. À l’inverse, les pratiques de non-labour et l’agriculture de conservation (ACS) visent à restaurer cette architecture biogénique, en maintenant une couverture permanente et une diversification des rotations. Le diagnostic terrain intégré permet de visualiser ces effets à l’échelle du profil de sol, complétant l’analyse biologique par des indicateurs de structure et de biodiversité.
Cards en dialogue (4)
- Voir aussi (4)
-
- Mode d’application : surface vs incorporation (profondeur) change le diagnostic
- Amendements organiques : compostage aérobie thermophile vs fermentations vs autres voies
- Biostimulation indigène KNF/JADAM et thermodynamique redox
- Technologies paysannes ancestrales : fermentation, couplage et aménagements
Trichoderma
C'est Trichoderma.
Il se nourrit des débris, attaque les champignons nuisibles avec des enzymes, et apprend à la plante à se défendre elle-même. Il est chez lui autour des racines comme dans les galeries des vers.
En décomposant la matière organique, il alimente les cycles du carbone et de l'azote, et son passage nourrit la matière organique durable du sol. Un bel exemple de la double identité des alliés souterrains.
Science
Trichoderma désigne un genre de champignons ascomycètes filamenteux ubiquistes, abondants dans les sols tempérés et tropicaux, où ils colonisent la rhizosphère, les débris végétaux et l’intérieur des racines. Leur succès écologique repose sur des stratégies multiples : compétition saprophyte pour l'espace et les nutriments, mycoparasitisme via des enzymes lytiques qui dégradent les parois d'autres champignons, et induction de résistance systémique chez les plantes par les voies jasmonique et éthylène (Harman, 2000). Au-delà du biocontrôle, ils participent au continuum sol-plante-microbiome en décomposant la matière organique particulaire, alimentant les réseaux trophiques qui génèrent de la nécromasse microbienne, principal précurseur de la matière organique associée aux minéraux (MAOM). Leurs exsudats modulent la composition des communautés bactériennes et fongiques, influençant les cycles biogéochimiques du carbone et de l'azote. Dans la drilosphère, les lombriciens ingèrent et dispersent leurs propagules, tandis que la mésofaune comme les collemboles régule leur abondance par broutage, illustrant l’intégration de Trichoderma dans les réseaux d’interactions du sol. Cette double identité – saprophyte, mycoparasite, endophyte facultatif – fait écho aux stratégies d’autres agents de régulation biologique, tout en posant la question du transfert horizontal de gènes au sein du résistome lorsque des souches exogènes sont massivement introduites, impact potentiel sur le continuum sol-plante-humain en lien avec la santé durable des agroécosystèmes.
Cards en dialogue (3)
Ration du sol
Sa « ration » annuelle de matière organique, c'est ce qui entretient sa vie et compense ce qu'il consomme.
Une bonne ration équilibre carbone et azote, varie les matières et fractionne les apports dans le temps. La poser en surface ou l'enfouir change la vitesse à laquelle elle se décompose.
Pour l'entretien, comptez en ordre de grandeur : de l'ordre d'un à deux centimètres de matière ligneuse, ou cinq à dix de paille, par an. Pour reconstruire un sol très dégradé, il faut un apport ponctuel bien plus massif. Ces repères viennent du terrain et s'ajustent à chaque contexte — ce ne sont pas des normes.
Science
La ration du sol désigne la quantité et la qualité des matières organiques apportées annuellement pour entretenir l'activité biologique du sol et compenser les pertes par minéralisation. Au-delà d'une simple fertilisation minérale, cette approche raisonne l'ensemble des résidus de culture, fumiers, composts, exsudats racinaires et couverts végétaux comme un flux trophique et énergétique destiné au microbiome tellurique. En transformant ces substrats, les micro-organismes pilotent la stabilisation du carbone en matière organique particulaire (MOP) et matière organique associée aux minéraux (MAOM), tout en libérant progressivement les nutriments pour les plantes.
L'équilibre d'une ration repose sur son rapport C/N, sa diversité biochimique et le fractionnement temporel des apports, de façon à éviter les déséquilibres entre processus aérobies et fermentaires. Le mode d'application — dépôt en surface, incorporation superficielle ou enfouissement — conditionne le gradient redox et la cinétique de dégradation. En agriculture de conservation, l'arrêt du labour et la couverture permanente du sol créent une stratification favorable à une minéralisation progressive ; des pratiques comme la biostimulation par micro-organismes indigènes (KNF/JADAM) ou le compostage thermophile transforment la ration en amont pour cibler des voies métaboliques spécifiques. Un diagnostic de terrain intégré (profil cultural, respirométrie, stabilité structurale) permet enfin d'ajuster cette ration aux besoins du continuum sol-plante-microbiome (Nivelle, 2017).
Ordres de grandeur (repères de terrain en climat océanique, non normatifs, à ajuster au contexte) : pour entretenir un sol vivant, la ration annuelle se situe de l'ordre de 20 à 40 t de matière sèche par hectare et par an — approximativement 1 à 2 cm de matière ligneuse (broyat, BRF) ou 5 à 10 cm de matière cellulosique (paille, foin), la densité et le foisonnement variant fortement d'un matériau à l'autre. Pour reconstruire un sol très dégradé (remonter d'environ 1 % le taux de MO sur 30 cm), il faut un apport ponctuel distinct, de l'ordre de 30 à 40 t d'humus stable par hectare — soit 60 à 80 t de matière organique fraîche à un coefficient d'humification d'environ 50 %, ou l'équivalent de 5 cm de matière ligneuse contre 25 cm de matière cellulosique. En maraîchage irrigué sous serre, la ration d'entretien peut être plus élevée (30 à 50 t MS/ha/an et plus), l'irrigation maintenant l'activité biologique plus longtemps. Ces repères chiffrés sont des ordres de grandeur opérationnels issus d'observations de terrain et d'écosystèmes de référence — pas des valeurs normatives.
Cards en dialogue (3)
Carbone organique du sol
Les microbes le transforment, et leurs propres restes s'accrochent aux particules minérales pour former le stock le plus durable ; une partie plus fragile, issue des débris végétaux, se renouvelle en continu. Ce carbone n'est pas une roche inerte : c'est un flux vivant, étroitement lié à l'azote et au phosphore, que nos pratiques agricoles peuvent soit gonfler soit épuiser. En le protégeant, on cultive à la fois la fertilité, la structure du sol et le climat.
Science
Le carbone organique du sol (COS) désigne la fraction carbonée de la matière organique du sol, excluant les résidus végétaux non décomposés et la macrofaune vivante (Landmann et al., 2023). Représentant environ la moitié de la masse de la matière organique, il constitue le plus grand réservoir terrestre de carbone organique et joue un rôle central dans la fertilité, la structure du sol et la régulation du climat. Le COS est au cœur du continuum sol-plante-microbiome : il provient essentiellement de la fixation photosynthétique du CO₂ par les plantes, qui transfèrent du carbone au sol via la litière, les exsudats racinaires et la nécromasse végétale. Dans le sol, les communautés microbiennes transforment ces apports en nécromasse microbienne, laquelle s’associe aux surfaces minérales pour former la matière organique associée aux minéraux (MAOM), principal puits de carbone à long terme. Une fraction plus labile, la matière organique particulaire (POM), constitue un pool transitoire à renouvellement rapide. La dynamique du COS est étroitement couplée aux cycles de l’azote et du phosphore via la stœchiométrie C:N:P des résidus et de la biomasse microbienne ; les modèles de type AMG simulent ces flux pour prédire l’évolution des stocks. Les processus de stabilisation organo-minérale et l’agrégation protègent le COS de la minéralisation, tandis que les conditions redox modulent l’activité microbienne. Contrairement aux carbonates pédogéniques, qui constituent du carbone inorganique, le COS est biogénique et dynamique, régulé par l’usage des terres et les pratiques agricoles. Comprendre son cheminement, de la photosynthèse à la MAOM, est essentiel pour préserver la santé des sols et atténuer le changement climatique.
Cards en dialogue (4)
- Voir aussi (4)
-
- Cycle du carbone : de la photosynthèse à la MAOM
- Soil Continuum Model (SCM) : fin du paradigme de l'humification, necromasse microbienne et fractions fonctionnelles MAOM/POM
- Saturation du MAOM et plafond de séquestration : la limite du stockage organo-minéral
- Couleur du sol : code Munsell et lecture chromatique du profil
Agrégation
Cette construction ne se fait pas toute seule : les racines et les filaments des champignons enlacent les grains, tandis que des colles naturelles — sucres des racines, gels des bactéries, protéines des champignons — les cimentent entre eux. Les mottes les plus fines se lient d'autant mieux qu'elles sont riches en argile et en matière organique. Des mottes plus grosses se forment autour de débris végétaux en décomposition, devenant des points chauds d'activité. Cette architecture ne sert pas qu'à retenir l'eau : elle met le carbone à l'abri et oriente la circulation des nutriments.
Illustration : Fig. card 214-A · Formation des micro-agrégats…
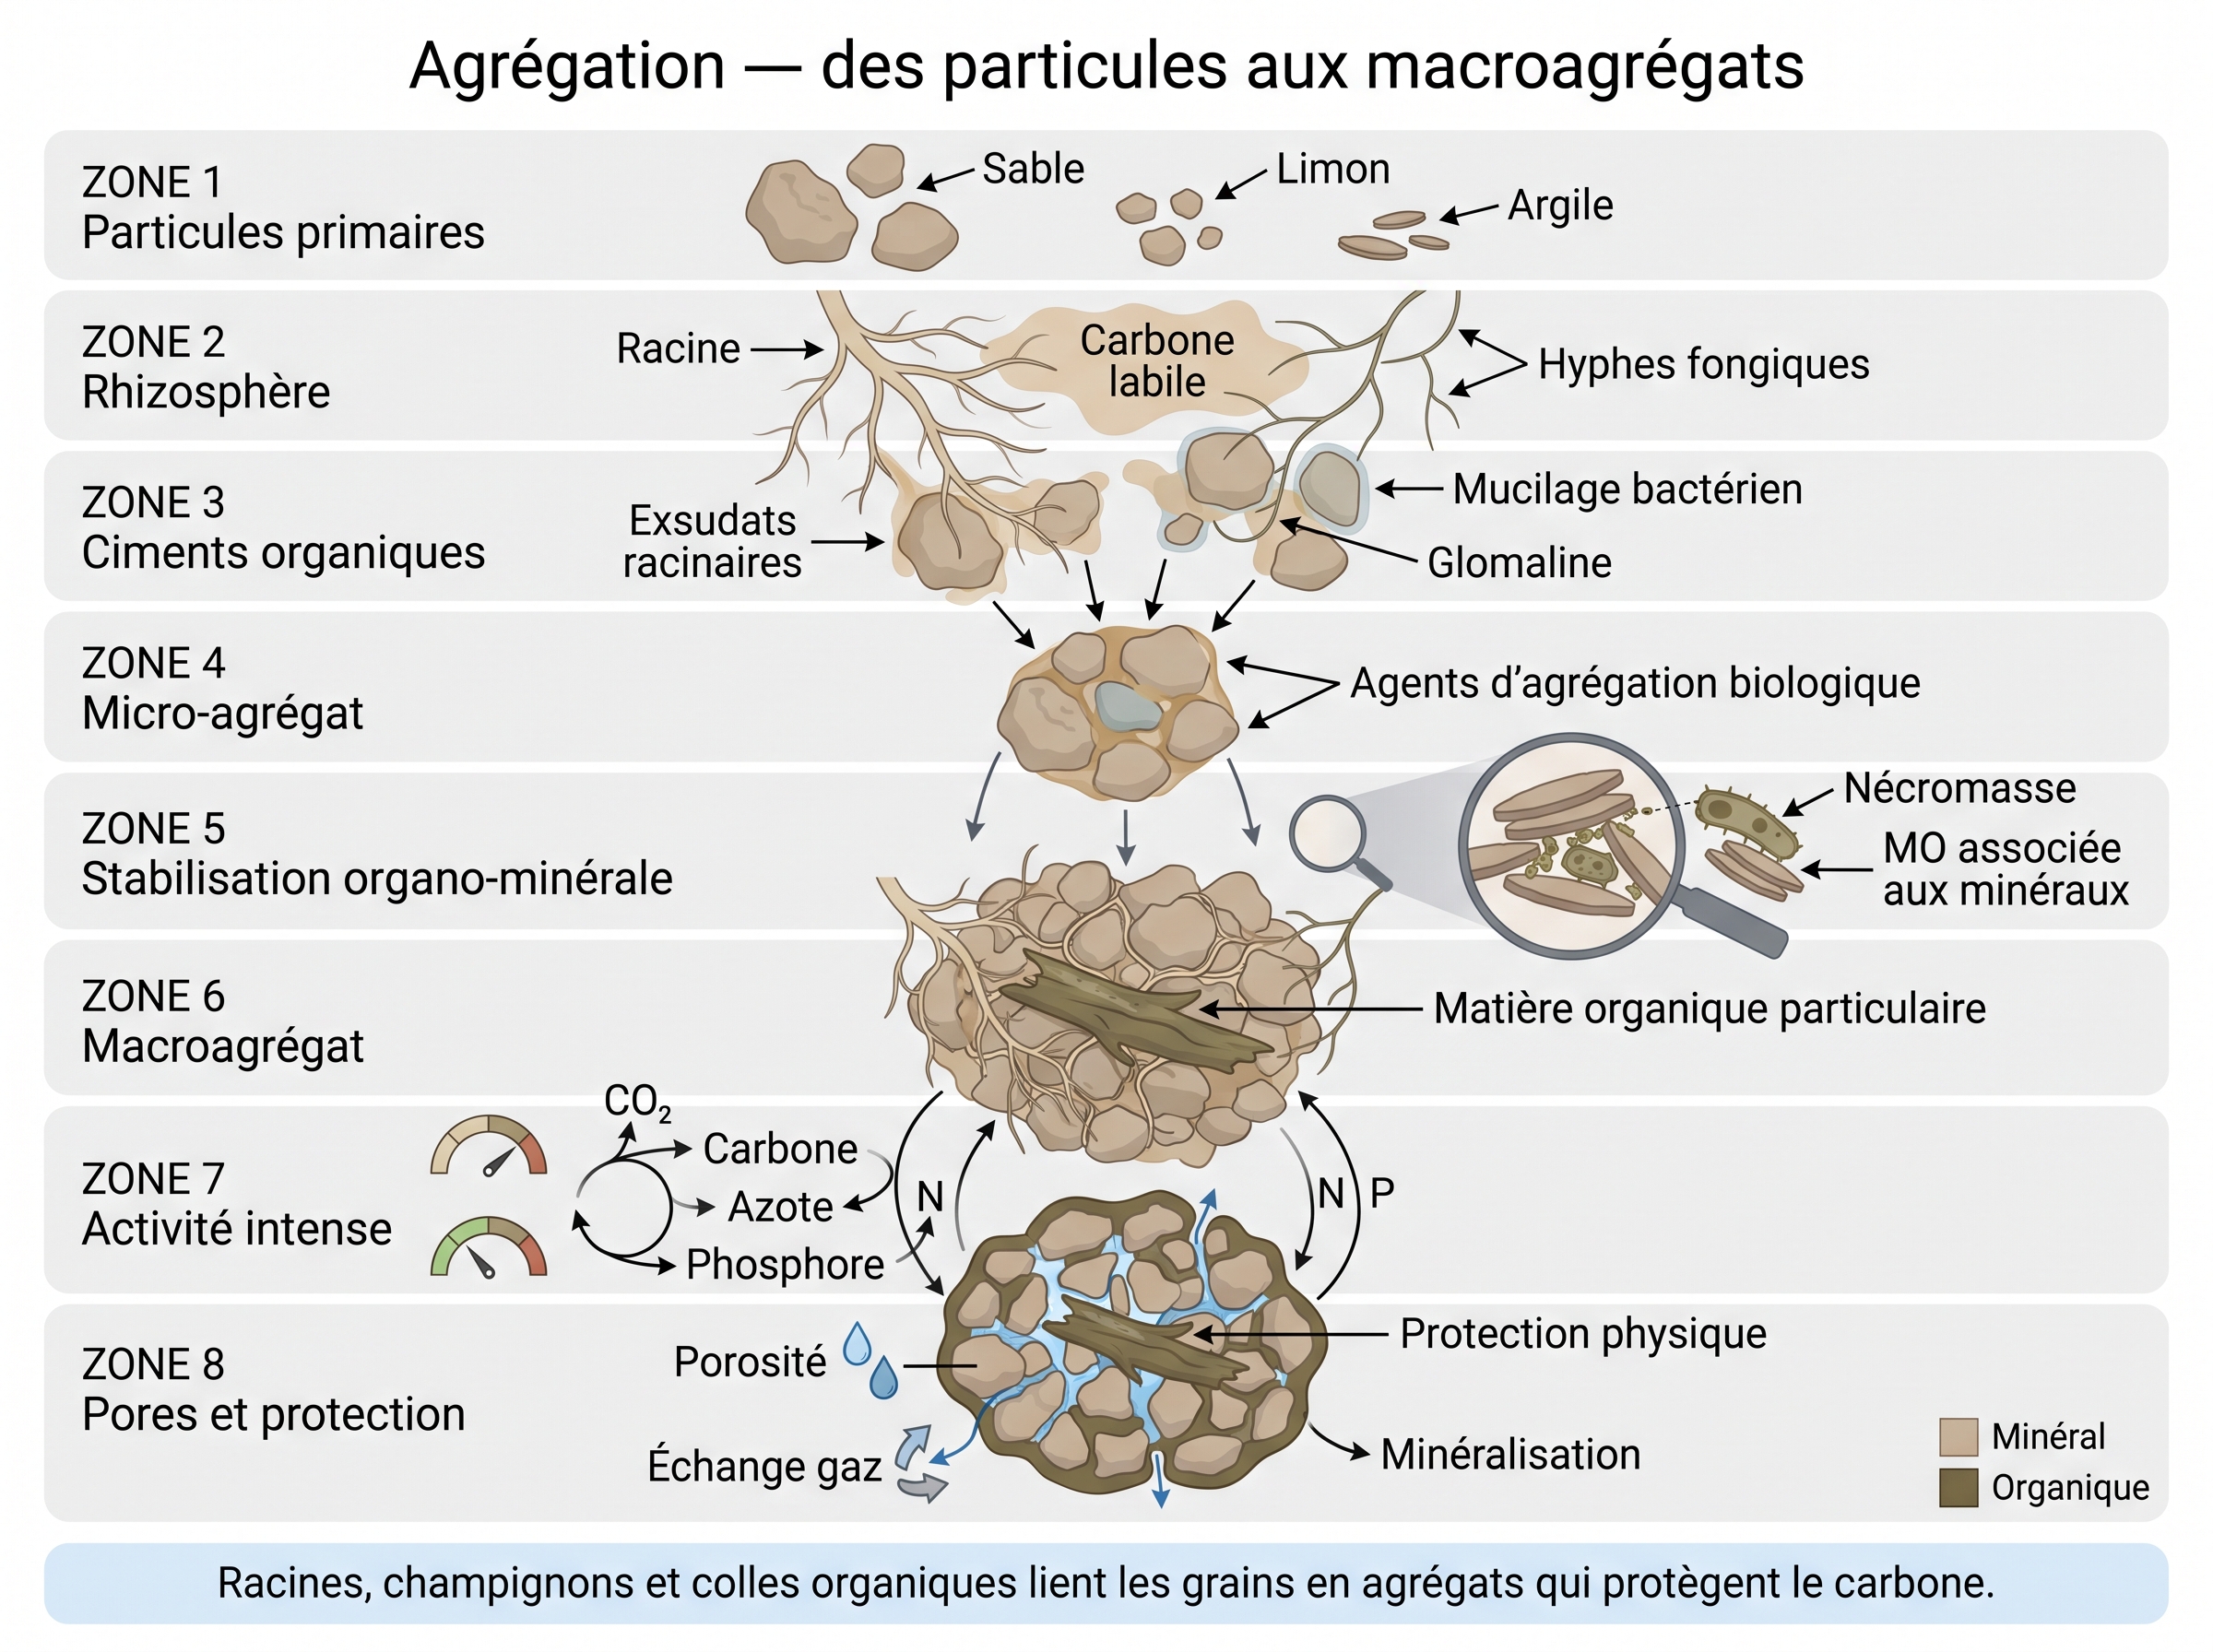
Science
L’agrégation désigne le processus biophysique par lequel les particules minérales primaires (sables, limons, argiles) s’assemblent en unités structurales hiérarchisées, ou agrégats, sous l’effet de forces de liaison supérieures à celles qui unissent les agrégats voisins (Dalal & Bridge, 2020 ; Lal, 2019). Ce phénomène est le moteur de l’architecture du sol : il crée un réseau complexe de pores qui régule la circulation de l’eau, la diffusion des gaz et l’habitat des micro-organismes. Loin d’être un simple processus physique, l’agrégation est intimement pilotée par le continuum sol-plante-microbiome. Les racines et les hyphès fongiques enlacent mécaniquement les particules tandis que les exsudats racinaires, les mucilages bactériens et les glycoprotéines (comme les protéines fongiques de type glomaline — GRSP, pool opérationnel plutôt que molécule unique) agissent comme des ciments organiques. Ces agents liants initient la formation de microagrégats stables dont la cohésion est renforcée par l’association intime entre argiles et matière organique nécromassique, un processus de stabilisation organo-minérale qui aboutit à la fraction fine du sol souvent qualifiée de matière organique associée aux minéraux (MAOM). À une échelle supérieure, les macroagrégats se forment autour de fragments de matière organique particulaire (POM) en décomposition, créant des microsites d’activité biologique intense où les cycles du carbone, de l’azote et du phosphore se couplent étroitement. La dynamique de l’agrégation reflète ainsi la stœchiométrie des ressources et l’activité photosynthétique qui alimente la rhizosphère en carbone labile. En retour, la structure agrégée protège physiquement le carbone organique de la minéralisation rapide et module le potentiel redox local, influençant la mobilité des nutriments et la cascade de réactions biogéochimiques qui traversent le sol vivant.
Cards en dialogue (4)
Biocontrôle
C'est le biocontrôle : laisser la nature faire la police.
Prédateurs, guêpes parasites, champignons tueurs, bactéries utiles : chacun régule les ravageurs au sein de la chaîne alimentaire. Souvent, ils ne tuent même pas directement — ils réveillent les défenses de la plante ou occupent la place que l'intrus convoitait.
Mais ces alliés ne s'installent que là où le sol est vivant : matière organique, diversité microbienne, couverts, rotations. Un sol mort ne leur offre aucun gîte. Le biocontrôle est un travail d'équipe, pas un substitut qu'on épand.
Science
Le biocontrôle est une stratégie de protection des cultures qui mobilise des organismes vivants (prédateurs, parasitoïdes, champignons entomopathogènes comme Beauveria, bactéries du sol telles que Bacillus) pour limiter les populations d'ennemis des plantes, en s’inscrivant dans la dynamique des réseaux trophiques (van Lenteren et al., 2018 ; Martínez-Viveros et al., 2010). Plutôt qu’un simple remplacement des pesticides de synthèse, il s’appuie sur les interactions biotiques qui régulent naturellement les pathogènes et les ravageurs au sein du continuum sol-plante-microbiome. Les agents microbiens agissent souvent en activant les défenses systémiques de la plante ou en entrant en compétition pour la rhizosphère, modulant ainsi l’holobionte plante. L’efficacité du biocontrôle dépend étroitement du contexte agronomique : un sol vivant, riche en matière organique évoluée et structuré par une diversité microbienne, constitue un habitat favorable à l’établissement et à la persistance des organismes auxiliaires. Dans une logique de santé globale du sol, le biocontrôle se combine à des pratiques régénératrices comme la couverture permanente du sol, la rotation diversifiée ou les amendements organisés par fermentation, qui entretiennent une stabilité redox et un microbiome antagoniste. Le diagnostic terrain intégré (profil bêché, indicateurs biologiques) permet d’adapter le choix des agents de biocontrôle à l’état du sol, en privilégiant une régulation générative plutôt qu’une simple substitution d’intrants.
Approfondissement : la fiche fiche #304 déploie le sujet en détail.
Cards en dialogue (6)
- Approfondit
- Voir aussi (4)
-
- Mode d’application : surface vs incorporation (profondeur) change le diagnostic
- Amendements organiques : compostage aérobie thermophile vs fermentations vs autres voies
- Microorganismes prédateurs indigènes (IPMO) : la capture ciblée par appât insecte
- Le marché de la résilience : produits miracles, gourous du sans-arrosage et promesse sans preuve
Suppressivité
Ce don naturel a un nom : la suppressivité.
Le secret est la communauté microbienne : elle affame les pathogènes, les empoisonne, les parasite, ou arme la plante. La diversité fonctionne comme une barrière vivante.
Les vers de terre et les petites bêtes du sol l'entretiennent en brassant la matière organique. C'est une propriété qui se cultive : un sol vivant se protège tout seul, là où un sol nu attend l'ennemi.
Science
La suppressivité désigne la capacité naturelle d’un sol à inhiber l’établissement, la persistance ou l’activité d’un organisme nuisible, même en présence d’une plante hôte sensible et de conditions climatiques favorables (Lemanceau et al., 2017). Ce phénomène repose sur la communauté microbienne du sol, dont la diversité fonctionnelle et les interactions créent un effet barrière contre les pathogènes. On distingue une suppressivité générale, liée à l’activité microbienne totale, et une suppressivité spécifique, due à l’action d’antagonistes sélectionnés. Les mécanismes incluent la compétition pour les nutriments et le fer, l’antibiose, le parasitisme et l’induction de résistance systémique chez la plante. Dans le continuum sol-plante-microbiome, la suppressivité émerge des rétroactions entre les exsudats racinaires, le microbiote rhizosphérique et les propriétés du sol. Les lombriciens, par leur activité de bioturbation et la création de la drilosphère, enrichissent la matière organique et stimulent les communautés microbiennes suppressives. La mésofaune (collemboles, acariens) régule les populations microbiennes par prédation, stabilisant l’holobionte. Les champignons entomopathogènes endophytes illustrent une protection croisée qui conjugue action insecticide et renforcement des défenses végétales. Toutefois, les mécanismes d’antibiose mobilisent parfois des gènes de résistance, soulignant l’intrication entre suppressivité, résistome et transfert horizontal, et inscrivant cette propriété dans le continuum de santé qui relie le sol aux populations humaines.
Cards en dialogue (4)
- Voir aussi (4)
-
- Lombriciens : catégories écologiques, drilosphère, turricules, biopores et interactions racines
- CEP : double identité entomopathogène/endophyte et CBC
- Sidérophores et voie de capture mycorhizienne : mobilisation biologique des micronutriments métalliques
- ASD : désinfection anaérobie du sol par biofumigation
Anaérobiose
Privés d'air, les microbes ne meurent pas : ils changent de respiration et puisent leur énergie ailleurs — dans le nitrate, la rouille, le soufre, le gaz carbonique.
Cela se joue dans d'innombrables poches minuscules disséminées dans le sol : au cœur des mottes, autour des racines, partout où la vie consomme l'air plus vite qu'il n'arrive. Chaque poche suit la même cascade de carburants de secours, du plus riche au plus pauvre.
Cette cascade gouverne les grands cycles : elle libère le phosphore du fer, émet des gaz comme le protoxyde d'azote ou le méthane, et peut tout aussi bien nourrir que nuire. La comprendre, dans l'espace et dans le temps, c'est saisir le moteur caché du sol vivant.
Science
L’anaérobiose désigne l’état d’un milieu dépourvu d’oxygène moléculaire (O2), où les microorganismes tirent leur énergie de fermentations ou de respirations anaérobies en utilisant des accepteurs d’électrons alternatifs (nitrates, oxydes de fer et manganèse, sulfates, dioxyde de carbone). Dans les sols, la structure poreuse et l’activité microbienne génèrent d’innombrables microzones anoxiques (agrégats, rhizosphère) où la consommation locale d’O2 dépasse la diffusion (Sexstone et al., 1985). Ces bioréacteurs anaérobies sont le siège d’une succession redox (« redox ladder ») : chaque accepteur est réduit selon un potentiel décroissant, depuis les nitrates (dénitrification) jusqu’à la méthanogenèse, en passant par la réduction du fer ferrique et des sulfates. Cette cascade thermodynamique gouverne les grands cycles biogéochimiques : la réduction du fer libère du phosphore associé (par exemple sous forme de vivianite), la sulfato-réduction mobilise des métaux, la dénitrification émet du N2O et du N2, tandis que la méthanogenèse produit du CH4. La mesure du potentiel redox (Eh) et du rH2, indicateur de la capacité redox (« poising capacity »), permet de caractériser l’intensité de l’anaérobiose et la résistance du milieu au changement. Les alternances redox créent une mémoire redox (concept émergent, encore peu établi) : des noyaux de réduction persistants conservent une activité anaérobie résiduelle, facilitant la reprise des processus réducteurs lors du retour de conditions favorables. Dans le continuum sol-plante-microbiome, la rhizosphère est un point chaud d’anaérobiose, car les exsudats racinaires stimulent la respiration microbienne, abaissant localement la pression en O2 et activant des voies anaérobies tant bénéfiques (réduction dissimilatrice du nitrate en ammonium, solubilisation du phosphate) que préoccupantes (émissions de gaz à effet de serre). Comprendre l’anaérobiose dans ses dimensions spatiale et temporelle est donc essentiel pour appréhender les flux de nutriments et la dynamique holobiontique du sol.
Cards en dialogue (5)
- Voir aussi (5)
-
- Redox central : gradients, microzones et 'redox ladder'
- Fermentations appliquées : bokashi, EM, KNF, JADAM, LiFoFer
- Le sol comme incubateur évolutif : microsites anoxiques, reliques de l'Archéen et matière noire microbienne
- ASD : désinfection anaérobie du sol par biofumigation
- Signature olfactive du sol vivant : COV microbiens (géosmine, pétrichor)
Rhizosphère
La racine y libère sans cesse sucres, acides et cellules mortes : les microbes s'y pressent bien plus nombreux qu'ailleurs. En retour, ils découpent la matière organique et débloquent phosphore et fer pour la plante.
Le pH et l'oxygène y fluctuent au rythme de ces échanges, formant un carrefour où tout circule : l'eau, les gaz, les nutriments. C'est le point d'entrée du carbone de la plante dans le réseau du sol.
Science
La rhizosphère désigne le volume de sol intimement influencé par l'activité d'une racine vivante. Cette zone constitue un hot-spot biologique où la libération continue de rhizodépôts — exsudats sucrés, acides organiques, mucilage et cellules desquamées — nourrit des communautés microbiennes bien plus denses et actives que dans le sol nu (Hiltner, 1904 ; Hartmann et al., 2007 ; Philippot et al., 2013). Cet effet rhizosphérique modifie radicalement les propriétés physico-chimiques locales : le pH et le potentiel redox y fluctuent au rythme des absorptions racinaires et de la respiration microbienne, formant un gradient biogéochimique qui régule la disponibilité des nutriments. La rhizosphère est l’épicentre du continuum sol-plante-microbiome : le carbone issu de la photosynthèse y est injecté dans le réseau trophique tellurique, tandis que les micro-organismes minéralisent la matière organique et mobilisent le phosphore ou le fer pour la plante. Cette interface dynamique interagit avec la drilosphère lorsque les galeries des vers de terre croisent le front racinaire, créant des biopores enrichis où les échanges eau-gaz-nutriments sont amplifiés. La mésofaune (collemboles, acariens) y régule les populations microbiennes par prédation sélective. Certains micro-organismes y expriment une remarquable plasticité écologique, à l’image de champignons entomopathogènes qui basculent vers un mode de vie endophyte bénéfique. Enfin, la rhizosphère est un lieu clé de stabilisation du carbone : la nécromasse microbienne s’y associe aux surfaces minérales, contribuant à la formation de matière organique persistante.
Cards en dialogue (11)
- Approfondit
- Voir aussi (9)
-
- Endophytes ubiquitaires et potentiel pathogène latent
- Co-inoculation Bradyrhizobium + Azospirillum : synergie physiologique au-delà de la FBN
- Strigolactones : signal à triple fonction (architecture, mycorhize, parasitisme)
- Immunité nutritionnelle : forme d'azote (NH₄⁺/NO₃⁻) → protéosynthèse → signalisation JA-SA
- Legacy phosphorus : le trésor enfoui des sols agricoles
- BNI : quand la plante freine sa propre nitrification
- MHB : les bactéries auxiliaires de la mycorhization
- Aquaponie découplée
- Aquaponie sur sable (iAVs) : le lit de sable comme sol
Éthylène
C'est aussi son signal de stress.
Sous un coup dur, la plante en produit trop, et ses racines en pâtissent. Mais certaines bactéries du sol savent calmer ce signal, aidant la plante à traverser la sécheresse ou l'agression.
Le sol influence donc la plante par cette hormone, en dialogue avec les deux grandes voies de défense. La physiologie végétale ne se joue pas seulement dans la plante, mais dans son échange avec la vie du sol.
Science
L'éthylène (C₂H₄) est une phytohormone gazeuse clé, régulant à la fois le développement végétal (germination, sénescence, maturation des fruits) et les réponses aux stress biotiques et abiotiques. Dans le continuum sol-plante-microbiome, l'éthylène agit comme un signal volatile majeur, intégrant les perceptions racinaires aux partenaires microbiens de la rhizosphère. Sa biosynthèse, à partir de la S-adénosyl-L-méthionine via l'acide 1-aminocyclopropane-1-carboxylique (ACC), est finement régulée par des facteurs environnementaux et microbiens. En situation de stress, l'accumulation d'éthylène peut inhiber la croissance racinaire et altérer la symbiose mycorhizienne, mais certaines rhizobactéries promotrices de la croissance des plantes (PGPR) possèdent une ACC désaminase qui dégrade le précurseur ACC, réduisant ainsi les niveaux d'éthylène et atténuant le stress (Glick, 2014). Cette modulation microbienne de l'éthylène illustre une interaction bidirectionnelle : les communautés du sol influencent la physiologie végétale via cette hormone. Par ailleurs, l'éthylène orchestre les voies de défense en interaction avec l'acide jasmonique et l'acide salicylique, façonnant la résistance aux pathogènes. Dans le sol, la drilosphère et les turricules des lombriciens créent des micro-habitats enrichis en matière organique et en micro-organismes, où les gradients d'éthylène pourraient participer à la signalisation locale (hypothèse peu documentée). La mésofaune (collemboles, acariens), en régulant les communautés fongiques et bactériennes, module indirectement la production d'éthylène dans la rhizosphère. Les champignons entomopathogènes et endophytes (CEP) exploitent également la signalisation éthylène pour basculer entre phases de colonisation et de défense de la plante. In fine, cette hormone volatile tisse un lien entre la santé du sol, la résilience de la plante, et indirectement la qualité des productions végétales, s'inscrivant pleinement dans le continuum sol-plante-humain.
Cards en dialogue (3)
Métabolites secondaires
Ce sont les métabolites secondaires.
Alcaloïdes, parfums, composés amers : ces substances attirent les alliés, repoussent les intrus, et modulent l'accès aux nutriments. Elles sculptent le peuplement du sol autour des racines.
Certaines influenceraient même la circulation des gènes entre microbes en période de stress — une piste encore à étayer. Loin d'être des déchets, c'est le vocabulaire par lequel le vivant s'accorde sous la terre.
Science
Les métabolites secondaires désignent un vaste ensemble de molécules synthétisées par les plantes et les microorganismes, extérieures aux voies universelles du métabolisme primaire, mais cruciales pour la persistance et l’adaptation dans un environnement dynamique. Loin d’être de simples déchets, ils constituent le vocabulaire chimique de la communication interspécifique et de la défense. Dans le continuum sol-plante-microbiome, ces composés – alcaloïdes, terpénoïdes, composés phénoliques, peptides non ribosomiques – sont exsudés par les racines ou libérés lors de la décomposition des litières. Ils sculptent la rhizosphère en agissant comme agents de signalisation (attirant des symbiotes bénéfiques ou des endophytes entomopathogènes), comme barrières (inhibant des pathogènes via une antibiose ciblée), ou comme agents chélatants modulant la biodisponibilité des nutriments. Cette régulation chimique participe à la structuration des communautés microbiennes et aux boucles de rétroaction avec la mésofaune (collemboles, acariens), dont le broutage sélectif est guidé par ces signatures moléculaires. Les turricules de lombriciens et les biopores deviennent des points chauds de transformation où les métabolites secondaires, ingérés, sont co-métabolisés ou adsorbés sur les surfaces minérales, contribuant à la stabilisation de la matière organique sans recourir au concept archaïque d’humification. In fine, ces molécules régulent le potentiel redox d’agrégats, influenceraient le transfert horizontal de gènes en conditions de stress (mécanisme indirect, à étayer) et illustrent la co-construction antifragile du sol par le vivant.
Cards en dialogue (3)
Biomasse microbienne
Cette petite masse vivante ne représente qu'une faible part de la matière organique, mais se renouvelle en quelques jours à quelques semaines : c'est elle le moteur du sol. Ce sont ces microbes qui décomposent les débris végétaux et rendent aux plantes l'azote, le phosphore et le soufre dont elles ont besoin. En mourant, ils laissent leurs restes dans le sol, qui viennent nourrir la matière organique stable où le carbone se stocke sur le long terme. Leur travail dépend de l'équilibre entre carbone, azote, phosphore et soufre dans leurs aliments. Comme ils réagissent vite, leur mesure révèle l'état du sol bien avant que la matière organique totale ne bouge.
Science
La biomasse microbienne désigne l'ensemble des micro-organismes vivants du sol — bactéries, champignons, archées — constituant la fraction active de la matière organique. Bien que sa masse soit modeste, représentant généralement moins de 5 % du carbone organique total, son taux de renouvellement très rapide, de l'ordre de quelques jours à quelques semaines, en fait le moteur central des cycles biogéochimiques. Cette composante vivante catalyse la décomposition des résidus organiques, assurant la minéralisation des éléments essentiels (azote, phosphore, soufre) sous des formes assimilables par les plantes. Au sein du continuum sol-plante-microbiome, la biomasse microbienne gouverne le devenir du carbone : elle transforme les apports végétaux (matière organique particulaire, POM) et, par sa nécromasse, alimente la stabilisation organo-minérale (matière organique associée aux minéraux, MAOM) qui séquestre le carbone à long terme (Lehmann & Kleber, 2015). Son activité est étroitement régulée par la stœchiométrie C:N:P:S des substrats, qui conditionne l'équilibre entre immobilisation et libération de nutriments. La biomasse microbienne orchestre ainsi les cycles couplés du carbone, de l'azote et du phosphore : elle porte la fixation symbiotique de N₂, la nitrification, la dénitrification, la solubilisation des phosphates minéraux et le recyclage des composés organiques. En interaction avec la phase minérale, notamment les carbonates qui tamponnent le pH, elle module les flux de gaz à effet de serre (CO₂, N₂O) et la fertilité des sols. Indicateur précoce et sensible, la biomasse microbienne réagit aux changements de pratiques agricoles bien avant les variations mesurables du stock de matière organique totale.
Cards en dialogue (4)
Agroforesterie
L'agroforesterie réconcilie l'arbre et la culture.
Les racines des arbres plongent profond, interceptent les nutriments que la pluie avait entraînés hors de portée des cultures, et les remontent à la surface sous forme de feuilles mortes. Cette matière ligneuse se transforme en carbone durable du sol.
S'ajoutent l'ombre, le coupe-vent, la rétention d'eau, la résistance à la sécheresse — et dessous, un sol qui ne dort jamais. C'est plus que la somme des parties : l'arbre et la culture se nourrissent mutuellement à travers le sol vivant.
Science
L’agroforesterie désigne un mode de gestion intégré des terres associant délibérément des arbres ou arbustes au sein des cultures ou des systèmes pastoraux (Ngaba et al., 2023). Cette pratique exploite la complémentarité écologique entre les composantes ligneuses et herbacées pour assurer des fonctions de production, de protection du sol et d’amélioration de la fertilité. En profondeur, le système racinaire des arbres intercepte les nutriments lessivés et les remobilise par la litière aérienne et la rhizodéposition, alimentant ainsi le compartiment microbien. La matière organique issue de cette biomasse ligneuse est en partie stabilisée sous forme de matière organique associée aux minéraux (MAOM), contribuant au stockage durable du carbone. Les exsudats racinaires et les résidus foliaires stimulent l’activité des micro-organismes du sol, pilotant les cycles de l’azote, du phosphore et du soufre via des réactions d’oxydo-réduction (redox) qui dépendent de l’aération locale. L’agroforesterie améliore ainsi la structure du sol, la rétention en eau et la résilience face aux stress hydriques. Cette approche s’inscrit naturellement dans les principes de l’agriculture de conservation (couverture permanente, non-labour, diversification) et se combine souvent avec des amendements organiques compostés ou fermentés, dont l’efficacité dépend du mode d’application en surface ou incorporé. Un diagnostic terrain intégré, couplant profil cultural et indicateurs biologiques, permet de suivre l’évolution de la qualité du sol sous agroforesterie. En favorisant une antifragilité du système sol-plante-microbiome, l’agroforesterie dépasse la simple addition de production ; elle orchestre un continuum fonctionnel entre les strates végétales et la vie souterraine.
Cards en dialogue (7)
- Approfondit
- Voir aussi (5)
-
- Mode d’application : surface vs incorporation (profondeur) change le diagnostic
- Amendements organiques : compostage aérobie thermophile vs fermentations vs autres voies
- Biostimulation indigène KNF/JADAM et thermodynamique redox
- L'arbre moteur du cycle de l'eau : recyclage des précipitations et rivières volantes
- Le saule (Salix), arbre-ressource multi-services
Légumineuses
Elles hébergent des usines vivantes dans leurs racines.
Dans de petits nodules accrochés aux racines, des bactéries capturent l'azote de l'air et le transforment en nourriture pour la plante — en échange de sucres. Un vrai troc.
Cet azote profite ensuite au sol, via les débris et les sécrétions de la plante. D'où leur rôle central dans les rotations : moins d'engrais de synthèse, plus de matière organique. Sur le terrain, un nodule rosé et abondant est le signe que la symbiose tourne.
Science
Les légumineuses (Fabaceae) sont une famille de plantes capables d'établir une symbiose fixatrice d'azote avec des bactéries du sol (rhizobia). Au sein de nodosités racinaires, ces bactéries convertissent le diazote atmosphérique (N₂) en ammonium (NH₄⁺) grâce à la nitrogénase, une enzyme très sensible à l'oxygène, ce qui nécessite un micro-environnement réducteur finement régulé par la plante. En retour, les photosynthétats fournissent l'énergie nécessaire à cette fixation biologique. Ce processus enrichit le continuum sol-plante-microbiome en azote réactif, principalement via la nécromasse racinaire et aérienne et les exsudats racinaires, qui alimentent le réseau trophique du sol. L'introduction de légumineuses dans les rotations diversifiées constitue un pilier de l'agriculture de conservation : elle permet de réduire l'usage d'engrais azotés de synthèse tout en augmentant la teneur en matière organique du sol. La décomposition de leurs résidus, qu'ils soient laissés en surface (mulch) ou incorporés, influence le potentiel redox local et la dynamique de minéralisation. L'azote libéré est progressivement assimilé par le microbiome et rejoint le pool d'azote organique via la nécromasse — une fraction étant stabilisée dans la matière organique associée aux minéraux (MAOM), dont la formation est limitée par le C labile plutôt que par N. Sur le terrain, l'état des nodosités (couleur, abondance) renseigne sur l'efficacité de la symbiose et oriente le diagnostic agronomique. Enfin, la biomasse végétale peut être valorisée par compostage aérobie ou via des fermentations de type biostimulation indigène, modulant les communautés microbiennes (Moraine et al., 2016).
Cards en dialogue (3)
Santé du sol
On le juge à sa capacité à rester un écosystème.
Les microbes en sont le chef d'orchestre : ils dirigent les grands cycles et la structure du sol elle-même. Les plantes les nourrissent ; ils restituent les nutriments en retour. Autour des racines, l'échange est permanent.
Pour le lire : la couleur et la porosité du profil, l'enracinement, et les indicateurs vivants — vers, acariens, collemboles, respiration du sol. Les pratiques qui protègent cet habitat — sans labour, couvert permanent, rotations variées — en restaurent les fonctions.
Science
La santé du sol se définit comme la capacité d’un sol à fonctionner en tant qu’écosystème vivant (Shahane & Shivay, 2021), soutenant la productivité végétale et animale tout en assurant des services écosystémiques tels que la régulation des cycles de l’eau et des nutriments ou le stockage du carbone. Cette vision holistique dépasse la seule fertilité chimique pour intégrer les propriétés physiques, chimiques et biologiques en interaction. Le microbiome (bactéries, champignons, archées, protistes) est le chef d’orchestre des grands cycles biogéochimiques et de la structuration du sol, via les exsudats et la nécromasse microbienne qui alimentent la stabilisation organo-minérale. Le continuum sol-plante-microbiome se manifeste par des échanges rhizosphériques intenses : les plantes nourrissent les microbes par leurs rhizodépôts, et ces derniers restituent des nutriments minéralisés.
Sur le terrain, la santé du sol s’évalue par un diagnostic intégré combinant l’observation du profil cultural (couleur, porosité, enracinement) et des indicateurs biologiques : abondance des acariens, collemboles, vers de terre, respiration microbienne ou activité enzymatique. Ces indicateurs réagissent rapidement aux pratiques culturales. L’agriculture de conservation des sols (non-labour, couverture permanente, rotations diversifiées) protège l’habitat des organismes et restaure les fonctions écologiques. Le mode d’application des amendements organiques, en surface plutôt qu’incorporé par labour, préserve la faune épigée et l’activité biologique superficielle. Des amendements organiques issus de compostage aérobie ou des biostimulants indigènes, en stimulant les fonctions redox, renforcent le microbiome. Gérer la santé du sol consiste ainsi à entretenir un réseau trophique dynamique, garant d’un agrosystème résilient.
Cards en dialogue (5)
- Approfondit
- Voir aussi (4)
-
- Amendements organiques : compostage aérobie thermophile vs fermentations vs autres voies
- Soil Continuum Model (SCM) : fin du paradigme de l'humification, necromasse microbienne et fractions fonctionnelles MAOM/POM
- Biostimulants microbiens vs non-microbiens : cadre fonctionnel de la biostimulation
- Aquaponie sur sable (iAVs) : le lit de sable comme sol
Microbiome du sol
Ce n'est pas un inventaire, c'est un organisme — le microbiome du sol.
Il décompose, recycle les nutriments, fabrique la matière organique durable. Autour des racines, il échange avec la plante : il lui livre azote et phosphore, elle le nourrit de sucres et lui confie sa défense.
Les vers et les petites bêtes y bâtissent des quartiers où l'activité redouble. Mais cette connectivité a son envers : elle peut aussi faire circuler des gènes de résistance. Le microbiome est l'architecte de la fertilité — et de la santé.
Science
Le microbiome du sol désigne l’ensemble des microorganismes (bactéries, archées, champignons, virus) et leurs interactions au sein de la matrice sol, formant un réseau d'interactions dynamique plutôt qu’un simple inventaire (Yetgin, 2023). Loin d’un support inerte, le sol est un continuum biophysique où le microbiome orchestre la décomposition, le cyclage des nutriments et la formation de la matière organique associée aux minéraux. Dans le continuum sol-plante-microbiome, la rhizosphère est un point chaud : les exsudats racinaires alimentent des communautés microbiennes qui, en retour, solubilisent le phosphore, fixent l’azote ou protègent la plante via des mécanismes de défense systémique. Ce dialogue moléculaire s’inscrit dans une thermodynamique du vivant, canalisant les flux d'énergie et de matière le long de gradients redox. Ce réseau microbien est intimement lié aux ingénieurs de l’écosystème : les lombriciens sculptent la drilosphère, créant des biopores et des turricules où l’activité microbienne est exacerbée ; la mésofaune (collemboles, acariens) fragmente la litière et régule les populations fongiques, structurant des micro-habitats. Cette trame accueille des organismes aux fonctions pléiotropes, comme certains champignons à la fois entomopathogènes et endophytes, illustrant la plasticité fonctionnelle du microbiome. Cette connectivité a une face sombre : le résistome du sol, réservoir de gènes de résistance aux antibiotiques, peut être mobilisé par transfert horizontal, questionnant le continuum sol-plante-humain. Le microbiome n’est donc pas un simple compartiment, mais un architecte biogéochimique de la fertilité et de la santé des écosystèmes.
Cards en dialogue (5)
- Voir aussi (5)
-
- Biochar : architecte de sol (habitat, CEC, C stable)
- Diversité fongique dual rôle producteur/régulateur : les champignons comme acteurs ambivalents des cycles biogéochimiques
- Biostimulants microbiens vs non-microbiens : cadre fonctionnel de la biostimulation
- Core microbiome : le noyau fonctionnel de l'holobionte
- Microplastiques dans les sols : un contaminant émergent structurel
Mycorhize
C'est la mycorhize, un mariage aussi vieux que les plantes.
Le champignon explore loin, capte l'eau et le phosphore que la racine ne peut atteindre, et les livre en échange de sucres. Ses filaments collent aussi les particules de sol entre elles, le stabilisant.
Mieux : ces réseaux relient des plantes entre elles, formant des corridors de signalisation et de redistribution. La mycorhize fait de la forêt et du champ un seul organisme connecté.
Science
L'association mycorhizienne, symbiose mutualiste entre les racines des végétaux et des champignons du sol (Bonfante & Selosse, 2010 ; Genre et al., 2020), constitue une extension fonctionnelle du système racinaire. Le champignon, par son réseau mycélien, explore un volume de sol bien supérieur à celui des racines seules, prélevant l'eau et les nutriments peu mobiles — particulièrement le phosphore — et les transférant à l'hôte en échange de glucides issus de la photosynthèse (Smith & Read, 2008). Ce commerce trophique repose sur des transporteurs membranaires et une signalisation fine, orchestrant des flux bidirectionnels de ressources. Trois grands types structurent cette symbiose : les mycorhizes arbusculaires (AM) et les ectomycorhizes (ECM) — couverts par la fiche associée — et les mycorhizes éricoïdes des sols acides card #255.
Au sein du continuum sol-plante, le mycélium tisse une trame physique et métabolique continue. Les hyphes extra-racinaires s’insinuent dans les pores, adhèrent aux surfaces minérales et libèrent des exsudats (acides organiques, enzymes) qui altèrent les minéraux et mobilisent les éléments nutritifs. Ils participent activement à la formation des agrégats en liant particules minérales et matière organique, via des glycoprotéines apparentées à la glomaline, renforçant ainsi la stabilité structurale des sols. Ces processus modulent le régime redox en influant sur l'aération et la disponibilité des accepteurs d'électrons.
Le réseau mycélien commun, connectant des plantes d’espèces différentes, forme un continuum biologique inter-organismes, véritable voie de signalisation et de redistribution des ressources (Simard et al., 1997). Il sert aussi de corridor pour la dispersion de bactéries, favorisant le transfert horizontal de gènes, dont des gènes de résistance aux antimicrobiens, établissant un lien direct avec le résistome du sol. Les lombriciens, ingénieurs du sol, ingèrent les hyphes et disséminent les propagules dans leurs turricules et biopores, tandis que la mésofaune (collemboles, acariens) régule le réseau par broutage, modulant la dynamique des nutriments et l'allocation du carbone. Ces interactions multifonctionnelles inscrivent la mycorhize dans un holobionte élargi, où la plante, son microbiote rhizosphérique et les champignons co-évoluent, formant un continuum fonctionnel reliant le minéral au vivant.
Cards en dialogue (11)
- Dérive de
- Approfondi par
- Voir aussi (8)
-
- Cycle du phosphore : fixation, solubilisation biologique, mycorhizes
- Doctrines fermentaires KNF vs JADAM : matrice des oppositions de Cho Han Kyu et Cho Youngsang
- Biostimulants microbiens vs non-microbiens : cadre fonctionnel de la biostimulation
- Legacy phosphorus : le trésor enfoui des sols agricoles
- Autoroutes fongiques : dispersion bactérienne le long du réseau mycélien
- Eucalyptus × Pisolithus : la vie outrepasse la chimie du résidu minier
- Haies et bocage : infrastructure multifonctionnelle du sol vivant
- Le saule (Salix), arbre-ressource multi-services
Méthanogenèse
Cette production survient en toute fin de décomposition, une fois que l'oxygène, puis d'autres substances du sol, ont été épuisés. Elle repose sur une coopération : d'autres microbes découpent d'abord la matière organique en petits morceaux simples que les méthanogènes transforment ensuite en gaz. Ce carbone part en fumée au lieu de se stabiliser dans le sol — une perte sèche pour le stock. Le phénomène reste confiné aux zones mal aérées, comme les mottes engorgées ou les terres compactées. C'est dans les rizières inondées qu'il pèse le plus lourd.
Science
La méthanogenèse est la production biologique de méthane (CH₄) par des archées méthanogènes, en conditions d'anaérobiose stricte et à un potentiel d'oxydoréduction très bas (Eh < –200 mV). Elle constitue l'ultime étape de la décomposition de la matière organique dans les sols saturés en eau, après épuisement successif de l'oxygène, des nitrates, du manganèse(IV), du fer(III) et des sulfates (Cottes, 2019). Ce processus, tributaire d'une succession thermodynamique, repose sur des substrats simples (hydrogène, acétate, méthanol) issus de l'activité des micro-organismes fermentaires et syntrophes ; sans cette coopération, la dégradation des polymères végétaux serait bloquée en milieu anoxique.
Dans le continuum sol-plante-microbiome, la méthanogenèse intervient comme un maillon critique du cycle du carbone, transformant les produits de la rhizodéposition et des résidus de culture en un puissant gaz à effet de serre. Elle entre en compétition directe avec les voies de stabilisation organo-minérale, car le carbone minéralisé en CH₄ ne peut plus participer à la formation de matière organique associée aux minéraux (MAOM). Son activité est spatialement hétérogène, confinée aux microsites anoxiques (agrégats engorgés, zones compactées) et temporellement liée aux fluctuations de la nappe phréatique. Elle influence également les cycles de l'azote et du phosphore en libérant des formes réduites solubles et en modifiant le pH local.
La compréhension de la méthanogenèse est essentielle pour modéliser les bilans de carbone des agrosystèmes, notamment dans les rizières où les émissions de méthane représentent une part majeure du forçage radiatif anthropique. Sa gestion repose sur la maîtrise des conditions d'oxydoréduction via l'irrigation et le travail du sol.
Cards en dialogue (6)
- Dérive de
Symbiose
Deux grands exemples : le champignon qui offre du phosphore contre du sucre, et la bactérie qui offre de l'azote en échange d'un gîte dans les racines. Des échanges réglés par de fins signaux chimiques.
Ces alliances ne font pas que nourrir la plante : leurs filaments et leurs restes bâtissent la structure même du sol. La symbiose n'est pas un simple accord bilatéral — c'est une brique de l'édifice souterrain.
Science
La symbiose désigne une association intime et durable entre organismes d’espèces différentes, dont les bénéfices réciproques transcendent la simple coopération pour structurer le continuum sol-plante-microbiome. Elle incarne un principe fondamental de l’holobionte : l’extension du phénotype de la plante via l’intégration fonctionnelle de partenaires microbiens. Dans le sol, deux symbioses majeures illustrent ce rôle de pivot biogéochimique. D’une part, la symbiose mycorhizienne à arbuscules (MA) permet l’exploration d’un volume de sol inaccessible aux racines grâce au réseau mycélien ; en contrepartie de sucres issus de la photosynthèse, le champignon fournit du phosphore et d’autres nutriments minéraux, agissant comme une interface redox active où la dissolution des minéraux est couplée à la respiration microbienne. D’autre part, la symbiose rhizobienne permet la fixation biologique de l’azote atmosphérique au sein de nodules racinaires, convertissant le diazote en ammonium assimilable. Ces échanges, régulés par des signaux moléculaires (flavonoïdes, facteurs Nod, Myc), ancrent la plante dans un réseau d’interactions qui façonne la rhizosphère. Au-delà du bénéfice nutritionnel immédiat, la symbiose est un moteur de la stabilisation organo-minérale : les hyphes et les exsudats symbiotiques favorisent l’agrégation du sol, tandis que la nécromasse microbienne alimente le pool de matière organique associée aux minéraux (MAOM). Ainsi, la symbiose ne se limite pas à un échange bilatéral ; elle s’insère dans la toile trophique et participe à la construction de l’architecture du sol, en interaction étroite avec la mésofaune et les ingénieurs de la drilosphère. (Kuyper & Jansa, 2023; Lemanceau et al., 2017; Smith & Read, 2008)
Cards en dialogue (8)
- Illustration de
- Approfondit
- Voir aussi (5)
-
- Lombriciens : catégories écologiques, drilosphère, turricules, biopores et interactions racines
- Endophytes ubiquitaires et potentiel pathogène latent
- Co-inoculation Bradyrhizobium + Azospirillum : synergie physiologique au-delà de la FBN
- Microbiome de la graine : transmission verticale et héritage fonctionnel
- Symbiose Azolla-Anabaena
Décomposition
Les petits animaux la découpent en morceaux, puis les bactéries et les champignons la dissolvent grâce à des enzymes, des ciseaux chimiques qui tranchent les grosses molécules. Une partie du carbone est respirée et repart en CO2 dans l'air ; le reste nourrit les microbes puis, à leur mort, se fixe durablement aux particules du sol. La vitesse de ce travail dépend de ce qu'on lui donne à manger (une matière riche en azote se décompose plus vite qu'une paille coriace), de la chaleur, de l'humidité et de l'aération du sol. En sol saturé d'eau, tout ralentit et dégage même du méthane. C'est cette décomposition qui rend au sol sa fertilité.
Science
La décomposition désigne l’ensemble des processus biotiques et abiotiques de dégradation et transformation de la matière organique morte (résidus végétaux, cadavres animaux, exsudats racinaires) sous l’action des organismes du sol (Pellerin et al., 2021). Elle constitue un maillon central du cycle du carbone et du recyclage des nutriments (azote, phosphore, soufre). Les détritivores (faune épigée et endogée) fragmentent mécaniquement les substrats, augmentant leur surface accessible, tandis que les micro-organismes (bactéries, champignons) libèrent des enzymes extracellulaires qui hydrolysent les polymères complexes (cellulose, lignine, protéines) en monomères assimilables. Cette activité métabolique conduit à la minéralisation : une partie du carbone est respirée sous forme de CO₂, tandis que les éléments minéraux (NH₄⁺, PO₄³⁻) sont libérés dans la solution du sol et deviennent disponibles pour les plantes et le microbiome. La fraction du carbone non minéralisée est principalement incorporée dans la nécromasse microbienne et peut être stabilisée à long terme par association avec les surfaces minérales, formant la matière organique associée aux minéraux (MAOM). L’intensité de la décomposition dépend de la qualité chimique des litières (rapport C/N, teneur en lignine), des conditions pédoclimatiques (température, humidité, potentiel redox), et de la structure du sol (agrégation, porosité). En contexte anaérobie, la minéralisation est ralentie et produit des composés réduits (méthane, acides organiques). La décomposition est donc un régulateur clé de la fertilité des sols et de la séquestration du carbone. Elle interagit avec les grands cycles biogéochimiques : la minéralisation de l’azote organique alimente la nitrification, le phosphore organique libéré rejoint le pool adsorbé ou est prélevé par les mycorhizes, et le CO₂ émis peut précipiter sous forme de carbonates pédogéniques en milieu calcaire. Les modèles de dynamique du carbone (type AMG) intègrent la décomposition comme un flux de sortie proportionnel au stock de carbone organique, modulé par la stœchiométrie CNPS et les conditions environnementales.
Cards en dialogue (3)
Diversité microbienne
Chaque espèce a ses talents, mais plusieurs savent souvent faire le même travail : cette redondance est une assurance. Si l'une disparaît, une autre prend le relais, et les cycles du sol continuent de tourner.
Les vers, les petites bêtes et les exsudats des racines entretiennent cette diversité en multipliant les refuges. Mais la circulation des gènes a aussi sa face d'ombre : elle peut répandre des résistances. Un trésor à protéger, avec lucidité.
Science
La diversité microbienne du sol recouvre la variété et l'abondance des bactéries, archées, champignons et protistes qui colonisent les microhabitats édaphiques. Elle se décline en diversité taxonomique (richesse en espèces) et fonctionnelle (gamme de capacités métaboliques), deux dimensions souvent corrélées mais non redondantes (Fierer, 2017). Dans le continuum sol-plante-microbiome, les flux de matière organique particulaire (POM) et l'association organo-minérale (MAOM), stabilisant les nécromasses microbiennes selon Lehmann & Kleber (2015), façonnent cette diversité. Les ingénieurs du sol — lombriciens (turricules, biopores) et mésofaune (collemboles, acariens) — créent des hot-spots qui favorisent la diversification microbienne. La rhizosphère, par ses exsudats, recrute des guildes bénéfiques pour la nutrition et la protection végétales. La redondance fonctionnelle, où plusieurs taxons assurent une même fonction, confère une résilience aux cycles biogéochimiques (Nannipieri et al., 2003). Cependant, le transfert horizontal de gènes peut disséminer des gènes de résistance aux antibiotiques, alimentant un résistome diffus (Allen et al., 2010). Certains micro-organismes, comme les champignons entomopathogènes endophytes (CEP), illustrent la plasticité écologique au sein de l'holobionte sol. Ainsi, la diversité microbienne sous-tend un réseau d'échanges reliant la santé des sols, des plantes et des humains.
Cards en dialogue (4)
- Voir aussi (4)
-
- Lombriciens : catégories écologiques, drilosphère, turricules, biopores et interactions racines
- Bio-indication précoce du microbiome (métabarcoding multi-marqueurs) : détection des dégradations avant manifestation visuelle
- Carbon Use Efficiency (CUE) microbienne : l'arbitrage stockage / respiration
- Core microbiome : le noyau fonctionnel de l'holobionte
Mère de vinaigre
Ces bactéries transforment l'alcool en vinaigre, abritées dans un film de cellulose. Au jardin, cet acide dissout les minéraux verrouillés du sol, et le film lui-même devient une nourriture lente pour les champignons.
C'est un ferment de toujours que la science du sol relit comme un vrai partenariat vivant — le même principe que pratiquent depuis longtemps les écoles d'agriculture naturelle.
Science
La mère de vinaigre désigne un biofilm cellulosique élaboré par des bactéries acétiques (genres Acetobacter, Gluconobacter) à l’interface d’une fermentation alcoolique exposée à l’air (Tonouchi, 2016). Cette structure gluante maintient les cellules bactériennes dans une matrice extracellulaire riche en cellulose, à un niveau d’oxygénation optimal pour l’oxydation de l’éthanol en acide acétique. Plus qu’un simple inoculum traditionnel, la mère de vinaigre incarne un holobionte fermentaire où la coopération microbienne assure la transformation des substrats carbonés.
Dans le continuum sol-plante-microbiome, la mère de vinaigre peut être utilisée comme levain microbien pour catalyser les processus de fermentation oxydative lors de la préparation d’amendements liquides fermentés. L’acide acétique produit agit alors comme biostimulant acide : il participe à la solubilisation de minéraux (phosphore, calcium), module le potentiel redox et influence la composition des communautés microbiennes indigènes. La cellulose du biofilm, enfouie ou appliquée en surface, devient un substrat carboné lentement dégradable pour les champignons et bactéries cellulolytiques du sol, contribuant à la formation de matière organique associée aux minéraux (MAOM).
Cette pratique trouve un écho dans les préparations fermentaires de l’agriculture naturelle (KNF), où l’acide acétique facilite l’extraction de principes actifs végétaux, et dans le diagnostic terrain intégré qui évalue l’équilibre redox du sol. À l’instar d’un compostage aérobie thermophile, l’activité des bactéries acétiques exige une interface oxique-anoxique : une application superficielle sur sol vivant ou sur couverture végétale permanente imite ce gradient, favorisant une transformation progressive des composés organiques. La mère de vinaigre illustre ainsi comment un consortium microbien naturel peut être domestiqué pour intensifier les boucles de recyclage des nutriments dans les agroécosystèmes.
Cards en dialogue (3)
Biofilms microbiens : architecture EPS et théâtre des cycles
Collées aux racines, aux mottes de terre et aux filaments des champignons, ces communautés sont noyées dans un gel de mucilages qu'elles sécrètent elles-mêmes. Cette vie en groupe les protège des agressions et leur permet de se répartir le travail : certains décomposent la matière, d'autres fixent l'azote, d'autres encore dissolvent le phosphore ou tiennent les maladies à distance. Le biofilm n'est pas qu'un abri : c'est une fine membrane vivante entre l'extérieur du sol, où circule l'oxygène, et l'intérieur des mottes, qui en est privé. Les deux côtés échangent des signaux chimiques à travers cette interface, comme une conversation entre le sol aéré et le sol sans air.
Science
Les biofilms sont la forme de vie dominante des micro-organismes du sol : communautés adhérentes enchâssées dans une matrice d'exopolymères (EPS, ou mucilages microbiens), coordonnées par le quorum sensing. Ils constituent le théâtre physique des cycles biogéochimiques (C, N, P, S) et l'interface privilégiée des échanges sol↔plante.
Contrairement aux cellules planctoniques (libres), la vie en biofilm confère protection (barrière EPS, résistance aux stress, résistome), division du travail métabolique et mémoire collective. La rhizosphère, les agrégats stables, les hyphes fongiques et les surfaces racinaires sont autant de supports où les biofilms orchestrent la minéralisation, la fixation d'azote, la solubilisation du phosphore et la suppression des pathogènes.
Card pivot reliant la structure du sol (#32), la communication quorum sensing (#75), le résistome (#57) et la glomaline (#100) — le biofilm est le niveau d'organisation où la communauté microbienne devient fonctionnelle.
Synthèse — le biofilm du microagrégat comme membrane de communication redox. Au-delà de son rôle d'abri, le biofilm qui enrobe le microagrégat anaérobie (→ terme #380) fonctionne comme une interface sélective entre la macroporosité oxique et le cœur anoxique : l'activité extérieure (rhizosphère, ferments, racines) module le métabolisme du cœur, et réciproquement. Cinq canaux candidats, présentés par gradient de preuve décroissant : (1) Établi — les microsites anoxiques au sein d'agrégats oxiques (Sexstone et al., 1985 #1629) et la syntrophie métabolique (→ terme #2294) : les produits de fermentation externes (lactate, acétate) diffusent à travers le biofilm et alimentent dénitrifiants, ferriféducteurs et méthanogènes du cœur ; (2) Probable — les navettes électroniques (→ terme #903 : matière organique dissoute réactive — ex-« substances humiques » —, phénazines, quinones) réalisant le transfert d'électrons extracellulaire (#1962) à travers l'interface — preuves solides mais largement in vitro ou sédimentaires, à confirmer en sol cultivé ; (3) Spéculatif — les nanofils microbiens et bactéries câbles (#4153, DIET #4543) en sols agricoles, et le quorum sensing (#883) comme modulation trans-interface en sol non contaminé — angles morts assumés de la littérature (veille 2026-07-23). Point de convergence : les hyphes pénétrantes (→ card #248, autoroutes fongiques) offrent le seul canal filaire franchissant physiquement l'interface. Cette lecture fait du biofilm un organe de communication redox plutôt qu'une simple barrière — pendant micro (échelle agrégat) du dialogue rhizosphère↔sol.
→ fiche #264 (microsite anoxique comme refuge), card #119 (microzones anoxiques).
Cards en dialogue (7)
- Approfondit
- Voir aussi (5)
-
- Structure du sol (agrégats/EPS) → habitats → stabilité/résilience
- Résistome et transfert horizontal : la face sombre du continuum
- Quorum sensing dans la rhizosphère : communication bactérienne, perception végétale, biofilms
- Glomaline : glycoprotéine fongique et stockage C profond
- Bactéries câbles : l'électricité longue distance du sol
Phytohormones : le langage moléculaire de la plante
Un réseau de messagers qui se répondent, pas des boutons isolés.
Deux d'entre elles arbitrent la défense selon l'ennemi ; d'autres règlent la soif, l'architecture des racines, ou appellent les champignons alliés. La plante lit son monde à travers ces signaux.
Certaines molécules issues de la fumée y sont rattachées, sans que leur statut d'hormone fasse consensus. Ce langage est la cible des stratégies qui pilotent la plante en douceur — la clé de voûte du dialogue entre le sol et la plante.
Science
Les phytohormones — auxines, gibbérellines, cytokinines, acide salicylique (SA), jasmonate (JA), acide abscissique (ABA), éthylène, strigolactones (SL), karrikines (molécules issues de la fumée, à activité hormonale — statut de phytohormone débattu) — forment le langage moléculaire par lequel la plante perçoit son environnement, orchestre son développement et dialogue avec son microbiome.
Elles fonctionnent en réseau (cross-talk), pas en isolation : la balance JA/SA discrimine les défenses contre biotrophes (voie SA) et contre nécrotrophes et insectes (voie JA/éthylène) (cf. ISR #199 et SAR #202) ; les strigolactones (#88) signalent à la fois l'architecture racinaire et le recrutement mycorhizien ; l'ABA orchestre la réponse au stress hydrique. Ce sont les hub de signalisation du continuum sol↔plante↔microbiome, et les cibles des stratégies de trophobiose (#161) et de cry-for-help (#70).
Card cadre intégrant les hormones spécifiques (SL #88 comme exemple paradigmatique) dans la logique commune de la signalisation végétale.
Cards en dialogue (10)
- Voir aussi (8)
-
- M genes : la plante orchestre son microbiome
- Cry-for-help : recrutement stress-induit du microbiome
- Immunité nutritionnelle : forme d'azote (NH₄⁺/NO₃⁻) → protéosynthèse → signalisation JA-SA
- Résistance systémique induite
- Résistance systémique acquise
- Trophobiose (Chaboussou) : la plante nourrie attire son ravageur
- Le saule (Salix), arbre-ressource multi-services
- Les 4 stades culturaux à dominance hormonale
Microbiome de la graine : transmission verticale et héritage fonctionnel
Sa mère lui transmet un héritage de microbes qui l'aidera à démarrer. Le premier microbiome d'une plante, c'est un legs.
Ce cortège améliore la germination, prépare les défenses de la plantule, et peut fixer l'azote ou débloquer le phosphore. La plantule ne part pas de zéro : elle commence avec l'équipe que sa mère lui a confiée.
Hélas, nos variétés cultivées ont perdu une part de cette richesse ancestrale, que les cousines sauvages conservent mieux. Réensemencer les graines devient une piste pour restaurer ce qu'on a oublié.
Science
La graine n'est pas stérile : elle transmet verticalement un consortium microbien (bactéries endophytes + champignons) qui influence la germination, la croissance précoce et la résilience de la plantule. Ce microbiome seed-borne est acquis par deux voies complémentaires : (1) transmission verticale depuis la plante mère (systémique, via le phloème et les ovules), et (2) transmission horizontale depuis l'environnement (sol, air, carpopore).
Héritage fonctionnel : le microbiome de la graine prime la réponse immunitaire du plantule (ISR), fixe l'azote atmosphérique (Azospirillum, Bacillus), et solubilise le phosphore. C'est un bootloader écologique — le premier microbiome que la plantule rencontre est celui que sa mère lui a légué, pas celui du sol.
Érosion domestiquée : les cultivars modernes ont perdu une partie de cette diversité microbienne ancestrale. Les wild relatives (espèces sauvages apparentées) conservent un microbiome seed-borne plus riche — source potentielle de rediversification. L'ingénierie du seed microbiome (inoculation ciblée des semences) émerge comme levier de restauration.
Cards en dialogue (5)
- Approfondit
Shunt viral du sol : les phages comme moteur du cycle du carbone
Ce massacre invisible n'est pas une perte : en libérant le contenu des bactéries mortes, il nourrit directement le stock de matière organique stable du sol, sans passer par la chaîne alimentaire classique des prédateurs. Le carbone des bactéries est ainsi recyclé sur place, et leurs restes — tout comme ceux des virus eux-mêmes — peuvent se fixer durablement aux particules du sol. Ce raccourci viral est encore mal chiffré, mais il change la donne : un sol riche en virus pourrait stocker plus de carbone qu'on ne le pense, et les modèles qui l'ignorent sous-estiment cette séquestration.
Science
Les phages du sol lysent 20-40 % des bactéries quotidiennement, libérant carbone et nutriments dans la matière organique dissoute (DOM). Ce shunt viral redirige le carbone bactérien vers la nécromasse microbienne, contournant le réseau trophique classique — la matière organique associée aux minéraux (MAOM) est ainsi alimentée par la lyse virale, pas seulement par la prédation.
Preuve directe (Barnett & Buckley 2023, Environ. Microbiol., 25 citations) : par SIP-métagénomique (¹³C), un bactériophage a été tracé assimilant le carbone issu de son hôte Streptomyces — premier lien expérimental phage → cycle du carbone du sol. L'assimilation du ¹³C par le phage confirme que les virus sont des acteurs biogéochimiques, pas seulement des agents de mortalité.
Stabilisation du carbone : la nécromasse virale (capsides protéiques, ADN) pourrait elle-même être récalcitrante et contribuer au pool MAOM (hypothèse émergente, contribution encore mal quantifiée). Les modèles de cycle du C qui ignorent le shunt viral sous-estiment la séquestration. Le shunt viral connecte le virome édaphique au cycle du carbone global.
Cards en dialogue (5)
- Voir aussi (4)
-
- Cycle du carbone : de la photosynthèse à la MAOM
- Phages et transduction des ARG : réservoir silencieux du résistome
- Boucle microbienne du sol : protozoaires, paradoxe fonctionnel et minéralisation pilotée
- Soil Continuum Model (SCM) : fin du paradigme de l'humification, necromasse microbienne et fractions fonctionnelles MAOM/POM
Core microbiome : le noyau fonctionnel de l'holobionte
Ce noyau rassemble les microbes présents dans la grande majorité des échantillons, par opposition aux passagers de passage. Il porte les fonctions essentielles de l'holobionte (la plante et ses microbes) : nourrir, fabriquer des hormones, défendre contre maladies et sécheresse. Il se décline selon les zones : racines, feuilles, intérieur des tissus, et jusqu'à la graine qui le transmet à la génération suivante. Sa force tient à la redondance : si un membre clé disparaît, un autre du noyau assure la même fonction. En pratique : sélectionner des variétés qui recrutent un noyau plus riche.
Science
Le core microbiome (ou microbiome cœur) désigne l'ensemble des taxons microbiens persistants et ubiquitaires associés à un hôte ou à un habitat, par opposition aux taxons transitoires ou conditionnels. Sa définition est statistique — les taxons présents dans une proportion significative des échantillons (typiquement ≥50-70%) — mais sa signification écologique est profondément fonctionnelle : le core porte les fonctions essentielles de l'holobionte — nutrition minérale (fixation d'azote, solubilisation du phosphore), synthèse de phytohormones, résistance aux stress biotiques (antagonisme, induction SAR/ISR) et abiotiques (osmorégulation, chélation).
Le concept s'applique à toutes les niches du continuum sol-plante : core rhizosphérique, core phyllosphérique, core endosphérique, et core de la graine (transmission verticale). Il complète et enrichit le concept d'holobionte en distinguant le « noyau dur » fonctionnellement structurant du « bruit » stochastique. La distinction core/transitoire est dynamique : un taxon conditionnel peut être recruté dans le core en réponse à un stress (cry-for-help, l'appel à l'aide), puis être éliminé lorsque la pression sélective cesse.
La redondance fonctionnelle au sein du core garantit la résilience de l'holobionte : si un taxon clé est éliminé (stress, perturbation), un autre taxon du core portant la même fonction peut le remplacer. Cette redondance est la signature d'une sélection stabilisatrice opérée par l'hôte via ses exsudats racinaires et ses gènes M (management du microbiome). Le core microbiome n'est donc pas une simple liste d'espèces, mais une architecture fonctionnelle coévolutive entre la plante et ses microorganismes.
En pratique agronomique, identifier et manipuler le core microbiome ouvre la voie à des stratégies de sélection variétale pour la santé : choisir des cultivars qui recrutent un core plus diversifié et plus fonctionnel. C'est le prolongement opérationnel du concept d'holobionte appliqué à l'amélioration des plantes.
Cards en dialogue (5)
- Approfondit
Coalescence microbienne : quand les communautés se mélangent
La coalescence, c'est la rencontre de deux communautés microbiennes dont le mélange n'est pas une simple addition : passage du sol vers la plante, compost, inoculation. Trois facteurs décident du résultat : le rapport de nombre, l'état des communautés (actives ou dormantes), et leurs interactions. La coalescence est rarement symétrique : la communauté du sol, plus nombreuse et diverse, domine souvent. Voilà pourquoi les inoculants échouent souvent en champ : le sol résident filtre les souches introduites. Plutôt que d'injecter des souches isolées, mieux vaut concevoir des mélanges qui s'accordent avec le microbiome résident.
Science
La coalescence microbienne est le processus écologique par lequel deux ou plusieurs communautés microbiennes distinctes se rencontrent, se mélangent, et génèrent une nouvelle communauté dont la composition et la fonction ne sont pas prédictibles par la simple addition des partenaires. Ce phénomène, omniprésent en agroécologie, est le mécanisme fondamental derrière le transfert de microbiome sol→plante, l'apport d'amendements organiques, l'inoculation biologique, et l'ingestion par la mésofaune.
Le résultat d'une coalescence dépend de trois facteurs structurants : (1) le ratio d'abondance entre les communautés entrantes, (2) leur condition physiologique (cellules actives vs dormantes, issues de la banque de semences microbienne), et (3) les interactions biotiques (compétition, prédation par protozoaires/phages, coopération). Les travaux récents (Liu & Salles 2024, ISME J ; Romdhane et al. 2024) montrent que la coalescence est rarement symétrique : la communauté issue du sol, plus abondante et plus diverse, domine souvent la communauté entrante, créant une asymétrie qui filtre les taxons inoculés.
Ce concept explique pourquoi les inoculants microbiens (biostimulants, biofertilisants) échouent souvent en plein champ : la communauté résidente (le sol résident) exerce un filtre biotique puissant qui élimine la plupart des souches introduites. Seuls les taxons capables de s'insérer dans le continuum ami-ennemi microbien — c'est-à-dire de trouver leur niche fonctionnelle sans déclencher de réponse immunitaire ou compétitive excessive — parviennent à s'établir. La coalescence asymétrique sol vs amendement est aussi le mécanisme du transfert de résistome (Wen et al. 2024, Microbiol Res).
Comprendre la coalescence est crucial pour l'ingénierie des communautés microbiennes (SynComs) : plutôt que d'injecter des souches isolées, il faut concevoir des consortiums qui « coalescent » harmonieusement avec le microbiome résident. C'est le pont entre l'écologie fondamentale et la pratique de l'inoculation.
Caveat (audit 2026-08-02) : l'inférence coalescence→transfert horizontal de gènes via les points chauds de biofilms (card #232) reste non sourcée directement ; le lien coalescence→résistome est, lui, sourcé (Wen et al. 2024).
Cards en dialogue (5)
N₂O : émissions agricoles, mécanismes et mitigation
Au lieu de le décomposer en azote inoffensif, ils le laissent s'échapper : l'engrais azoté part en fumée sous une forme nocive pour le climat et la couche d'ozone. Les sols labourés, tassés et sur-fertilisés cumulent les conditions qui favorisent cette fuite. Les pistes pour l'éviter se combinent : aérer le sol, ne pas le compacter, apporter l'azote au bon moment, ou s'appuyer sur des plantes qui ralentissent naturellement cette transformation. Mais attention : enrichir le sol en carbone peut, dans certains cas, augmenter cette fuite — le bénéfice climatique n'est jamais automatique.
Science
Le protoxyde d'azote (N₂O) est le troisième gaz à effet de serre anthropique majeur, avec un potentiel de réchauffement global (GWP) 265 fois supérieur au CO₂ sur 100 ans (Myhre et al., 2014). C'est aussi le principal destructeur stratosphérique d'ozone. L'agriculture en est la source anthropique dominante, via deux voies microbiennes principales : la dénitrification (réduction de NO₃⁻ → NO₂⁻ → NO → N₂O → N₂) et, dans une moindre mesure, la nitrification (oxydation de NH₄⁺ → NO₂⁻).
Le N₂O est un produit intermédiaire de la dénitrification — son accumulation dans l'atmosphère résulte d'un découplage entre sa production et sa réduction en N₂ (gaz inerte). Ce découplage se produit dans les conditions où l'enzyme N₂O-réductase (NosZ) est inhibée : déficit en oxygène (sol saturé, compaction), pH acide (la NosZ est pH-sensible), basses températures, et disponibilité en carbone labile (DOC). Les sols agricoles labourés, fertilisés et compactés cumulent ces conditions : ils sont des hotspots d'émission.
Les stratégies de mitigation sont multiples et synergiques :
- Agriculture de conservation (ACS) : le non-labour favorise la macroporosité (biopores de vers et racines) et une structure aérée qui limite la dénitrification — l'effet net sur N₂O reste néanmoins débattu (compaction de surface transitoire possible). Les couverts végétaux capturent l'azote minéral résiduel.
- Inhibiteurs de nitrification (ex. DCD, DMPP) : retardent la conversion NH₄⁺→NO₃⁻, réduisant le substrat de la dénitrification.
- Synchronisation N : appliquer l'azote au moment précis de la demande culturale minimise les excès minéraux.
- BNI (Biological Nitrification Inhibition) : certaines plantes (Brachiaria, sorgho) produisent des exsudats qui inhibent naturellement la nitrification.
- Gestion de l'eau : éviter les cycles saturation-drainage qui créent des pulses d'émission (effet Birch pour le carbone, analogue pour l'azote).
Le défi est que les stratégies de séquestration du carbone (augmentation de la MO) peuvent augmenter les émissions de N₂O si la disponibilité en carbone labile alimente la dénitrification. Le co-bénéfice climatique n'est donc pas automatique — il nécessite une gestion intégrée du couple C/N et de la structure du sol.
Le puits oublié : nosZ clade II. Ce cadre « émettre moins » a son pendant symétrique : faire consommer plus. Le clade II de nosZ — réducteurs de N₂O souvent non-dénitrifiants, à haute affinité — peut faire basculer ponctuellement un sol de source à puits net de N₂O, sous contrôle de l'humidité, du carbone et des pratiques (couverture, non-labour, rotations diversifiées). La manipulabilité au champ reste à prouver, mais l'indicateur cible change : non plus seulement le flux émis, mais le ratio N₂O/(N₂O+N₂). Développement complet : fiche #296.
Cards en dialogue (6)
- Approfondi par
- Voir aussi (5)
-
- Redox central : gradients, microzones et 'redox ladder'
- Profil sol hydromorphe/organique : redox bas, émissions, gestion de l'eau centrale
- Azote (formes, pertes) → stœchiométrie → stratégies microbiennes
- Cycle de l'azote : fixation, minéralisation, nitrification, pertes
- AOA, AOB et comammox : les trois guildes nitrifiantes, partage de niche et implications agronomiques
Legacy phosphorus : le trésor enfoui des sols agricoles
Ce phosphore hérité dort sous plusieurs formes : une part directement disponible, une part accrochée aux particules du sol, une part solidement enfermée. Pour le réveiller, le sol a ses alliés : les racines qui acidifient leur entourage, des bactéries capables de dissoudre le phosphore, et surtout les champignons associés aux racines, qui vont le chercher là où la plante n'atteint pas. Concrètement, exploiter cette réserve suppose de lever le pied sur les engrais pendant quelques années, de favoriser ces champignons et ces bactéries, et d'ajuster l'acidité du sol. C'est un levier d'autonomie face à la rareté des gisements miniers.
Science
Le legacy phosphorus (phosphore résiduel hérité) désigne le phosphore accumulé dans les sols agricoles par décennies de fertilisation minérale et organique. Ce pool, largement sous-estimé par les méthodes d'extraction conventionnelles (Olsen, Bray), représente un stock stratégique pour l'autonomie phosphatée des fermes.
Historiquement, l'agriculture intensive a appliqué des excès de P (sur la base du « principes des barrages » : saturer le sol en P pour maximiser la disponibilité), créant un déficit minier (extraction des gisements de phosphate) couplé à une accumulation pédologique. Le legacy P existe sous trois fractions : (1) le P labile (échangeable, mesuré par Olsen), (2) le P modérément labile (adsorbé sur oxyhydroxydes de Fe/Al, Ca-phosphates), et (3) le P stable (occlus, précipité, organique récalcitrant).
La remobilisation du legacy P est un levier d'autonomie. Elle dépend de trois mécanismes : (1) l'acidification rhizosphérique (exsudation de protons et d'acides organiques — oxalate, citrate), (2) l'activité des bactéries solubilisatrices de phosphore (PSB) qui minéralisent le P organique et dissolvent les phosphates inorganiques, et (3) les mycorhizes (hyphes explorant un volume de sol inaccessible aux racines). La voie mycorhizienne peut dominer l'approvisionnement en P de la plante, jusqu'à la quasi-totalité du phosphore absorbé (Smith et al., 2003, 2004).
En pratique, exploiter le legacy P implique : arrêter la fertilisation P pendant plusieurs années (mining biologique), maximiser la mycorhization (ACS, couverts, strigolactones), inoculer si nécessaire des PSB, et ajuster le pH (sol calcaire : P bloqué sous forme de Ca-phosphates ; sol acide : P adsorbé sur Fe/Al-oxydes). Le concept de legacy P est central pour la transition agroécologique : il permet de découpler la productivité de l'apport d'engrais minier.
Cards en dialogue (5)
Assemblage des communautés : sélection, dispersion, dérive
L'assemblage décrit la construction des communautés microbiennes sous quatre forces : le tri par le milieu, le tri par les interactions, l'arrivée de nouveaux venus, et le hasard dans les petites populations. Deux visions s'opposent : le milieu décide qui gagne, ou bien l'histoire et le hasard. En réalité, un continuum : les sols extrêmes suivent le tri du milieu, les sols modérés le hasard. Le microbiome cœur en découle : les microbes qui passent le filtre et reviennent régulièrement. En pratique : injecter une souche ne suffit pas si le milieu et la communauté résidente ne l'acceptent pas.
Science
L'assemblage des communautés microbiennes est le cadre théorique qui décrit comment les communautés microbiennes se construisent au fil du temps sous l'action de quatre processus écologiques fondamentaux : (1) la sélection environnementale (filtre abiotique : pH, humidité, oxygène), (2) la sélection biotique (compétition, prédation, coopération, détection du quorum), (3) la dispersion (arrivée de nouveaux taxons), et (4) la dérive (fluctuations stochastiques dans les petites populations).
Ce cadre oppose traditionnellement deux visions : les processus déterministes (sélection : « qui gagne » est prédictible par les conditions environnementales) et les processus stochastiques (dispersion et dérive : « qui gagne » dépend du hasard historique). En microbiologie du sol, la réalité est un continuum : les sols extrêmes (pH acide, salinité) sont dominés par la sélection abiotique, tandis que les sols modérés sont plus sensibles à la dispersion et à l'histoire.
Le concept de core microbiome émerge directement de ce cadre : les taxons du core sont ceux qui passent avec succès le filtre de sélection (déterministe) et sont suffisamment dispersés (stochastique) pour apparaître de manière récurrente. À l'inverse, les taxons transitoires sont ceux qui n'ont pas encore été filtrés ou qui sont éliminés par la compétition.
En pratique agronomique, l'assemblage explique pourquoi les communautés microbiennes du sol sont difficiles à manipuler : injecter une souche (dispersion) ne suffit pas si les conditions environnementales et la communauté résidente (sélection biotique) ne sont pas favorables. C'est la base de l'échec des inoculants et de la coalescence asymétrique. Le cadre de l'assemblage guide aussi les stratégies de restauration : modifier d'abord le filtre abiotique (pH, structure), puis laisser la dispersion et la sélection naturelle reconstruire la communauté.
Approfondissement : la fiche #301 déploie le concept en détail.
Cards en dialogue (3)
Microplastiques dans les sols : un contaminant émergent structurel
Ils arrivent surtout par les composts et les boues qu'on épand.
Ces particules altèrent la circulation de l'eau dans le sol, portent un microbiome à part — dont des pathogènes potentiels — et leurs additifs perturbent les vers de terre et les petites bêtes. Un contaminant qui s'infiltre jusqu'à l'assiette.
Le problème est diffus et difficile à rattraper. La prévention vaut mieux que le remède : réduire le plastique à la source et contrôler les flux de compost. Un chantier structurel, pas une panne locale.
Science
Les microplastiques (particules < 5 mm) sont devenus un contaminant émergent majeur des sols agricoles. Leur source principale n'est pas les déchets plastiques visibles, mais les amendements organiques : composts de déchets ménagers, boues d'épuration, et paillis biodégradables qui fragmentent sans se minéraliser complètement. Les boues d'épuration en contiennent 18 à 41 particules/g (médiane 34) : épandues à ~40 t/ha, elles portent les sols amendés répétitivement de 1,1 à 3,5 particules/g de sol sec selon le nombre d'applications (Corradini et al., 2019).
Les effets sur le microbiome du sol sont documentés depuis 2020 :
- Modification de la structure : les microplastiques créent des pores artificiels qui altèrent la conductivité hydraulique et la macroporosité.
- Effet « plastisphère » : les microplastiques portent un microbiome spécifique (bactéries hydrophobes, pathogènes potentiels) distinct de la communauté du sol environnant. Cette plastisphère est un vecteur de mobilité pour les gènes de résistance aux antibiotiques (ARG).
- Toxicité chimique : les additifs plastiques (phtalates, bisphénols, PFAS) sont des perturbateurs endocriniens qui affectent la mésofaune (collemboles, lombriciens) à des concentrations environnementales.
- Impact sur les lombriciens : ingestion, inflammation intestinale, réduction de la croissance, perturbation du microbiome digestif.
Le problème est structurel : le continuum sol-aliment-santé est contaminé de manière diffuse. Les microplastiques passent du sol → racine → feuille → aliment transformé. La réglementation (UE 2024 sur les boues) commence à encadrer, mais la contamination diffuse des sols agricoles est déjà effective et difficilement réversible. La prévention (réduction à la source des plastiques, compostage à flux maîtrisé) est plus efficace que la remédiation.
Zoom dédié sur le biofilm des microplastiques (plasticosphère) et son pont vers les mycorhizes : fiche #303. Voisin contaminant : card #254 PFAS.
Cards en dialogue (3)
BNI : quand la plante freine sa propre nitrification
Normalement, les microbes transforment l'azote en une forme très mobile qui se lessive facilement ; certaines graminées tropicales sécrètent par leurs racines des substances qui ralentissent cette transformation, gardant ainsi l'azote sous une forme stable, plus difficile à perdre — un avantage dans les milieux pauvres en azote. Cette astuce naturelle intéresse l'agriculture : la transférer aux grandes cultures réduirait les pertes d'azote et les émissions de gaz à effet de serre, sans recourir aux inhibiteurs chimiques. La prudence reste toutefois de mise : nourrir une plante uniquement sous cette forme peut, à l'échelle de la plante, affaiblir ses défenses face aux maladies.
Science
Le BNI (Biological Nitrification Inhibition), ou inhibition biologique de la nitrification, est la capacité de certaines plantes à produire et libérer via leurs exsudats racinaires des composés qui inhibent sélectivement les bactéries et archées nitrifiantes (AOA, AOB, comammox).
La nitrification (oxydation de NH₄⁺ → NO₃⁻) est un processus à double tranchant : le nitrate est directement assimilable par les plantes, mais il est aussi lessivable, dénitrifié (→ N₂O), et sa production consomme de l'énergie microbienne. En inhibant la nitrification, la plante maintient l'azote sous forme ammoniacale (NH₄⁺), qui est moins mobile, moins sujet au lessivage, et qui nécessite moins d'énergie pour être assimilée. C'est un avantage sélectif dans les écosystèmes pauvres en azote — à l'échelle du sol et du climat. Caveat immunité/dose : ce bénéfice forme-spécifique n'est pas absolu. Une nutrition majoritairement ammoniacale peut, à l'échelle de la plante, atténuer les signaux de résistance (NO, acide salicylique) et accroître la susceptibilité aux bioagresseurs card #161. Le BNI reste un levier de mitigation N2O/lessivage, mais sa traduction agronomique doit être pondérée par le ratio NH4+/NO3- et le niveau absolu d'intrants azotés du système (Xie et al., 2023 : fiche #296).
Le BNI a été caractérisé principalement chez les graminées tropicales (Brachiaria spp., sorgho) par l'équipe de Subbarao (JIRCAS, Japon). Les composés inhibiteurs identifiés comprennent la sorgoléone (sorgho — quinone lipophile racinaire, distincte de la sorgolactone, strigolactone), les brachialactones (Brachiaria), et des composés phénoliques. La production est stimulée par la présence de NH₄⁺ dans la rhizosphère — un rétrocontrôle écologique.
L'enjeu agronomique est d'introduire le BNI dans les cultures de rente tempérées (blé, maïs) par sélection variétale ou transfert génétique depuis les graminées tropicales. Les variétés BNI réduiraient drastiquement les pertes d'azote (lessivage, N₂O) sans recourir aux inhibiteurs chimiques de nitrification (DCD, DMPP), souvent controversés pour leur persistance environnementale. Le BNI est ainsi un pont entre l'écologie fondamentale et la mitigation climatique agricole.
Cards en dialogue (6)
ASD : désinfection anaérobie du sol par biofumigation
C'est le principe de la désinfection anaérobie.
On enfouit de la matière organique fraîche, on inonde pour chasser l'oxygène, on bâche hermétiquement. Privés d'air, les microbes fermentent et produisent des acides et des gaz mortels pour les agents des maladies — tandis que les organismes utiles résistent mieux.
À la levée de la bâche, l'air revient et les composés toxiques se dégradent. L'opération exige de la chaleur et beaucoup de matière organique : elle excelle sous climat méditerranéen, en maraîchage, et perd en efficacité sous climat frais.
Science
La désinfection anaérobie du sol (ASD) est une technique de biofumigation alternative aux fumigants chimiques (bromure de méthyl, métam-sodium). Elle combine trois éléments : (1) incorporation de matière organique facilement décomposable (reste de culture frais, compost, fumier, ou lisier à forte dose), (2) irrigation saturante pour chasser l'oxygène, et (3) couverture imperméable (plastique) pendant 3-6 semaines en saison chaude.
Le mécanisme repose sur la fermentation anaérobie de la matière organique incorporée. En l'absence d'O₂, les microorganismes anaérobies produisent des composés toxiques : acides gras volatils (AGV) (acide acétique, butyrique, propionique), ammoniac (NH₃), composés phénoliques, et acides gras à chaîne courte (AGCC). Ces composés atteignent des concentrations létales pour les pathogènes telluriques (Fusarium, Verticillium, nématodes phytoparasites) tout en étant dégradés rapidement après la levée de la couverture (retour à l'aérobie).
L'ASD est sélective : elle préserve les organismes bénéfiques (Trichoderma, bactéries suppressives, mésofaune) mieux que la solarisation chimique. Elle améliore aussi la fertilité (apport de MO) et stimule la suppressivité du sol. Son adoption est mature en agriculture biologique méditerranéenne (Espagne, Italie, Californie) sur cultures maraîchères haute valeur (tomate, fraise, melon).
Les limites : coût de la matière organique (besoin de 20-40 t/ha), logistique de l'irrigation massive, fenêtre météo (besoin de températures sol >25°C pendant la période d'anaérobiose). En climat tempéré, l'ASD est moins efficace que la biosolarisation combinée (couverture transparente + chaleur solaire).
Cards en dialogue (4)
MHB : les bactéries auxiliaires de la mycorhization
Ce sont les bactéries auxiliaires de la mycorhization.
Elles réveillent les spores du champignon, préparent le terrain autour de la racine, débloquent le fer et le phosphore, et écartent les rivaux. Un coup de main qui rend l'alliance plus facile à nouer.
La leçon : la mycorhize n'est pas un duo, mais un trio — plante, champignon, bactérie. Et plutôt que d'acheter des souches au cas par cas, un sol vivant et couvert entretient tout seul ses entremetteurs.
Science
Les Mycorrhizal Helper Bacteria (MHB), ou bactéries auxiliaires de la mycorhization, sont des bactéries rhizosphériennes qui facilitent la colonisation mycorhizienne des racines. Décrites par Garbaye (1994), elles représentent un groupe fonctionnel écologique clé du continuum sol-plante.
Le mécanisme d'action des MHB est pluriel :
- Stimulation de la germination des spores fongiques (ex. via des flavonoïdes bactériens ou des strigolactones).
- Reconnaissance et adhésion : les MHB produisent des signaux moléculaires (polysaccharides, lipo-chitooligosaccharides de type facteurs Nod — produits surtout par les rhizobia) qui facilitent la reconnaissance entre l'hyphe fongique et la racine.
- Modification de la rhizosphère : acidification locale (libération de protons), chélation du fer (sidérophores), solubilisation du phosphore — créant un micro-environnement favorable au fungus.
- Protection contre les antagonistes : les MHB produisent des antibiotiques qui éliminent les compétiteurs fongiques.
Les MHB les plus étudiées appartiennent aux genres Pseudomonas, Bacillus, Streptomyces, et Paenibacillus. Elles ouvrent la voie à la co-inoculation (fungus + bactérie), qui surpasse souvent l'inoculation fongique seule (effet souche- et contexte-dépendant). Le défi est la formulation : les MHB sont souvent souche-spécifiques (une bactérie donnée ne fonctionne qu'avec une souche fongique donnée), ce qui limite les approches génériques.
En pratique, les MHB sont un argument fort pour l'ACS et les couverts végétaux : un sol vivant et diversifié entretient naturellement ses MHB, évitant le recours à l'inoculation commerciale. Le concept MHB illustre la nature trinitaire de la symbiose mycorhizienne : ce n'est pas une relation plante-fungus, mais plante-fungus-bactérie.
Cards en dialogue (5)
Efficience d'utilisation de l'eau (WUE) : le prix du carbone en eau
Pour fixer le CO₂, la plante doit ouvrir ses stomates, et chaque ouverture laisse fuir de l'eau.
Certaines plantes paient moins cher : les plantes C4, comme le maïs ou le sorgho, concentrent le CO₂ avant de l'utiliser et consomment moins d'eau pour le même résultat ; les plantes CAM, comme l'ananas, n'ouvrent leurs stomates que la nuit. Mais le sol vivant décide de la moitié de l'équation, en gardant l'eau de pluie pour la transpiration.
Un piège à éviter : une WUE élevée ne veut pas dire un rendement élevé. L'objectif n'est pas l'efficience d'une feuille isolée, mais la productivité de l'eau de tout le système.
Science
Efficience d'utilisation de l'eau (WUE) : rapport entre biomasse produite (ou rendement) et eau consommée (évapotranspiration). Concept fondateur (Briggs & Shantz, 1913) devenu la métrique centrale de l'adaptation au déficit hydrique.
Leviers génétiques : la photosynthèse fixe le prix de l'eau :
- Plantes C3 : la photorespiration impose des stomates largement ouverts → WUE de référence ; dépression méridienne de la photosynthèse sous stress (fermeture stomatique au pic de rayonnement).
- Plantes C4 (#4487) : concentration du CO₂ par la PEP-carboxylase (Hatch-Slack) → stomates moins ouverts pour le même carbone fixé → WUE environ doublée (maïs, sorgho, millet) (Ghannoum et al., 2010) : elles continuent de produire à midi quand les C3 s'arrêtent.
- Métabolisme CAM : stomates nocturnes → WUE maximale (agave, ananas) — voie encore peu explorée.
Leviers système (le sol vivant décide de la moitié de l'équation) :
- Maximiser l'eau verte (transpiration productive) contre l'évaporation directe : couverture du sol, mulch, densité de canopée (#36 §5).
- Réserve utile et connectivité racinaire : architecture « steep, cheap and deep » (idéotype Lynch) pour prélever profond tard dans la saison (#217, #272).
- Régulation fine : signalisation ABA racine→pousse (la racine « mesure » l'état hydrique avant la feuille — base du partial rootzone drying), aquaporines et conductance hydraulique.
Arbitrage clé : WUE élevée ≠ rendement élevé — maximiser la WUE peut réduire la production absolue ; l'objectif agronomique est la productivité de l'eau à l'échelle du système, pas l'efficience foliaire isolée.
Cards en dialogue (5)
Irrigation pilotée : l'appoint mesuré, filet de sécurité du sol vivant
Le sol vivant retient l'eau ; le pilotage vient en appoint, comme un filet de sécurité plutôt que la solution première.
Pour savoir quand arroser, on écoute le sol (des sondes qui mesurent la tension de l'eau) ou la plante, qui intègre mieux son état : un couvert qui a soif transpire moins et s'échauffe, ce que repère une caméra thermique. On peut même dessécher volontairement une partie des racines : la plante reçoit le signal « économise l'eau » sans épuiser sa réserve.
Mais l'eau mal conduite tue : arroser sans drainer concentre les sels et peut stériliser un sol — l'histoire des grandes irrigations antiques en est l'avertissement.
Science
Irrigation pilotée : l'apport d'eau comme décision mesurée (quand, combien, où), et non comme routine. Position retenue : l'irrigation n'est pas la solution première mais le filet de sécurité d'un système qui maximise d'abord la rétention biologique (couverture, structure, MOS) — le sol vivant réduit le besoin, le pilotage optimise l'appoint.
Échelles de décision :
- Pilotage au sol : seuils de potentiel hydrique (tensiomètres, sondes capacitives) — déclencher quand Ψ dépasse le seuil de confort racinaire, pas au calendrier.
- Pilotage à la plante : indicateurs de stress (température de canopée — CWSI, thermographie drone ; conductance stomatique) — la plante intègre mieux que le sol l'état hydrique du continuum SPAC.
- Signalisation physiologique : le partial rootzone drying (PRD, Dry & Loveys 1999) exploite la signalisation ABA racine→pousse — desserrer la stomatique sans épuiser la réserve ; technique parallèle au regulated deficit irrigation (RDI, formalisé par Chalmers, Mitchell & van Heek, 1981 ; mécanisme ancré sur Rousselin 2018), les deux étant distinctes dans la littérature.
Techniques et preuves :
- Irrigation de précision vs conventionnelle : économies d'eau mesurées à dose égale de production (Bondesan et al., 2022).
- Goutte-à-goutte en zones sèches : réduit les émissions de GES du sol tout en maintenant la production (Zhang et al., 2025).
- AWD (alternate wetting and drying) en riziculture : méta-analyse 2025 — alternance irrigation/drainage réduit l'eau et le méthane sans pénalité majeure de rendement (Rafy et al., 2025).
- Interface redox : l'irrigation pilote aussi les toxicités — gestion de la toxicité fer en riz par la conduite de l'eau (Carmona et al., 2021).
Risque symétrique : l'irrigation mal pilotée salinise (« aridité induite », fiche #36 §8) — leçon archéologique (Sumer, Loulan) : l'histoire des irrigations mal drainées est une histoire de sols morts.
Cards en dialogue (5)
Récolte de l'eau de ruissellement : capter le runoff pour régénérer les sols dégradés
Chaque cuvette devient une oasis miniature.
Ces creux — zaï, demi-lunes, banquettes — concentrent l'eau rare, la matière organique et la vie en îlots fertiles. Le trou crée les conditions : humidité, nourriture, microbes. La vie fait le reste.
Le principe est d'une simplicité généreuse : l'ouvrage appelle l'eau, l'eau appelle la vie, la vie fabrique le sol. Un petit terrassement qui reconstruit tout un paysage.
Science
Les techniques de récolte de l'eau de ruissellement — zaï, demi-lunes, banquettes, jessour — concentrent eau, matière organique et activité biologique en îlots de régénération au sein de paysages dégradés. Leur logique tient au principe génératif « structure → fonction hydrique » : l'ouvrage crée les conditions — humidité, matière organique, microbiote — que le vivant convertit en sol vivant. Sur mil au Niger, la plantation en zaï associée à un amendement organique accroît rendement, absorption d'azote, de phosphore et de potassium ainsi que l'efficience d'usage de l'eau sur terres dégradées (Fatondji et al., 2007) ; la décomposition de l'amendement dans la fosse libère progressivement les nutriments au plus près de la plante (Fatondji et al., 2009). Au-delà du zaï, les ouvrages de conservation des eaux et des sols améliorent la qualité chimique, biologique et physique d'un Plinthosol nigérien (Wildemeersch et al., 2015). En Tunisie aride, le système traditionnel des tabias, macrocaptage de l'eau de ruissellement, fonde son efficacité sur des processus hydrologiques documentés à l'échelle du bassin versant (Nasri et al., 2004) ; les jessour, barrages traditionnels, améliorent le statut hydrique des oliviers (Castelli et al., 2019) et la rétention d'eau en amont comme en aval de l'ouvrage (Calianno et al., 2023), tandis qu'une méthodologie générique permet d'évaluer ces techniques de récolte d'eau en régions arides et semi-arides (Adham et al., 2016), les jessour concourant en outre à la préservation de l'agrobiodiversité (Piras et al., 2021).
Cards en dialogue (4)
Autoroutes fongiques : dispersion bactérienne le long du réseau mycélien
Quand le sol s'assèche, un mince film d'eau y subsiste, où les bactéries voyagent.
Sur ces autoroutes, les microbes recolonisent le sol après un coup dur, bien au-delà de ce qu'ils pourraient atteindre seuls. Le filament est à la fois pompe et route.
D'où une règle pratique : ne jamais rompre la continuité de ces réseaux — ne pas labourer, couvrir. Une fois le réseau brisé, la vie met du temps à refaire ses routes.
Science
Le mycélium n'est pas seulement un organe d'acquisition : c'est une infrastructure de transport partagée. Le film d'eau continu qui tapisse les hyphes (→ terme #1300) reste liquide dans les pores asséchés là où la matrice du sol se déconnecte hydrauliquement ; les bactéries motiles (flagelles — terme #1959) y nagent ou s'y laissent transporter sur des distances centimétriques (Kohlmeier et al., 2005). En milieu sec et oligotrophe, le mycélium transfère eau et nutriments et stimule l'activité bactérienne le long de son réseau (Worrich et al., 2017 #1000471) — l'hyphe est simultanément pompe et route. Conséquence fonctionnelle majeure : après un stress (sécheresse), la recolonisation bactérienne ne dépend pas seulement de la banque dormante locale (→ terme #3504) mais de la redispersion le long des autoroutes hyphales — d'où l'importance de ne jamais rompre la continuité mycélienne (non-travail du sol, couverture). Distinction : la redistribution hydraulique fongique (→ terme #549) transporte l'eau ; l'autoroute fongique (→ terme #5043) transporte les bactéries dans l'eau conduite. Versant pourvoyeur en milieu aride : Allen, 2007 #1000469. Voir aussi card #226 (mycorhize), card #232 (biofilms), card #6 (eau facteur limitant), fiche #264 §3.1/§4.2 (autoroutes et méta-système connecté).
Cards en dialogue (4)
- Approfondi par
L'arbre moteur du cycle de l'eau : recyclage des précipitations et rivières volantes
La végétation — et l'arbre en particulier — est donc bien plus qu'un consommateur d'eau : c'est un moteur qui recycle l'humidité vers l'intérieur des terres, à des centaines de kilomètres de l'océan. Couper la forêt ou le couvert, c'est couper ce recyclage. À l'échelle d'une exploitation, planter des arbres dans et autour des champs relance ce moteur. Une idée plus audacieuse — la forêt aspirerait activement l'humidité de l'océan — reste débattue, mais la réalité du recyclage, elle, est bien mesurée.
Science
L'eau d'un continent ne vient pas seulement de l'océan : une grande part des précipitations continentales provient de l'évapotranspiration des terres elles-mêmes — jusqu'à 40 % en moyenne, et bien plus en Amazonie (van der Ent et al., 2010 #1000476). La végétation, et l'arbre en particulier, n'est donc pas un simple consommateur d'eau : c'est un moteur du cycle qui recycle l'humidité vers l'intérieur des continents (les « rivières volantes » — Nobre et al., 2016 #1000475) et refroidit les surfaces (Ellison et al., 2017 #1000472). En corollaire : détruire le couvert, c'est couper ce recyclage — la régénération végétale est une infrastructure hydrologique à l'échelle du paysage, pendant continental de la gestion de l'eau à la parcelle (→ card #55, échelle sol-plante-atmosphère). Version forte et débattue : la pompe biotique (→ terme #5044) postule que la forêt aspire activement l'humidité océanique vers les continents (Makarieva & Gorshkov, 2007 #1000473 ; critiques : Meesters et al., 2009) — le mécanisme exact reste discuté, la réalité du recyclage est elle mesurée. À l'échelle de l'exploitation, l'agroforesterie active ce moteur (→ card #222, card #121).
Hypothèse de synthèse — la boucle de bioprécipitation étendue au sol vivant
⚠ Hypothèse de synthèse — attribution Morris et al., 2014 (#1000474). La boucle de bioprécipitation (Sands, Morris) relie le vivant terrestre à la pluie : des bactéries glaçogènes (→ terme #5047) émises par les surfaces végétales et les sols s'envolent en bioaérosols (→ terme #688), servent de noyaux de condensation de glace dans les nuages, déclenchent les précipitations et retombent — réensemençant potentiellement les surfaces. Extension (non testée formellement) : un sol vivant couvert et mycélié, émettant un bioaérosol riche et diversifié, entretiendrait cette boucle là où un sol nu et labouré la dégrade — la santé du sol deviendrait ainsi un facteur de régime pluviométrique local, et les retombées un vecteur d'inoculum microbien entre parcelles. Chaînage complet jamais étudié au champ (angle mort de la littérature, veille 2026-07-23) ; présenté ici comme hypothèse de synthèse, pas comme fait établi.
Cards en dialogue (3)
Bactéries câbles : l'électricité longue distance du sol
Ces bactéries câbles forment de longs filaments qui relient deux mondes : en profondeur, sans oxygène, elles puisent l'énergie d'un composé du soufre, et en surface, elles la cèdent à l'oxygène, le courant circulant le long de leur corps comme dans un fil. Découvertes récemment, elles prolongent à grande échelle une aptitude que certains microbes exercent déjà à leur propre échelle. Leur rôle est loin d'être anecdotique : en oxydant le soufre, elles assainissent les sédiments et influencent les émissions de méthane des zones humides et des rizières.
Science
Les bactéries câbles (famille Desulfobulbaceae) sont des filaments multicellulaires capables de conduire des électrons sur plusieurs centimètres — une prouesse sans équivalent connu à cette échelle dans le monde vivant. Enfouies dans les sédiments et les sols saturés, elles couplent deux demi-réactions séparées dans l'espace : l'oxydation du sulfure (H₂S) en profondeur anoxique et la réduction de l'oxygène ou des nitrates en surface. Le courant circule le long de fibres protéiques conductrices logées dans le périplasme, alignées sur toute la longueur du filament. Décrites en 2012, elles incarnent l'extension multicellulaire et centimétrique du transfert d'électrons extracellulaire (TEE) que la card #85 décrit à l'échelle de la cellule (Geobacter, Shewanella). Leur rôle biogéochimique est majeur : en oxydant le sulfure, elles détoxifient les sédiments, restructurent les gradients redox et modulent les émissions de méthane des rizières et zones humides. L'électromicrobiologie, dont elles sont la figure de proue, compte parmi les avancées marquantes de la biologie des sols 2023-2026 (fiche #29).
Cards en dialogue (4)
Interaction chaleur × sécheresse : quand un plus un dépasse deux
Une plante qui manque d'eau ne transpire plus, donc ne se refroidit plus, donc souffre encore plus de la chaleur — un engrenage.
La science récente montre que ce stress combiné fait plus de dégâts que l'étude séparée de chaque épreuve ne le laissait prévoir : la photosynthèse s'effondre, le microbiome des racines se dérègle, le carbone du sol s'appauvrit.
La parade est la même pour les deux maux : couverture et structure, qui stockent l'eau et amortissent la chaleur. Un sol vivant est un parapluie contre les deux coups à la fois.
Science
Sous le changement climatique, les cultures subissent rarement un stress à la fois : les vagues de chaleur s'accompagnent presque toujours de sécheresse. Or l'effet combiné n'est pas la somme des deux stress séparés — il est synergique. Là où les modèles additifs prédisent une dégradation graduelle, le couplage chaleur × sécheresse provoque des ruptures : effondrement de la photosynthèse au-delà de seuils thermiques que la plante tolérerait si elle était bien alimentée en eau, fermeture des stomates qui bloque le refroidissement foliaire et aggrave le stress thermique, altération du microbiome racinaire et chute du bilan carbone du sol. Ce paradigme du stress combiné — dont le cadre générique est la combinaison de stress multifactorielle (MFSC, terme #5032) — est devenu central en écophysiologie du changement climatique (Böhnisch et al., 2025 ; Yang et al., 2024) et il invalide l'extrapolation des réponses mesurées stress par stress. Pour le sol vivant, l'enjeu est double : couverture et structure (réserve utile, card #194) amortissent simultanément les deux composantes, et la tolérance croisée (terme #5034) devient un objectif de sélection.
Cards en dialogue (5)
Rhizosheath : la gaine racinaire, trait holobiontique de la tolérance à la sécheresse
Ce manchon, la rhizogaine, est un filet de sécurité contre la sécheresse.
Ni la racine seule ni les microbes seuls ne la fabriquent : elle naît de leur travail commun — mucilage, filaments, grains soudés. Elle maintient le contact entre la racine et le sol qui se dessèche.
Elle prolonge l'absorption de l'eau et abrite des microbes qui adoucissent le stress de la plante. Un trait qu'on sélectionne désormais chez le blé et l'orge — la petite gaine qui fait tenir les cultures sous la soif.
Science
La rhizosheath (rhizogaine, terme #5033) est la gaine de sol qui reste accrochée à la racine quand on l'arrache : un manchon de quelques millimètres où grains minéraux, mucilage racinaire et micro-organismes sont soudés en un tissu composite. Longtemps traitée comme un simple descripteur morphologique, elle est désormais reconnue comme un trait fonctionnel de l'holobionte : ni la racine seule ni le microbiote seul ne la fabriquent — elle naît de leur interaction (mucilage + hyphes + agrégats fins). Sa formation est un objectif de sélection variétale pour la tolérance à la sécheresse (blé, orge) : une gaine épaisse maintient le contact hydrique racine-sol quand le sol sèche, prolonge l'absorption et abrite un microbiome qui module les signaux de stress (ABA). Elle complète la réserve utile (card #194), qui mesure l'eau du profil : la rhizosheath, elle, sécurise la jonction entre cette réserve et la plante.
Cards en dialogue (4)
Ozone troposphérique × microbiome du sol : un stress qui descend dans la rhizosphère
Les mêmes familles de bactéries réagissent de la même façon sous différentes cultures — un effet reproductible et profond.
À la longue, l'ozone disloque les liens entre plante, microbes et sol : la diversité des champignons s'amenuise, les réseaux se fragmentent. Chaque compartiment — feuille, racine, intérieur de la racine — ne répond d'ailleurs pas de la même façon.
La sécheresse s'en mêle par les pores des feuilles : une plante assoiffée ferme ses pores et se protège un peu de l'ozone, mais l'ozone lui abîme cette protection. Personne n'a encore trouvé de mécanisme microbien de tolérance à l'ozone : c'est un chantier ouvert.
Science
L'ozone troposphérique n'agresse pas seulement la feuille : il atteint le compartiment vivant du sol. Les travaux récents (2021-2024) montrent que l'O3 élevé modifie les communautés microbiennes rhizosphériques de façon reproductible et phylogénétiquement conservée — les mêmes lignées bactériennes répondent dans le même sens chez le blé, le soja, le riz et le peuplier (Yu et al. 2023). À long terme, la pollution ozonée disloque les interactions plante-microbe-sol : diversité fongique réduite, réseaux bactéries-champignons fragmentés, qualité du sol dégradée chez le soja (Zhang et al. 2024). Les effets sont compartiment-spécifiques : phyllosphère, rhizosphère et endorhize ne répondent pas de la même façon (effets compartiment-spécifiques — Wang et al., 2024 ; Liu et al., 2022), et le pH du sol pilote la réponse rhizosphérique (Li et al., 2021 ; Wang et al., 2025).
Le couplage avec la sécheresse passe par les stomates : le déficit hydrique réduit la conductance et limite l'entrée d'O3 (protection transitoire), mais l'O3 perturbe la fermeture stomatique protectrice — la plante ozonée perd une partie de son étanchéité à la sécheresse (Gao et al. 2024, interaction via le VPD).
Angle mort assumé : aucun mécanisme microbien de tolérance à l'O3 n'est établi (ni ACC désaminase, ni priming, ni antioxydants microbiens documentés). Seules des preuves indirectes existent : les PGPR compensent partiellement la perte de rendement sous O3 élevé chez le pois chiche (+18-19 %, Nedumaran et al. 2024), et l'antiozonant chimique EDU modifie le microbiome du cycle de l'azote en rizière (Wang et al. 2023). Piste de veille : l'holobionte comme médiateur de tolérance à l'ozone reste à démontrer — revoir dans 12-18 mois.
Cards en dialogue (3)
PFAS : les polluants éternels du recyclage agricole
Elles arrivent par les boues, les amendements contaminés, l'air. Les plus longues s'accumulent dans le sol ; les plus courtes lessivent vers les cultures. Le chemin est documenté : sol, plante, bétail, assiette.
Pas de remède à l'échelle du champ : seule la prévention compte, en contrôlant la qualité chimique des intrants organiques. Un arbitrage délicat avec le recyclage des matières organiques, pourtant pilier du sol vivant.
Science
Les PFAS (per- et polyfluoroalkylés) sont une famille de plusieurs milliers de molécules synthétiques au squelette carboné fluoré. La force de la liaison C-F les rend quasi indestructibles en conditions de sol — « polluants éternels » — et aucune voie microbienne connue ne les minéralise à taux significatif à l'échelle de la parcelle.
Points structurants :
- Sources agricoles : biosolides et amendements organiques contaminés (première voie historique), eaux usées traitées, dépôts atmosphériques, mousses anti-incendie.
- Comportement : sorption multifactorielle (MO, argiles, oxydes, pH, interface air-eau) ; les chaînes longues s'accumulent, les chaînes courtes lessivent et migrent vers les cultures.
- Transfert : sol → plante → bétail → assiette documenté ; microbiome perturbé sous stress fluoré.
- Doctrine : pas de remédiation à l'échelle du sol — la prévention (qualité chimique des intrants organiques) est la seule voie. Dialectique assumée avec le recyclage des matières organiques, pilier de la fertilité.
Zoom dédié : fiche #302. Voisins : card #241 microplastiques (autre contaminant émergent, particules vs molécules), card #180 exposome chimique alimentaire, card #116 continuum sol-aliment-santé.
Cards en dialogue (3)
Mycorhize éricoïde
Un champignon associé à leurs racines neutralise l'aluminium toxique de ces sols et va puiser l'azote et le phosphore que personne d'autre ne sait extraire. Ce couple plante-champignon fait mieux que tolérer l'acidité : il en fait un atout, verrouillant le lien entre la plante et le stock organique du sol. Si l'on casse cette alliance, la plante se coupe de ses réserves et le carbone accumulé dans ces milieux est menacé. Leçon pratique : sur sol acide, mieux vaut parfois choisir des plantes et des champignons adaptés à ce milieu que de corriger l'acidité à grands coups de chaux.
Science
La mycorhize éricoïde est une symbiose spécifique aux Éricacées (callune, myrtille, rhododendron, bruyères) qui domine les sols acides, podzoliques et les landes tempérées-boréales. Les champignons impliqués (ascomètes Helotiales : Rhizoscyphus ericae, Oidiodendron maius) détiennent un arsenal enzymatique unique : ils complexent l'Al³⁺ toxique des podzols et mobilisent l'azote et le phosphore organiques inaccessibles aux autres plantes.
À l'échelle biogéochimique, les éricoïdes fonctionnent comme des verrous du couplage C-N-P des landes à callune et des tourbières ombrotrophes (Shao et al., 2022) : supprimer le champignon rompt le lien entre la plante et le stock organique du sol, menaçant le puits de carbone (Finlay et al., 2020 ; Wang et al., 2024). Dans les podzols forestiers, elles s'organisent en strates verticales : horizons E (cendreux) pour les ECM spécifiques, horizon illuvial B pour les éricoïdes et saprotrophes dédiés (Rosling et al., 2003).
Spécialistes de l'extrême acidité, les éricoïdes illustrent la voie de la co-adaptation plante-champignon plutôt que celle du chaulage correctif — une doctrine pertinente pour tout projet d'implantation pérenne sur sol acide.
Cards en dialogue (4)
Symbiose Azolla-Anabaena
Depuis des siècles, elle fertilise les rizières d'Asie.
La fougère offre gîte et protection ; la bactérie fixe l'azote de l'air. Une des symbioses les plus efficaces du monde végétal, qui transforme la plante en engrais vert flottant.
Une fois enfouie au sol, son azote se libère mieux que celui du compost ou de certains biofertilisants, rivalisant avec le fumier, en maraîchage. Une vieille sagesse paysanne que la science confirme.
Science
La fougère aquatique Azolla héberge dans ses cavités foliaires dorsales la cyanobactérie diazotrophe Anabaena azollae : la plante offre abri et surface d'échange, la bactérie fixe l'azote atmosphérique (Jama et al., 2023). Présente naturellement dans les eaux douces des régions tempérées chaudes et tropicales, Azolla est cultivée de longue date en rizière comme fertilisant vivant, fournissant l'azote à la culture (Jama et al., 2023). Cette association symbiotique fait d'Azolla une ressource aquatique multifonctionnelle au service de la durabilité agricole, environnementale et climatique (Kollah et al., 2016). L'intérêt agronomique tient à la minéralisation rapide de sa biomasse une fois appliquée au sol : après 140 jours d'incubation en laboratoire, la disponibilité azotée du biofertilisant Azolla atteint 73 %, contre 15,5 % pour le compost et 31,6 % pour les biofertilisants cyanobactériens (Jama et al., 2023). Cette disponibilité supérieure se répercute sur l'absorption d'azote et le rendement des cultures maraîchères, où Azolla, appliqué à dose d'azote équivalente, produit des effets agronomiques comparables au fumier sur sol tourbeux (Jama et al., 2023).
Cards en dialogue (3)
Aquaponie découplée
La version « découplée » sépare les deux mondes pour mieux les ajuster.
Les poissons rejettent de l'ammoniac ; un filtre vivant le transforme en nourriture pour plantes ; cet effluent alimente alors un circuit végétal indépendant, réglable à part. Cette nutrition d'origine animale approche, sur certaines cultures, les performances de l'hydroponie chimique.
Reste la vraie question régénérative : pourquoi envoyer cette eau riche vers un bac hors-sol, plutôt que vers une terre vivante qui saurait en profiter ? Renouer le fil entre le déchet du poisson et le sol.
Science
Variante d'aquaponie où les boucles piscicole et végétale sont séparées : l'effluent minéralisé des poissons (ammoniac oxydé en nitrates par la filtration biologique) transite à sens unique vers une boucle de production indépendante, ajustable en pH et en nutriments complémentaires. Rodgers et al. (2022) montrent que cette nutrition d'origine biologique (DAP+) approche l'hydroponie chimique (−11 % de biomasse sur basilic). Yep & Zheng (2019) en font la revue de référence. Une troisième architecture, historiquement première, reste couplée : l'aquaponie sur sable (iAVs) de McMurtry, où le lit de sable joue seul les trois rôles de filtre, biofiltre et support — efficience hydrique 2,37 à 3,47 fois la culture au sol (McMurtry et al., 1997) card #273. L'enjeu régénératif : reconnecter l'effluent aquacole au sol vivant (fertigation, amendement) plutôt qu'à la seule hydroponie fiche #314.
Cards en dialogue (4)
Vermifiltration
L'effluent (eaux usées, eaux de pisciculture) percole à travers un lit de substrat colonisé par des vers — notamment Eisenia fetida, le ver de compost — et leur microflore. Les vers fragmentent les matières en suspension, puis les microbes aérobies (qui travaillent en présence d'oxygène) décomposent la charge organique, ce qui réduit fortement la pollution de l'eau.
Le procédé produit deux choses : une eau épurée et un vermicompost encore immature, valorisable au sol. Une vigilance : le lit se comble de vermicompost sur plusieurs années et exige une vidange pluriannuelle — pas de boue résiduelle type station. En somme, c'est l'extension du vermicompostage au compartiment de l'eau.
Science
La vermifiltration fait percoler un effluent (eaux usées, effluents de pisciculture) à travers un lit de substrat colonisé par des vers (Eisenia fetida) et leur microflore. Les vers ingèrent les matières en suspension, et l'activité symbiotique entre lombriciens et micro-organismes filtre l'effluent (Banerjee et al., 2024). Le corps du ver agit comme biofiltre et abat des proportions élevées de demande biochimique en oxygène, de demande chimique en oxygène et de matières en suspension, à des niveaux supérieurs à ceux des stations d'épuration classiques, sans les produits chimiques ni la forte dépense énergétique qu'elles exigent (Banerjee et al., 2024). La charge solide est convertie en vermicompost plutôt qu'en boue résiduelle : le procédé ne forme aucune boue — « no sludge is formed » — et demeure pratiquement inodore (Banerjee et al., 2024). La production est donc double : un effluent épuré et un vermicompost immature valorisable au sol. Le lit se comble progressivement sur plusieurs années et exige une vidange pluriannuelle : le prototype d'assainissement décentralisé « Tiger Toilet » a traité quotidiennement les matières fécales sans accumulation, avec une vidange estimée au bout d'environ cinq ans selon la profondeur de vermicompost générée (Furlong et al., 2015). Extension hydraulique du vermicompostage au compartiment eau, la vermifiltration prolonge la logique de valorisation des déchets organiques vers l'épuration des effluents.
Cards en dialogue (2)
Respiration du sol : indicateur d'activité microbienne
Mesurer ce souffle, c'est prendre le pouls de la vie du sol — l'indicateur le plus direct de son activité biologique, qui réagit en quelques heures au labour, à un apport de matière organique, à une sécheresse ou à un excès d'eau. La lecture demande du doigté : un fort dégagement peut traduire une décomposition active et bénéfique, ou au contraire la libération brutale d'un stock sous l'effet d'un remuement ou d'un réchauffement. Bien interprétée, c'est le thermomètre du moteur microbien du sol, complémentaire des mesures de sa structure.
Science
La respiration du sol (flux de CO₂ issu de la minéralisation de la matière organique par les micro-organismes et les racines) est l'indicateur le plus direct de l'activité biologique du sol. Elle traduit en temps réel la vitalité du métabolisme microbien : un sol vivant respire — son CO₂ provient de la décomposition de la litière, du turnover de la biomasse microbienne et de la respiration racinaire. Mesurée au champ par piégeage alcalin, chambre d'incubation ou sonde à infrarouge (t15), elle réagit rapidement aux pratiques : labour, apports carbonés, sécheresse ou engorgement la modulent en quelques heures. Sa lecture doit rester contextuelle — un pic de CO₂ peut signaler soit un pic d'activité bénéfique (décomposition active), soit une libération de stock (réchauffement, remuement) ; l'interprétation croise température, humidité et rapport C/N des apports. La respiration est le thermomètre du "moteur microbien" du sol vivant, complémentaire des tests structuraux qui en mesurent les conséquences matérielles.
Cards en dialogue (5)
Signature olfactive du sol vivant : COV microbiens (géosmine, pétrichor)
Elle vient de molécules émises par les micro-organismes du sol — la géosmine des actinomycètes, libérée par la pluie sous le nom de pétrichor.
Le sol émet en permanence un cocktail d'odeurs qui reflète son état : une senteur fraîche et terreuse signe un sol aéré et actif ; une odeur aigre, putride ou métallique annonce le basculement vers l'asphyxie. Le nez devient un instrument de diagnostic.
Ces molécules ne sont pas des déchets : c'est un langage chimique entre organismes. Les nez électroniques commencent à formaliser cette empreinte — l'odorat comme signature de la santé du sol.
Science
Un sol vivant se reconnaît au nez. La géosmine (C₁₂H₂₂O), terpène volatil sécrété par les actinomycètes aérobies (Streptomyces), donne au sol sain sa note de terre mouillée ; le pétrichor est ce même signal libéré par la pluie. Au-delà de ces molécules emblématiques, le sol émet en permanence un cocktail de COV (alcools, cétones, terpènes, composés soufrés) dont le profil reflète l'activité microbienne : la réhumectation déclenche une bouffée volatile caractéristique (effet Birch). Ces COV ne sont pas des déchets métaboliques mais un langage chimique — signal d'attraction/répulsion entre organismes du sol, dans une logique de défense mutualisée. Le test olfactif du sol formalise cette lecture : odeur fraîche/terreuse = aérobie actif ; putride/aigre/métallique = bascule anaérobie (même organe, deux signaux opposés — cf. cards #34 et #39). L'olfactométrie quantitative (nez électronique couplé GC-MS) ouvre la voie à une empreinte volatile reproductible de l'holobionte.
Cards en dialogue (5)
Couleur du sol : code Munsell et lecture chromatique du profil
Encore faut-il pouvoir la nommer précisément.
Un code universel y pourvoit : la teinte dominante, la clarté et la saturation. Ainsi, deux personnes, en deux langues, décrivent le même sol avec la même notation, par exemple « 10YR 4/3 », sans ambiguïté.
Sous la couleur gît une vraie information : sombre, c'est la matière organique ; rouille, c'est le fer ; gris-verdâtre, c'est un sol qui a longtemps baigné dans l'eau. Une lecture immédiate et gratuite du profil.
Science
La couleur est la première information que livre un profil de sol — mémoire visible de sa matière organique, de son drainage et de son histoire pédologique. Le code Munsell, standard international de description des sols, la rend reproductible : teinte (hue, longueur d'onde dominante — 10R-5YR pour les sols riches en hématite, 7.5YR-10YR pour les bruns tempérés, 2.5Y-5Y pour les horizons lessivés ou hydromorphes), valeur (clarté, de 0 noir à 10 blanc), chroma (saturation). Une notation « 10YR 4/3 » permet à deux observateurs de décrire la même couleur sans ambiguïté, indépendamment de la langue. Les indices dérivés des coordonnées Munsell sont des prédicteurs quantitatifs de propriétés fonctionnelles (teneur en MO, CEC) : la couleur n'est pas un attribut esthétique mais un indicateur indirect intégré du fonctionnement du sol. Le test de couleur du sol systématise la lecture en fosse ou à la tarière : notation Munsell de chaque horizon, transitions (nette, graduelle, diffuse), marbrures, taches et concrétions ferro-manganiques. Lecture redox des couleurs d'hydromorphie → cards #15 et #5 ; chimie des pigments (MO, oxydes Fe, MnO₂) → cards #213, #196 et #175. Cette card porte la notation et le protocole — pas les mécanismes.
Cards en dialogue (5)
Pompe microbienne à carbone : voies in vivo/ex vivo, effet Tombeau et leviers d'activation
Les plantes libèrent des sucres par leurs racines ; les microbes les absorbent, s'en servent pour grandir, puis à leur mort leurs restes se fixent solidement aux particules du sol, à l'abri de la décomposition. C'est ce qu'on appelle la pompe microbienne à carbone : elle transforme le carbone frais en un stock durable, et une part importante du carbone stable du sol provient ainsi des restes des microbes. Cette pompe a ses limites — elle sature quand les particules du sol sont pleines — et son rendement dépend de la santé des microbes. On l'alimente en diversifiant les plantes, en couvrant le sol et en limitant le travail du sol.
Science
La pompe microbienne à carbone (MCP, Liang et al. 2017/2019) est le mécanisme par lequel le carbone labile (exsudats racinaires, litières) est transformé par le vivant — absorbé, métabolisé, incorporé à la biomasse microbienne — puis stabilisé post-mortem en nécromasse associée aux minéraux (MAOM). Deux voies complémentaires : in vivo (anabolisme : le C devient constituant cellulaire — voie dominante pour la MAOM) et ex vivo (enzymes extracellulaires décomposant les résidus). À la mort cellulaire, l'« effet Tombeau » (entombing, Kästner 2021) opère : fragments de parois riches en groupements fonctionnels, adsorbés sur les surfaces minérales à l'abri de la décomposition. La nécromasse microbienne représente ~33-62 % du C organique stable (biomarqueurs sucres aminés). L'efficience de la pompe dépend de la CUE (card #186) ; sa capacité est bornée par la saturation minérale (card #185). Leviers : diversification végétale et rhizodéposition, couverts vivants, équilibre C:N:P, réduction du travail du sol.
Cards en dialogue (4)
Financement de la séquestration carbone : Label Bas Carbone, CRCF et PSE
Des dispositifs de financement — Label Bas Carbone en France, cadre européen de certification du retrait carbone, paiements pour services écosystémiques — cherchent à rémunérer ce service.
Le principe est séduisant : certifier qu'une pratique séquestre du carbone et rémunérer l'agriculteur. Mais des verrous demeurent : le stockage biologique peut se renverser (un labour, et le carbone repart), les modèles restent incertains, et les frais de diagnostic pèsent lourd.
À lire avec les lunettes des coûts cachés : ces dispositifs n'internalisent qu'une partie des externalités. Ils valent ce que vaut leur exigence — additionnalité réelle, co-bénéfices pour la biodiversité —, pas un simple certificat.
Science
Cadre des dispositifs économiques de financement de la séquestration du carbone agricole : Label Bas Carbone (France, méthodes CarbonAgri), CRCF (Carbon Removal Certification Framework, règlement UE 2024/3012, critères QU.A.L.ITY) et Paiements pour Services Écosystémiques (PSE). Principe commun : transformer un service écosystémique (carbone séquestré, émissions évitées) en actif certifié rémunérable, en complémentarité avec les aides publiques (PAC 2023-2027 : éco-régimes, au moins 25 % des paiements directs — Pilvere et al., 2022). Verrous : non-permanence et réversibilité du stockage biologique (vs puits biominéraux, card #122), incertitudes des modèles biophysiques dans le MRV (Smith et al., 2020), coûts transactionnels non négligeables (diagnostic initial puis suivi annuel), propriété des droits carbone dans le bail rural. Lecture : ces dispositifs sont une internalisation partielle des externalités (card #79) et un levier de déverrouillage sociotechnique (card #8) — à juger sur l'additionnalité et les co-bénéfices biodiversité exigés par le CRCF.
Cards en dialogue (3)
Révolution verte : Haber-Bosch, blé nain et modernisation agricole
Trois leviers portent ce basculement : la synthèse de l'ammoniac (procédé Haber-Bosch), qui fabrique l'engrais azoté à partir de l'air et du gaz ; le blé nain, capable d'absorber de fortes doses d'engrais sans se coucher ; et la mécanisation, qui remplace la traction animale.
Le résultat est spectaculaire — les rendements céréaliers bondissent en quelques décennies — mais la facture se paie en vie du sol. La plante sélectionnée pour les engrais, puis sur-fertilisée, se coupe des microbes qui l'accompagnent et devient plus malade au lieu d'être plus forte ; les paysages s'homogénéisent.
Lire cette trajectoire aide à comprendre le présent : la Révolution verte est l'épisode moderne d'un très vieux cycle d'érosion.
Science
La Révolution verte est le basculement où l'agriculture cesse de fermer ses cycles et commence à brûler du capital fossile. Trois leviers techniques portent cette conversion : la synthèse de l'ammoniac (Haber-Bosch) qui fournit l'azote minéral, le blé nain semi-nain (Borlaug) qui tolère les fortes doses d'engrais sans verse, et la mécanisation intégrale qui remplace la traction animale. La combinaison porte les rendements céréaliers à des niveaux sans précédent en deux générations (Smil, 2001) — tout en vidant les sols de leur vie.
Ce que la trajectoire a cassé : la minéralisation subie (engrais N solubles) accélère la consommation du carbone du sol (appui : Jia et al., 2025) ; la sélection variétale pour la réponse aux intrants découple la plante de son microbiome (la trophobiose s'inverse — la plante sur-fertilisée devient plus malade, non plus forte) ; la concentration des chaînes (blé-soja-boeuf) homogénéise les paysages et fait disparaître les rotations de coupure (Burel et al., 2004 ; Bloor et al., 2021).
Distinction : cette card raconte la trajectoire historique (1945→aujourd'hui) ; la card #140 traite la dépendance (souveraineté/azote), la #190 la fragilité systémique (effondrement du capital fossile), la #1 le coût énergétique (esclaves). La Révolution verte est l'épisode moderne du cycle d'érosion civilisationnelle (#109) — la version énergétique du labour de Sumer.
Renvois : « révolution verte » (terme #226), Haber-Bosch (terme #165), esclaves énergétiques (card #1).
Cards en dialogue (10)
- Voir aussi (9)
-
- Coût réel de l'énergie fossile et 'esclaves énergétiques'
- Souveraineté azote-fertilisation : l'autonomie nationale face à la dépendance Haber-Bosch
- EROI : retour énergétique des systèmes agricoles (énergie utile / énergie investie)
- Fragilité systémique fossile : la dépendance aux intrants de synthèse comme point de rupture
- Technologies paysannes ancestrales : fermentation, couplage et aménagements
- Anthrosols : Terra Preta et sols anthropogéniques
- Généalogie du terme agriculture régénératrice : de Bablot (1877) au greenwashing
- Effondrement agraire : trajectoire cumulative, pas événement
- L'agriculture permanente (King) : 4 000 ans de boucle fermée
Technologies paysannes ancestrales : fermentation, couplage et aménagements
Trois piliers. Les fermentations paysannes (bokashi, jus fermentés, lait fermenté) domestiquent les successions microbiennes : on coupe l'air, on produit l'acide, on trie les microbes. Le couplage culture-élevage, né au Néolithique, fait des déjections animales un engrais : la fertilité devient un capital entretenu, pas un flux acheté. Les aménagements — riz inondé, terrasses — domestiquent le paysage et l'eau.
Ces techniques ne sont pas des curiosités : elles prouvent qu'on peut fermer les cycles sans énergie fossile. C'est le contrepoint direct de la Révolution verte, et la préhistoire exacte des pratiques que ces méthodes remettent en œuvre.
Science
Les technologies paysannes ancestrales — fermentation, couplage culture-élevage, greffe, terrasses — sont la première preuve que l'humain peut piloter le vivant du sol sans le détruire. Bien avant l'agriculture industrielle, les paysans du monde entier ont domestiqué non seulement plantes et animaux, mais aussi les microbes.
Trois piliers : (1) les fermentations paysannes (bokashi, lait fermenté, jus végétaux fermentés) — une intuition vieille de dix mille ans (Mazoyer & Roudart, 1997) qui domestique les successions microbiennes : couper l'air, produire l'acide, trier les microbes ; (2) le couplage culture-élevage néolithique, qui boucle les déjections animales sur les cultures et fait de la fertilité un capital entretenu plutôt qu'un flux acheté ; (3) les aménagements hydrauliques et terrasses (riz inondé, chinampas, terrasses incas) qui domestiquent le paysage.
Pourquoi ça compte aujourd'hui : ces technologies ne sont pas des curiosités. Elles sont la preuve historique que les cycles peuvent être fermés sans fossiles — et le contrepoint direct à la Révolution verte (#264). Leurs principes (anaérobie, lactobacilles, couplage) sont exactement ceux que les fiches de la strate P remettent en pratique.
Renvois : fermentations paysannes (fiche #258), lactofermentation (fiche #280), couplage culture-élevage (fiche #274).
Cards en dialogue (6)
- Voir aussi (5)
-
- Évolution écologique du sol : sol nu → climax, stratégies microbiennes r/K et Y-A-S (cadre diagnostique)
- Labour
- Révolution verte : Haber-Bosch, blé nain et modernisation agricole
- Généalogie du terme agriculture régénératrice : de Bablot (1877) au greenwashing
- L'agriculture permanente (King) : 4 000 ans de boucle fermée
Anthrosols : Terra Preta et sols anthropogéniques
On les appelle anthrosols, et la Terra Preta d'Amazonie en est l'archétype. Sur des sols tropicaux pauvres, les populations précolombiennes ont accumulé charbon de bois, débris de cuisine et fientes. Le résultat : une terre noire, riche en carbone stable et en nutriments, qui reste fertile longtemps après l'abandon des villages.
Le mécanisme est reproductible : apporter du carbone stable et de la matière organique, laisser la faune du sol l'incorporer. Le biochar moderne en est la réactivation.
Contre le récit de la dégradation, les anthrosols montrent qu'une agriculture peut accumuler du capital sol au lieu de l'épuiser.
Science
Les anthrosols — sols anthropogéniques construits par des siècles de gestion — sont la preuve archéologique que l'humain peut enrichir un sol au lieu de l'épuiser. La Terra Preta de l'Amazonie en est l'archétype : des sols noirs, riches en charbon, en os et en débris organiques, créés par les populations précolombiennes sur des oxysois initialement pauvres et toujours fertiles plusieurs siècles après leur abandon (Glaser et al., 2001).
Le mécanisme : apports répétés de biochar (charbon de bois faiblement brûlé), de débris de cuisine et de fientes, plus le travail de la faune du sol — ce qui donne une matière organique stable, riche en phosphore et en calcium (Glaser et al., 2001 ; Glaser & Birk, 2012), qui se recharge lentement. Le biochar moderne (#82) en est la réactivation technologique : la même logique, validée par les analyses chimiques actuelles. Le chantier sableux (#61) en est la version récente en contexte tempéré.
Pourquoi c'est capital : contre le récit de dégradation (#109 : Sumer, Dust Bowl), les anthrosols sont le contre-exemple que l'agriculture peut accumuler du capital sol. Les chinampas (systèmes lacustres mésoaméricains — Morehart & Frederick, 2014) et certaines rizières asiatiques en sont d'autres formes — sols vivants bâtis, pas érodés.
Renvois : anthrosol (terme #1394), Terra Preta (terme #351), biochar (card #82), chantier sableux (card #61).
Cards en dialogue (5)
Pédogenèse et CLORPT : les cinq facteurs de formation des sols
CLORPT résume ces cinq facteurs de formation du sol. Le facteur décisif est le temps : fabriquer un sol prend des siècles pour quelques centimètres, alors qu'il peut s'éroder en quelques décennies. Ce contraste de vitesses est le cœur du problème : la fertilité se construit lentement et se détruit vite. Cette grille complète le mécanisme biologique — les plantes qui bâtissent le sol par leurs racines — en expliquant pourquoi le même geste agricole ne donne pas le même sol selon le terroir. Lire un sol, c'est situer son profil dans ce pentagone à cinq variables. Chaque terroir est un point unique de cette carte.
Science
Le modèle CLORPT de Jenny (1941) — Climat, Organismes, Relief, Roche-mère, Temps — est le cadre factoriel de la formation des sols : un sol n'est pas un objet, mais le résultat de cinq facteurs agissant sur la durée.
Le facteur Temps est la clé : la pédogenèse est lente — de l'ordre de quelques centaines d'années par centimètre d'horizon de surface dans les conditions tempérées. Ce contraste d'échelle de temps (formation en siècles, érosion en décennies) est le cœur du problème civilisationnel (#109 : la fertilité se fabrique lentement et se détruit vite).
Distinction avec #23 : #23 décrit le mécanisme biologique (comment les plantes construisent le sol via exsudats et rhizosphère) ; cette card pose le cadre factoriel (les cinq variables qui modulent ce mécanisme selon le lieu et l'époque). La lecture conjointe répond à : pourquoi le même geste agricole ne produit pas le même sol selon le terroir ?
Usage : CLORPT est la grille de lecture du terroir — chaque profil de sol (Types de sols, dim 6) est un point du pentagone CLORPT. La fertilité comme « mémoire étagée » (thèse doctrine #9) en est l'écriture en profondeur.
Renvois : fiche #300 (Pédogenèse, Jenny 1941), #2 (temporalité), #78 (cascade temporelle T0-T5), #23 (évolution plantes), #65 (coévolution 450 Ma).
Cards en dialogue (5)
- Voir aussi (5)
-
- Temporalité, irréversibilités et entropie des pratiques humaines
- Évolution des plantes et construction du sol : racines, mycorhizes, rhizosphère, boucles plante–microbiome
- 450 Ma de coévolution plante-microbe : cadre temps-profond trois piliers
- Cascade temporelle : T0 instantané → T5 géologique (à quelle échelle ça se joue)
- Croûtes biologiques du sol (biocrusts) : la peau vivante du sol pionnier
Remontée hydraulique : l'eau remontée par les racines, assurance-sécheresse du sol vivant
Les agronomes appellent cela la remontée hydraulique — une irrigation invisible, pilotée par la plante elle-même.
Ce mécanisme réhumidifie la zone racinaire de surface, maintient les micro-organismes actifs et la nutrition minérale pendant les sécheresses. Les réseaux de champignons prolongent cette redistribution à l'échelle micrométrique.
C'est un levier de résilience en climat sec : l'agroforesterie l'exploite en associant des arbres aux racines profondes et des cultures superficielles — une pompe naturelle qui arrose la surface pendant que le soleil dort.
Science
Les racines profondes, en contact avec l'humidité du sous-sol, relâchent passivement de l'eau dans les horizons secs la nuit, quand le potentiel hydraulique du sol superficiel devient plus négatif que celui de la racine : c'est la redistribution hydraulique, dont la remontée nocturne suivie d'une résorption diurne a été démontrée (Caldwell et al., 1989). Ce flux vertical hydrate la rhizosphère superficielle, avec des conséquences écophysiologiques documentées pour les plantes (Caldwell et al., 1998) ; représentant de 17 à 81 % de l'eau transpirée, il favorise l'absorption de nutriments issus de la décomposition de la matière organique (Sardans et Peñuelas, 2013). Sa magnitude moyenne globale atteint 0,249 mm par jour, soit 27,4 % de la transpiration, avec des valeurs maximales dans les forêts tempérées sèches (Yang et al., 2022). Le phénomène est favorisé par les sols limoneux et les espèces à racines profondes dimorphes, et les champignons mycorhiziens l'amplifient en élargissant la zone de prélèvement racinaire (Sha et al., 2024). Les hyphes fongiques prolongent cette redistribution : un champignon saprotrophe redistribue l'eau du sol et accroît la minéralisation du carbone sous sécheresse (Guhr et al., 2015), les mycorhizes formant de véritables voies de circulation pour l'eau et les nutriments dans les sols arides (Allen, 2007). Levier de résilience des systèmes à enracinement profond en climat méditerranéen, cette redistribution hydraulique est exploitée par l'agroforesterie qui associe enracinements profonds et cultures superficielles.
Cards en dialogue (4)
Trophobiose (Chaboussou) : la plante nourrie attire son ravageur
Théorie de l'agronome Chaboussou : la santé d'une plante se lit dans sa composition chimique. Une plante gorgée de sucres libres et d'azote soluble attire et nourrit insectes et maladies ; une plante en équilibre leur devient invisible. La forme de l'azote — ammoniac ou nitrate — pilote cette signature. Renversement : on ne soigne pas la plante contre le ravageur, on nourrit sa physiologie. Pont entre fertilisation, immunité et lien sol-plante. Prudence : c'est une théorie féconde, mais son niveau de preuve est inférieur aux mécanismes validés par les pairs — à citer comme théorie, non comme fait établi.
Science
Doctrine de Chaboussou : la santé d'une plante se lit dans sa composition biochimique. Un végétal gorgé de solutés libres (acides aminés, sucres réduits, azote soluble) attire et nourrit bioagresseurs et pathogènes ; un végétal en protéosynthèse équilibrée leur devient invisible. La forme d'azote (NH₄⁺/NO₃⁻) pilote cette signature via le partage protéosynthèse/solutés. Renversement fondamental : on ne soigne pas la plante contre le ravageur, on nourrit sa physiologie — le biocontrôle devient correction trophique. Pont historique entre fertilisation, immunité végétale et continuum sol-plante. Chaîne C19 : N soluble → attractivité ravageurs → AMR.
Statut doctrinal : théorie de vulgarisation FR (Chaboussou) — cadre heuristique fécond, niveau de preuve inférieur au mécanisme forme-spécifique évalué par les pairs porté par card #161 (Maywald 2022, Atanasov 2022, Frontini 2021). À citer comme théorie, non comme fait établi.
Cards en dialogue (5)
- Voir aussi (5)
-
- Continuum ami-ennemi microbien : plasticité rapide des statuts
- Immunité nutritionnelle : forme d'azote (NH₄⁺/NO₃⁻) → protéosynthèse → signalisation JA-SA
- Phytohormones : le langage moléculaire de la plante
- Croix redox : lire la santé végétale en diagonale (pe+pH)
- Séquence des formes d'azote : du nitrate à l'azote organique le long du gradient de carbone
IFT : Indice de Fréquence de Traitement : le compteur de dépendance chimique
C'est l'indice de fréquence de traitement : le nombre de doses de pesticides épandues par hectare et par an.
Il ne mesure ni les dégâts réels ni l'état de la vie du sol — seulement la pression exercée. Mais suivez sa courbe au fil d'une rotation : c'est le miroir le plus simple du sevrage d'un système envers la chimie.
Seul, il dit peu ; couplé aux indicateurs vivants — respiration du sol, faune — il prend tout son sens. Un chiffre à lire à côté de la vie qu'il pèse.
Science
L'indice de fréquence de traitement (IFT) exprime le nombre moyen de doses de référence de pesticides appliquées par hectare et par an. Indicateur réglementaire français de la dépendance chimique des systèmes de culture, porté par le plan Écophyto et la statistique agricole Agreste, il a été appliqué à l'intensité d'usage des pesticides sur colza d'hiver à Fénay (Dessaint et al., 2014). Il ne mesure ni l'impact écotoxicologique réel des traitements ni l'état du vivant du sol : son évolution à l'échelle d'une rotation demeure l'indicateur indirect le plus simple de la dépressurisation chimique d'un système. En viticulture, la base de données Agrosyst, qui compile les performances de systèmes français engagés depuis dix ans dans une réduction des pesticides, enregistre une baisse de 34 % sans corrélation significative avec le rendement (Fouillet et al., 2024). Des scénarios agroécologiques co-construits avec les viticulteurs évaluent la performance de systèmes réduisant la dépendance aux pesticides en s'appuyant sur la biodiversité et les régulations biologiques (Aouadi et al., 2021). Les champs sans pesticides en travail du sol réduit abritent des densités élevées de carabes et d'araignées hivernants et constituent un habitat-source, tandis que les bandes fleuries adjacentes servent rarement d'habitat d'hivernage préférentiel (Bannwart et al., 2026). L'IFT reste à coupler systématiquement avec les diagnostics biologiques — respiration du sol, faune — qui mesurent l'état du sol vivant, pas seulement la pression chimique exercée dessus.
Cards en dialogue (2)
Conductivité hydraulique / loi de Darcy : la vitesse de l'eau, attribut biologique du sol
Et celle-ci ne dépend pas que de la texture — le sable laisse passer, l'argile retient — elle dépend surtout des pores que la vie a creusés.
C'est là que le sol se lit : la compaction écrase ces pores et fait s'effondrer la circulation ; une argile dispersée par trop de sodium se referme. À l'inverse, les racines vivantes et les galeries de vers de terre rouvrent les chemins de l'eau.
Mesurer la vitesse de l'eau dans un sol, ce n'est donc pas seulement de la physique : c'est interroger la santé du vivant qui l'habite.
Science
Le flux d'eau dans un sol poreux suit la loi de Darcy, Q = K·A·ΔΨ/L : la conductivité hydraulique K dépend de la texture et de la porosité fonctionnelle — biopores, agrégats stables. La gestion du sol et le climat modulent la conductivité à saturation (Blanchy et al., 2023). K est la variable d'effondrement : la sodicité disperse les argiles, la compaction écrase la macroporosité. La présence de sodium réduit la conductivité hydraulique à saturation de 43,62 % à conductivité électrique constante, réduction atténuée quand le potassium remplace le sodium (Yan et al., 2023) ; l'irrigation par eaux usées traitées peut dégrader durablement la structure, l'hystérésis révélant un risque pouvant atteindre 50 % là où les modèles classiques n'en prédisent aucun (Kramer et al., 2022). La compaction homogénéise les pores et réduit l'eau disponible, les sols sableux subissant un effondrement des macropores plus marqué que les sols fins riches en carbone organique (Talat et al., 2025). K est aussi la variable de restauration : racines vivantes, galeries de lombriciens, stabilité structurale. L'expérience WormEx I a montré que biopores et trous de vers modifient les lois constitutives de l'eau du sol (Pezzotti et al., 2020). Le champignon mycorhizien arbusculaire modifie rétention d'eau et conductivité hydraulique selon la texture, drainant les limons et stockant l'eau dans les sables prompts à la dessiccation (Pauwels et al., 2023). La vitesse de l'eau dans le profil est donc un attribut biologique autant que physique : mesurer K, c'est interroger la vie du sol.
Cards en dialogue (3)
Formes d'humus (Mull, Moder, Mor) : gradation classique, relue par le paradigme de la nécromasse
C'est la base des « formes d'humus », qui classent le sol selon la vitesse de son cycle biologique.
Trois pôles se détachent. Le mull : la litière est incorporée rapidement par les vers de terre, le sol est riche et actif. Le moder : la décomposition ralentit, une couche organique distincte s'installe. Le mor : la litière s'accumule sans se décomposer, l'acidité freine la vie.
La science moderne a relu cette échelle : ce qu'on appelait « humus stable » n'est pas une molécule qui dure, mais une fabrication continue — nécromasse microbienne et complexes organo-minéraux. Les formes d'humus restent un outil de terrain précieux : elles racontent l'état de la pompe biologique.
Science
La pédologie classique décrit un continuum de formes d'humus, signature lisible au pied de l'arbre de la vitesse du cycle biologique : le Mull, où la litière est intégrée rapidement sous une activité biologique intense et forme un horizon structural ; le Moder, où la fragmentation est lente et ménage un horizon organique distinct ; le Mor, humus brut à accumulation acidifiante et activité freinée. Cette gradation est formalisée par une classification morpho-fonctionnelle européenne des formes d'humus (Zanella et al., 2011), et la référence francophone en décrit la diversité (Jabiol et al., 1995). Le dépassement moderne reformule la nature de la « matière humique » : le paradigme des substances humiques, matériaux extraits par les alcalis et supposés néoformés aux propriétés distinctes, est contesté depuis près de 180 ans, l'extraction alcaline étant incapable de distinguer l'histoire chimique des composés (Kleber et Lehmann, 2019). À ce paradigme succède un modèle de continuum du sol, où la matière organique est formée d'un continuum de fragments de toutes tailles, rejoignant des propositions antérieures, jusqu'à la description de Waksman en 1936 (Baveye et Wander, 2019). La matière organique du sol n'est donc pas une molécule persistante mais une matière hétérogène, dont la structure supramoléculaire reformule la chimie des substances humiques (Piccolo, 2002). Les formes d'humus restent un diagnostic de terrain, relues comme des états de la pompe biologique plutôt que comme des substances.
Cards en dialogue (3)
Aquaponie sur sable (iAVs) : le lit de sable comme sol
C'est le principe de l'aquaponie sur sable, qui élève poissons et légumes en circuit fermé dans un seul bac, sans filtre séparé. L'eau sale du bassin traverse le sable, où des bactéries la transforment en engrais pour les plantes, avant de revenir propre aux poissons. Résultat : 2 à 3 fois moins d'eau qu'une culture en pleine terre.
La limite : tout n'y est pas gratuit. Le calcium et le potassium manquent souvent, surtout quand les poissons grandissent moins vite — il faut les apporter. L'idée de fond reste forte : le sable joue ici le rôle d'interface vivante que le sol joue en plein champ, en reliant l'animal, l'eau et la plante.
Science
L'aquaponie sur sable (iAVs, Mark McMurtry, NCSU 1987-1997) traite l'effluent piscicole dans des lits de sable plantés qui assurent seuls les trois fonctions d'un sol :
- filtre mécanique ;
- biofiltre nitrifiant ;
- support racinaire.
Pas de biofiltre séparé.
Efficience hydrique : 2,37 à 3,47 fois celle de la culture au sol (McMurtry et al., 1997) ; les grands ratios biofiltre/bassin (jusqu'à ~2,25:1 — McMurtry & Sanders 1990) améliorent l'eau, la croissance du poisson et le FCR.
Limites documentées (défis des systèmes : Yep & Zheng, 2019) :
- calcium limitant ;
- potassium déficitaire quand la croissance piscicole ralentit.
L'autonomie nutritionnelle n'est pas complète.
Validations modernes : eaux dessalées et saumâtres (Sewilam et al., 2022 ; Kimera et al., 2023 ; Nair et al., 2024).
Lecture : le lit de sable est l'interface physique-biologique que le sol vivant joue en plein champ ; la boucle poisson → effluent → sable → plante est l'analogue aquatique de la boucle rumen → déjection → sol (chaîne C43).
Cards en dialogue (5)
L'holobionte ingénieur de sa niche : le vivant installe ses conditions
Le riz en sol inondé fabrique sa propre zone oxygénée autour de ses racines, grâce à des canaux internes et une fuite d'oxygène ; les croûtes biologiques du désert fixent carbone et azote sur sable nu et amorcent la formation d'un sol ; un arbre devient l'îlot fertile de son propre sous-bois. L'habitat favorable n'est donc pas une donnée du milieu, mais une production de l'holobionte — la plante et ses microbes réunis. Ce cadre unifie les cas limites : rizière noyée, croûte désertique, résidu minier, roche profonde. Le vivant installe lui-même ses conditions d'existence.
Science
L'holobionte renverse la lecture adaptative : le vivant n'attend pas que son milieu devienne vivable, il le rend vivable. La niche n'est pas une donnée du milieu mais une production du couple plante-microbiome — extension du concept d'ingénieur de l'écosystème aux associations symbiotiques. Le riz en sol noyé l'illustre : l'aérenchyme ménage une voie interne de faible résistance pour le transport des gaz vers les racines et la rhizosphère, tandis qu'une barrière imperméable à la perte radiale d'oxygène concentre la diffusion vers l'apex racinaire (Colmer, 2003). Cette perte radiale d'oxygène oxygène transitoirement la rhizosphère, oxyde le fer ferreux et fournit l'accepteur d'électrons de bactéries microaérophiles oxydant le fer, formant une plaque ferrique racinaire (Maisch et al., 2019). Les croûtes biologiques des déserts, dont une synthèse de référence documente la structure et les fonctions (Belnap et Lange, 2003), contribuent aux cycles globaux du carbone et de l'azote (Elbert et al., 2012) ; dans les croûtes de l'Utah, la fixation d'azote par cyanolichens et cyanobactéries en fait la principale source d'azote de ces écosystèmes (Belnap, 2002). Ces croûtes, menacées par le changement global, pourraient perdre de 25 à 40 % de leur couverture d'ici 2070 (Rodriguez-Caballero et al., 2018). L'arbre devient l'îlot de fertilité de son propre sous-bois. Ce cadre fédère les cas limites — rizière inondée, croûte biologique, résidu minier, roche profonde — et se prolonge vers les milieux minéraux extrêmes.
Cards en dialogue (6)
Riz noyé : la racine fabrique sa microzone oxydée (ROL, plaque ferrique)
Ses racines sont creusées de canaux qui acheminent l'oxygène depuis les feuilles, et une partie de cet air s'échappe autour de la racine.
Résultat : un halo oxydé dans un sol sans oxygène. Le fer et le manganèse toxiques rouillent alors en une plaque qui protège la racine, et des bactéries amies s'installent dans ce microclimat respirable. La plante ajuste même le robinet selon ses besoins.
Cette racine, c'est l'image d'un être vivant qui sculpte son propre milieu plutôt que de le subir. La gestion de l'eau en rizière revient à piloter cette mécanique d'ingénieur.
Science
Dans un sol saturé et anoxique, la racine de riz n'est pas une victime du redox : elle en devient l'architecte. L'aérenchyme — ce tissu à larges espaces gazeux — conduit l'oxygène des feuilles vers les racines ; une fraction s'échappe radialement hors de la racine (la perte radiale d'oxygène, ROL), et la rhizosphère devient une microzone oxydée au sein d'un milieu réduit. La porosité racinaire peut atteindre 55 % chez certaines espèces de zones humides, la diffusion assurant ce transport interne (Colmer, 2003). Résultat en cascade : l'oxydation du fer ferreux toxique en plaque ferrique tapissant la surface racinaire ; la création de gradients opposés d'oxygène et de fer ferreux qui ouvrent des niches aux bactéries microaérophiles fer-oxydantes — l'oxygène perdu fournissant l'accepteur d'électrons de ces microorganismes (Maisch et al., 2019) ; et une barrière à la perte radiale d'oxygène, inductible, qui arbitre entre l'aération interne et la perte d'oxygène (Colmer, 2003). Elle répond même à de faibles concentrations d'acides organiques issus de la fermentation anaérobie : ils augmentent l'expression de gènes de biosynthèse de la subérine, avec un effet nul (acétique, butyrique) ou léger (propionique, hexanoïque) sur l'élongation racinaire (Colmer et al., 2019). La gestion de l'eau en rizière pilote ce mécanisme jusqu'à l'accumulation du cadmium dans le grain (Li et al., 2022) : l'assèchement alterné réduit l'arsenic mais peut, selon son intensité et son moment, accroître le cadmium (Carrijo et al., 2022). Cas fondateur de l'holobionte ingénieur de sa niche redox.
Cards en dialogue (3)
Biosphère profonde : Desulforudis audaxviator, la vie habite la roche
Cette biosphère profonde représente une masse de carbone de l'ordre de quelques dizaines de milliards de tonnes. Cas extrême : Desulforudis audaxviator, un écosystème réduit à une seule espèce, à près de trois kilomètres de profondeur, alimenté par l'hydrogène produit par la radioactivité naturelle de la roche, et quasi inchangé depuis des centaines de millions d'années. Ces microbes se fixent sur des minéraux précis qu'ils choisissent : la vie habite et travaille même le minéral le plus hostile, grâce aux métabolismes hydrogène-fer-soufre hérités du monde ancien.
Science
À plusieurs kilomètres de profondeur, dans la roche fracturée, une biosphère microbienne continentale demeure : de l'ordre de 23 à 31 Pg de carbone (Magnabosco et al., 2018), une révision à la baisse par rapport aux 350-550 Pg que l'estimation historique attribuait à l'ensemble des procaryotes (Whitman et al., 1998). Cas extrême : Candidatus Desulforudis audaxviator, bactérie sulfate-réductrice, chimioautotrophe et thermophile qui compose à elle seule plus de 99,9 % des microorganismes d'une fracture à 2,8 km de profondeur, capable d'une vie indépendante en isolation de longue durée de la photosphère (Chivian et al., 2008) — un écosystème dont la composante biologique tient presque entière dans un seul génome. Des génomes issus d'Afrique, d'Amérique du Nord et d'Eurasie partagent plus de 99,2 % d'identité nucléotidique, signe d'une stase évolutive remontant potentiellement à la fragmentation de la Pangée (Becraft et al., 2021). Les biofilms litho-hébergés ne se répartissent pas au hasard : ils se concentrent sur des minéraux électivement choisis, sources d'énergie et de biomasse (Casar et al., 2021). La vie habite et travaille ainsi le minéral le plus invivable, au sein de métabolismes mêlant hydrogène, fer et soufre — ce que la biosphère archéenne, peut-être oxydante en profondeur et réductrice en surface, préfigurait déjà (Walker, 1987). À distinguer de l'hypothèse d'une origine de la vie en subsurface, non datée.
Cards en dialogue (3)
Eucalyptus × Pisolithus : la vie outrepasse la chimie du résidu minier
Le champignon Pisolithus, qui s'enroule autour des racines de l'arbre, piège l'aluminium toxique dans ses parois, le neutralise grâce à des acides organiques, et fournit à l'arbre azote, phosphore et autres minéraux. Prudence : ces résultats sont démontrés sur de jeunes plants inoculés, et dépendent fortement de l'origine du champignon — issu des mines, non de la forêt. Le passage d'une installation pionnière à la construction d'un vrai premier sol reste à établir. Mais l'idée clé tient : la viabilité n'est pas une étiquette chimique fixe, elle se construit par association.
Science
Cas phare « invivable sur le papier » : l'eucalyptus associé à l'ectomycorhize Pisolithus s'installe sur des résidus miniers acides à aluminium toxique — la zone que le diagramme pH déclare morte. Mécanismes : séquestration de l'Al dans les parois fongiques, chélation par acides organiques de faible poids moléculaire, fourniture N/P/Ca/Mg/K à l'hôte (Egerton-Warburton, 2015 ; Aggangan et al., 1996, 1998). Le tri s'étend à d'autres substrats miniers : compartimentation pariétale du Cd chez le peuplier réhabilité d'un parc à résidus miniers (Xiao et al., 2023). caveat : démontré sur semis inoculés, fortement écotype-dépendant (Pisolithus d'origine minière, pas forestier). Illustre la clé de voûte « la viabilité n'est pas une étiquette chimique fixe » — le basculement vers une construction de proto-sol reste à établir.
Cards en dialogue (3)
Métabolisme sociétal : régimes minier vs circulaire
Regarder l'agriculture à travers cette lentille révèle deux régimes opposés.
Le régime « minier » puise en ligne droite : fossiles, intrants de synthèse, sol exploité comme une ressource, déchets non recyclés. Le régime « circulaire » referme les boucles : fixation biologique de l'azote, résidus recyclés, sol vivant qui régénère sa fertilité.
Cette grille relie deux phénomènes distincts : la dépendance aux esclaves énergétiques et la chute du rendement énergétique de l'agriculture sont deux faces d'un même déséquilibre entre ce qu'on injecte et ce que l'écosystème fournit. Lire une transition, c'est suivre un changement de régime métabolique.
Science
Le métabolisme sociétal compte les flux de matière et d'énergie qu'une société prélève, transforme, consomme et rejette dans son environnement. Transposée aux systèmes agraires, cette lentille révèle deux régimes opposés : le régime minier — extraction linéaire (fossiles, intrants, sol-ressource exploité, déchets non bouclés) — et le régime circulaire — flux refermés — le socle « métabolisme sociétal » est ancré (Fischer-Kowalski & Haberl 2007) : fixation biologique, recyclage des résidus, sol vivant régénérant sa fertilité. Elle quantifie ainsi la dépendance aux esclaves énergétiques et l'érosion de l'EROI comme deux faces d'un même déséquilibre entre intrants et services écosystémiques. Usage : lire une transition non pas technique par technique, mais comme un changement de régime métabolique.
Cards en dialogue (6)
Bilan CH₄ des sols agricoles : puits menacé
Des bactéries présentes dans les sols bien aérés capturent le méthane de l'air et le transforment, faisant du sol un puits de ce gaz à effet de serre. Ce service précieux est fragile : le labour casse les galeries qui amènent l'air et le méthane à ces bactéries, le tassement crée des zones privées d'air, et certains engrais azotés les intoxiquent. Les rizières font exception : toujours inondées, elles sont au contraire de grosses productrices de méthane, que l'on peut limiter en alternant drainage et inondation. Les sols non labourés gardent ainsi un avantage souvent oublié : ils continuent de capter le méthane.
Science
Le bilan méthane (CH₄) des sols agricoles dépend de la balance entre deux processus microbiens antagonistes : la méthanogenèse (production de CH₄ par les archées méthanogènes en conditions anaérobies) et la méthanotrophie (oxydation du CH₄ en CO₂ par les bactéries méthanotrophes en conditions aérobies). Un sol bien aéré et structurellement sain est un puits net de méthane : les méthanotrophes captent le CH₄ atmosphérique et le convertissent en biomasse.
Ce service écosystémique est menacé par les pratiques agricoles intensives :
- Le labour détruit la macroporosité qui canalise la diffusion du CH₄ et de l'O₂ vers les méthanotrophes.
- Le tassement (passage d'engins, pâturage intensif) crée des zones anaérobies locales qui basculent le sol de puits à source.
- La fertilisation azotée (NH₄⁺) inhibe compétitivement la monooxygénase méthane (MMO) — l'enzyme clé de la méthanotrophie — car l'ammonium est un substrat analogue.
Les sols de rizière sont une exception structurelle : inondés en permanence, ils sont des sources majeures de CH₄ (la riziculture émet ~30 Tg CH₄/an, soit ~10 % des émissions mondiales de méthane — Saunois et al., 2020). La mitigation passe par le drainage intermittent (AWD — Alternate Wetting and Drying), qui restaure les phases aérobies et stimule la méthanotrophie, tout en économisant l'eau.
En agriculture de conservation, le co-bénéfice méthane est réel : les sols non labourés maintiennent leur fonction de puits de CH₄, un avantage souvent négligé dans les bilans carbone qui se concentrent sur le CO₂ et le N₂O.
Cards en dialogue (3)
Haies et bocage : infrastructure multifonctionnelle du sol vivant
Son influence déborde largement son ombre.
Sous la haie, le sol n'est jamais labouré, la litière le nourrit, les vers le creusent : un puits de carbone et une éponge hydrique. Il abrite même une communauté de champignons du sol plus riche et différente de celle de la culture voisine.
La haie est un réservoir de vie qui pourrait réensemencer le champ — encore une hypothèse — et son effet de lisière n'est pas automatiquement bénéfique. Prudence : une infrastructure précieuse, pas une baguette magique.
Science
Là où un linéaire d'arbres traverse la parcelle, le sol change de régime : sous la haie, le non-travail, la litière et la drilosphère façonnent un profil singulier — puits de carbone, éponge hydrique, mosaïque redox — sans équivalent dans la culture voisine. Cette infrastructure vivante régule d'un même geste le vent, l'eau et la vie, et son influence déborde largement son emprise au sol. Son rôle le plus discret est pourtant souterrain : les sols de haies hébergent une communauté de champignons mycorhiziens arbusculaires plus riche (31 % de richesse spécifique en plus) et de composition distincte de celle des cultures adjacentes (González et al., 2022), au sein d'un profil que la parcelle labourée ne reproduit pas (Holden et al., 2019). La lisière y joue le rôle d'un réservoir d'inoculum : le stock est documenté, la rétention d'arbres rémanents maintenant le potentiel mycorhizien des sites perturbés (Simard et al., 2021) ; le flux de recolonisation vers les cultures voisines, lui, reste une hypothèse — établi pour les ectomycorhizes à proximité des lisières forestières (Grove et al., 2019), il n'est pas démontré pour les réseaux arbusculaires des parcelles. Prudence enfin : l'effet lisière n'est pas mécaniquement bénéfique et peut dégrader les mutualismes ou favoriser des pathogènes sous stress (Boeraeve et al., 2019 ; Tatsumi et al., 2023).
Cards en dialogue (5)
- Illustre
Croûtes biologiques du sol (biocrusts) : la peau vivante du sol pionnier
Les croûtes biologiques du sol sont des communautés en strates qui colonisent roches et sols nus : cyanobactéries (micro-organismes capables de photosynthèse et de fixer l'azote de l'air, dont le genre Nostoc), lichens et mousses. Elles fixent le carbone et l'azote, attaquent chimiquement la roche et conditionnent les premières successions de la vie. Avant l'herbe, avant l'arbre, cette peau vivante prépare le terrain : c'est le premier relais de la formation d'un sol.
Science
Communauté pionnière en strates — cyanobactéries (dont Nostoc), lichens, mousses — qui colonise roches et sols nus : les croûtes biologiques du sol fixent carbone et azote et participent aux cycles mondiaux de ces deux éléments (Elbert et al., 2012). Dans les zones sèches de l'Utah, leur fixation d'azote atteint des taux qui en font la principale source d'azote de ces écosystèmes (Belnap, 2002). Leurs substances polymériques extracellulaires retiennent l'eau : le potentiel matriciel reste stable jusqu'à 20 % d'humidité résiduelle, contre 80 % sans ces exopolymères (Adessi et al., 2018). L'inoculation de cyanobactéries fixatrices d'azote, en particulier Nostoc commune, restaure ces fonctions : après trois mois, la couverture atteint 50 %, l'albédo diminue, carbone organique et azote total augmentent (Román et al., 2018). La multifonctionnalité du sol croît des croûtes algales aux lichens puis aux mousses, les plus corrélées à cette multifonctionnalité (Jiang et al., 2025). Une menace pèse sur elles : les projections couplées climat et usages des terres anticipent la perte de 25 à 40 % de leur couverture d'ici 2070 (Rodriguez-Caballero et al., 2018). Leur production en serre puis leur réintroduction au champ ouvrent une voie de restauration, non sans barrières d'établissement (Antoninka et al., 2016). Référence encyclopédique de ces couvertures pionnières (Belnap et Lange, 2003), la croûte initie l'altération biogéochimique et conditionne les successions primaires : premier relais pédogenétique du sol vivant.
Cards en dialogue (3)
Biais de sélection asymétrique : lire la littérature qui nous lit
C'est le biais de sélection asymétrique — choisir les études qui minimisent un effet, ou celles qui l'exagèrent, et laisser croire que « la science » a tranché.
Ce biais n'est pas forcément intentionnel : la recherche est inégalement financée, et tout lecteur, même de bonne foi, hérite de cette littérature orientée. L'histoire a montré que le doute peut aussi être fabriqué de façon organisée, comme pour le tabac ou le climat.
Le garde-fou est simple : exposer les deux versants du débat et nommer ses analogies. Citer, c'est choisir — autant le faire en connaissance de cause.
Science
Métapiège épistémique : mobiliser le versant de la littérature qui limite l'effet biologique (corrélation, faiblesse, lenteur) en escamotant le versant appliqué où les effets sont robustes — ou l'inverse. Citer n'est pas neutre : le choix des sources oriente la conclusion, et même le scepticisme le plus honnête hérite d'une littérature au financement asymétrique (Vanloqueren & Baret, 2009). L'agnotologie (Oreskes & Conway, 2010 — documentée pour le tabac et le climat, mobilisée par analogie) rappelle que la production organisée du doute est un phénomène réel. Garde-fou : exposer les deux versants du débat et nommer les analogies. Cas fondateur : le débat biodiversité-fonctionnement des écosystèmes (BEF), dont la littérature critique documente les cadrages asymétriques selon le versant mobilisé.
Cards en dialogue (2)
Le bon comparateur : multifonctionnalité vs monocritère
Jugez sur un seul critère, et les mélanges de cultures semblent inutiles ; sur plusieurs, ils deviennent évidents.
Si l'on ne regarde que le rendement, un mélange diffère à peine de la meilleure culture seule — ce qui plaide en sa faveur, puisqu'il l'égale tout en rendant d'autres services. Il faut juger l'ensemble : biomasse, azote, mauvaises herbes, assurance.
Au fond, ce qui fait l'effet d'un couvert, c'est sa biomasse, pas la diversité pour elle-même. La règle : pas de comparateur universel et arbitraire — on compare toujours ce qui est comparable, dans son contexte.
Science
La conclusion d'une comparaison se joue d'abord dans le choix du comparateur. Opposer « le meilleur mélange à la meilleure monoculture » sur un seul critère n'est pas la question agricole : une revue systématique de 243 comparaisons montre que, sur des critères pris isolément, 88 % trouvent mélange et monoculture similaires, 10 % donnent l'avantage à la monoculture et 2 % seulement au mélange (Florence et McGuire, 2020). Cette similarité monocritère devient un argument pour les mélanges dès lors qu'on compare à coût égal sur la multifonctionnalité — biomasse, azote, maîtrise des adventices, assurance biologique. Le mécanisme actif des couverts est la biomasse, pas la diversité pour elle-même : les services des couverts sont liés à la biomasse et à l'azote accumulés (Thapa et al., 2018) ; l'exception légumineuse-graminée sur sol pauvre en azote mise à part, la composition du mélange dépend des conditions — azote minéral élevé et degrés-jours élevés favorisent les espèces compétitives, un sol pauvre les légumineuses, une saison courte la céréale (Baraibar et al., 2020). Concevoir le mélange, c'est doser complémentarité et compétition entre espèces (Kümmerer et al., 2025). Même garde-fou que la calibration régionale du diagnostic (SMAF/CASH) : pas de comparateur universel arbitraire. Le raisonnement vaut au-delà des couverts : il s'applique au biochar, dont les effets sur la productivité des cultures se mesurent par méta-analyse quantitative (Jeffery et al., 2011).
Cards en dialogue (3)
- Donne naissance à
Stabilité contre rendement moyen : évaluer sous climat non stationnaire
Chaque degré de réchauffement réduit les rendements des grandes cultures, et la croissance agricole ralentit déjà. Le budget carbone restant pour limiter le réchauffement à 1,5 °C est mince, de l'ordre de quelques années d'émissions mondiales. La variabilité devient donc le critère : la diversité augmente la résistance de la production aux extrêmes climatiques, et la diversification stabilise la production sans compromettre le rendement moyen. L'ajustement biologique fin devient l'essentiel quand les grands facteurs dérivent. Ce constat ne réfute pas l'argument du rendement moyen : il le date.
Science
Sous climat non stationnaire, le rendement moyen est une statistique d'un climat qui n'existe plus : chaque degré réduit les rendements des grandes cultures (Zhao et al., 2017) et la croissance de productivité agricole ralentit déjà sous climat anthropique (Ortiz-Bobea et al., 2021) — le budget restant pour 1,5 °C est de l'ordre de six ans d'émissions (Lamboll et al., 2023, contrainte avec incertitudes). La variance devient le critère : la diversité augmente la résistance de la production aux extrêmes climatiques (Isbell et al., 2015) et la diversification stabilise sans compromettre le rendement moyen (Tamburini et al., 2020). L'ajustement fin biologique devient l'essentiel quand les grands facteurs eux-mêmes dérivent. NB : ce retournement ne réfute pas l'argument du rendement moyen — il le date.
Cards en dialogue (4)
Voie du shikimate et EPSPS : inhibition par le glyphosate et conséquences microbiennes
C'est trompeur : la voie chimique qu'il bloque existe aussi chez une grande partie des bactéries et des champignons du sol. En la bloquant, il prive ces microbes d'éléments dont ils ont besoin, perturbant les communautés du sol et les alliances entre plantes et micro-organismes. Son résidu principal persiste longtemps dans les sols et les eaux, prolongeant l'exposition bien après l'application, et ses effets touchent aussi les vers de terre, dont l'activité et la reproduction ralentissent. L'idée que le glyphosate agirait surtout par la nutrition de la plante reste une extrapolation non tranchée ; ici, c'est son effet direct sur les microbes qui est en jeu.
Science
Le glyphosate inhibe l'EPSPS (5-énolpyruvylshikimate-3-phosphate synthase), enzyme pivot de la voie du shikimate — absente des mammifères mais présente chez une large part des bactéries et des champignons : la spécificité « végétale » de l'herbicide est une illusion taxonomique (Duke & Powles, 2008). Le blocage de la shikimate prive les microbes de leurs acides aminés aromatiques et, en aval, des sidérophores : la conséquence est une perturbation des communautés microbiennes du sol et des symbioses qui en dépendent (van Bruggen et al., 2021). Le métabolite AMPA, persistant et ubiquiste dans les sols et les eaux (Battaglin et al., 2014), prolonge l'exposition bien au-delà de la pulvérisation ; les effets non-cibles s'étendent à la faune (activité et reproduction des lombriciens réduites, Gaupp-Berghausen et al., 2015). NB : l'application de la trophobiose (statut nutritionnel de la plante) au glyphosate reste une extrapolation non tranchée — cette card porte le mécanisme direct, pas la doctrine Chaboussou.
Cards en dialogue (3)
Généalogie du terme agriculture régénératrice : de Bablot (1877) au greenwashing
« Régénérer » la terre n'est donc pas une invention récente, mais un retour de vocabulaire, qui circule chez nous un siècle et demi avant les mouvements actuels.
Le terme réapparaît plus tard par l'anglophonie, et son retour divise : sommet de l'agroécologie ou simple opération de communication ? Pendant ce temps, ses principes se formalisent : couvrir le sol, réduire le labour, diversifier.
La leçon de méthode : les pratiques précèdent les étiquettes. Chaque génération redécouvre la régénération, et l'oubli de la précédente lui donne un air de nouveauté. Il vaut mieux juger les pratiques et dater les marques.
Science
En 1877 paraît à Châlons-sur-Marne « L'agriculture régénératrice de la France », mémoire couronné par le Comice central de la Marne et réédité dès la même année : le terme circule dans les sociétés d'agriculture françaises un siècle et demi avant les mouvements contemporains. L'attestation est un fait de titre — le contenu du mémoire n'est pas dépouillé ici — mais elle suffit à instruire la méfiance générationnelle : « régénérer » la terre n'est pas une invention récente, c'est un retour de vocabulaire. Réimporté bien plus tard par l'anglophonie (« regenerative agriculture » — Johnston, 2025), le terme divise à son retour : summum de l'agroécologie ou greenwashing ? (Duru et al., 2022) — pendant que ses principes se formalisent en France (Coulardeau et al., 2022). La généalogie donne au débat sa profondeur : chaque génération redécouvre la régénération, et l'oubli de la précédente laisse croire à la nouveauté. Leçon de méthode : les principes génératifs précèdent les labels — juger les pratiques, dater les marques.
Cards en dialogue (6)
- Voir aussi (6)
-
- Révolution verte : Haber-Bosch, blé nain et modernisation agricole
- Technologies paysannes ancestrales : fermentation, couplage et aménagements
- Biais de sélection asymétrique : lire la littérature qui nous lit
- Effondrement agraire : trajectoire cumulative, pas événement
- L'agriculture permanente (King) : 4 000 ans de boucle fermée
- Le marché de la résilience : produits miracles, gourous du sans-arrosage et promesse sans preuve
Croix redox : lire la santé végétale en diagonale (pe+pH)
On peut lire sa santé en croisant ces deux axes, en diagonale.
Quand cet équilibre dérive vers l'excès d'oxydation, la plante se met en état de stress, et une hypothèse — encore non validée — suggère que la porte s'ouvrirait à des parasites différents selon l'organe touché : feuilles, sève ou racines n'attireraient pas les mêmes agresseurs. Une plante en équilibre attire moins les ravageurs — c'est la vieille idée que la santé prime sur le traitement.
Le sol, lui, est la réserve d'électrons qui alimente cette pile : un sol riche en carbone vivant aide la plante à tenir sa tension. L'image de la pile à hydrogène reste une métaphore pour penser, pas un mécanisme mesuré.
Science
Lecture synthétique de la santé végétale sur l'axe composite pe+pH (terme #4476 ; conversion : pe ≈ Eh/59 mV — le diagramme Eh-pH et les domaines de Pourbaix sont portés par la card du diagramme Eh-pH). Cadre hussonien : les plantes fonctionnent dans un spectre interne Eh-pH propre (Husson, 2012), et les attaques de bioagresseurs se corrèlent aux variations spatio-temporelles de Eh-pH chez la plante (Husson et al., 2021). Ordres de grandeur illustratifs issus de la vulgate du réseau : plante en équilibre ≈ pe+pH 7-9 ; stress oxydatif au-delà de ~9-10 — valeurs indicatives, non des seuils. Hypothèse structurante (non validée expérimentalement à l'échelle des compartiments) : l'oxydation différentielle des compartiments ouvrirait la porte à des classes de bioagresseurs distinctes — apoplaste oxydé → champignons (exemple cité par Husson : Botrytis, pH 5-6 / Eh 500-550 mV) ; xylème oxydé → bactéries et oomycètes ; phloème oxydé → virus ; plante globalement oxydée → insectes. Cette cartographie correlative converge avec la trophobiose : une plante en homéostasie redox « nourrie » attire moins. Image pédagogique (métaphore, pas mécanisme) : la plante comme pile à hydrogène — le carbone est le compartiment batterie, le sol le réservoir d'électrons. Fiabilité des mesures et hiérarchie des instruments : voir la fiche des sondes terrain, §6.5.
Cards en dialogue (7)
- Donne naissance à
- Voir aussi (5)
-
- Redox central : gradients, microzones et 'redox ladder'
- Diagnostic plante : pH et EC de sève foliaire/pétiolaire comme signatures nutritionnelles précoces
- Triangle des maladies végétales × extrêmes climatiques : cadre diagnostique renouvelé
- Trophobiose (Chaboussou) : la plante nourrie attire son ravageur
- La MOS comme géo-batterie : le carbone, stock d'électrons
Seuils de fonctionnement du carbone : le sol non-répondant et la concentration
En dessous de certains seuils, l'érosion s'emballe et le sol ne répond plus aux engrais — on perd de l'argent à fertiliser. Au-dessus, la production peut connaître un second souffle. Ces repères varient selon le sol, surtout sa teneur en argile : plus il est argileux, plus il lui faut de carbone pour bien se structurer. Le moteur profond est une boucle vertueuse : plus un sol a de carbone, plus il peut en produire et en retenir. D'où la règle pratique : quand la matière organique manque, mieux vaut la concentrer sur une partie du champ — comme le font le zaï ou les demi-lunes — plutôt que la saupoudrer partout.
Science
Le stock de carbone ne varie pas linéairement : il existe des ordres de grandeur hussoniens, contextuels, où le fonctionnement même du sol bascule. Autour de ~2 % de carbone, l'érosion change de régime (limitée au-dessus, processus massifs en dessous). Autour de ~3 %, le seuil de réponse aux engrais : en dessous, « sols non-répondants » — on perd de l'argent à fertiliser (étude Kenya, hautes altitudes, sols andosol-like — non isolée en base : ordre de grandeur non transposable tel quel en climat tempéré). Vers 4,5-5 %, une seconde accélération de la production possible. Règle d'ordre de grandeur liée à l'argile : ~10 % d'argile appellent ~1 % de carbone pour une structure correcte — la grille pédagogique complète vit dans le terme ratio MO/argile (repères, pas des lois ; seuils contextuels ancrés sur le cadre Husson 2021 — chiffres exacts non isolés en base). Le mécanisme profond est une rétroaction positive rare en nature : plus il y a de carbone, plus le sol peut en produire et en retenir — car l'énergie solaire est gratuite et la photosynthèse alimente le compte. D'où la conséquence pratique : quand la biomasse est rare, la concentrer (poquets, rangs, parties de parcelle) pour franchir localement les seuils — la logique du zaï sahélien et des demi-lunes, qui remontent d'abord la droite du gradient puis s'étendent. Saupoudrer, c'est rester à gauche.
Cards en dialogue (4)
Séquence des formes d'azote : du nitrate à l'azote organique le long du gradient de carbone
Sur un sol pauvre et très oxygéné, c'est le nitrate qui domine ; sur un sol riche en matière organique, la forme liée au vivant reprend la main, et les plantes, si on leur laisse le choix, la préfèrent. Chaque forme a son prix : certaines acidifient ou alcalinisent la racine, d'autres coûtent de l'eau ou demandent plus d'effort.
La forme qui domine se lit dans le couple acidité-oxygène, et se pilote par le carbone. L'excès d'azote minéral soluble nourrit les parasites ; l'azote lié au vivant nourrit la plante sans la déséquilibrer.
Science
Le long du gradient de carbone du sol, la forme d'azote disponible — et donc la physiologie de la plante — change de régime : sur sols pauvres et oxydés, le nitrate domine ; en approchant les seuils de fonctionnement, l'ammonium prend le relais ; sur sols riches en carbone et biologiquement actifs, l'azote organique (acides aminés, sucres aminés) devient dominant — et la plante, si on lui donne le choix des trois formes, préfère l'organique. Chaque forme a son coût physiologique. Le nitrate : la racine s'alcalinise (échange anionique contre OH⁻), la respiration racinaire s'élève nettement (coût d'absorption et de réduction) pour absorber et réduire (huit électrons par atome d'azote pour remonter vers l'ammonium), et l'efficience de l'eau peut fortement chuter sous stress hydrique. L'ammonium : acidification marquée de la rhizosphère, antagonisme avec calcium et magnésium, risque de toxicité aluminique, et faible mobilité qui force une prospection racinaire coûteuse — souvent sous-traitée aux mycorhizes. La forme organique, équilibrée, économise ces corrections. La forme dominante se lit dans le couple pH-redox (elle prolonge la croix redox) et dans le partage carbone énergie/carbone structure : c'est la discussion par le carbone. Cette séquence rejoint la trophobiose — l'azote minéral soluble en excès nourrit les bioagresseurs, l'azote organique nourrit la plante sans la déséquilibrer.
Cards en dialogue (8)
- Voir aussi (5)
-
- Azote (formes, pertes) → stœchiométrie → stratégies microbiennes
- ‘Faim d’azote’ après apport carboné (immobilisation)
- Immunité nutritionnelle : forme d'azote (NH₄⁺/NO₃⁻) → protéosynthèse → signalisation JA-SA
- Trophobiose (Chaboussou) : la plante nourrie attire son ravageur
- Les 4 stades culturaux à dominance hormonale
Le saule (Salix), arbre-ressource multi-services
Il rend service partout, surtout sur les terres pauvres.
À croissance rapide, il donne du bois en cycles courts, un fourrage de secours en période sèche, et une traditionnelle « eau de saule » qui aide les boutures à s'enraciner. Il sait même assainir des sols pollués ou salés et filtrer les nitrates qui fuient des champs.
C'est un festin de printemps pour les pollinisateurs, et sa taille en têtards lui assure longévité et récolte sans abattage. Une seule réserve : il exporte beaucoup de nutriments, qu'il faut lui rendre. Un levier pour les terres marginales, pas un remplaçant de la forêt.
Science
Essence pionnière à croissance rapide, le saule (Salix sp.) fonctionne comme un arbre-ressource multi-services : biomasse lignocellulosique en taillis à courte rotation (cycles 2-5 ans) sur sols marginaux ou contaminés, fourrage de sécheresse riche en protéines et en tanins condensés (contournement ruminal, réduction possible du méthane entérique — effet débattu), pharmacopée pastorale (salicine, auto-médication animale — hypothèse débattue), source traditionnelle de phytohormones pour le bouturage (« eau de saule », efficacité variable selon protocoles), biostimulants phénoliques, phytoremédiation (cadmium, HAP, terres salines), biofiltration des nitrates en aval des parcelles, ressource printanière majeure pour les pollinisateurs, et double mycorhization possible (certaines espèces forment les deux types, souvent en compétition). Son trognage (arbres têtards) procure longévité, habitats cavicoles et biomasse récoltable sans abattage — le « sang de la trogne », terreau interne à microbiome riche, reste à documenter. Les TCR exportent massivement potassium et nutriments : la fertilisation de retour conditionne la durabilité des rendements. Levier multi-services des terres marginales, sans substituer les espèces climaciques dans la succession.
Cards en dialogue (5)
Conservation-transfert : stocker sans perte, laisser le sol transformer
Le bokashi propose l'inverse : conserver la matière presque intacte par fermentation, puis laisser le sol finir le travail.
Le secret tient au confinement : tasser fort, bâcher hermétiquement, laisser fermenter à froid, comme un ensilage. Mal conduit, le tas chauffe, dérive et rejette même du méthane. Bien conduit, il perd beaucoup moins de masse et émet moins de gaz nocifs qu'un compost classique.
Cette logique « conserver puis transférer » stocke l'énergie et offre du temps : on épand quand cela arrange. Une pratique encore peu étudiée en Europe, où l'acidité de la fermentation fait office de garde-fou contre les émissions.
Science
Thèse portée par le courant bokashi : ne pas traiter la matière hors sol pour la stabiliser (compostage oxydatif : le carbone part en CO₂ et la masse fond de moitié), mais la conserver par fermentation microaérobie — tassage, froid (≈35 °C), ferments lactiques, logique d'ensilage — pour la transférer au sol, qui achève la transformation dans son tampon redox et minéral.
Le geste décisif est le confinement homogène : tassage intensif + bâche. Toute la masse doit être soumise au même milieu (anoxie homogène, humidité maîtrisée) — c'est exactement le standard ensilage : fosses couvertes de film (Andreev et al., 2016), tas tassés et bâchés dans la pratique allemande ; en variante fermière sans bâche, une couche de finition carbonée épaisse (20-35 cm de fines) joue le rôle de filtre et de scelleau (retour d'expérience fermier, sources praticiennes). Un confinement partiel fait dériver le processus : l'essai suédois de carbonisation microbienne (Stephan, 2022) — tas non confinés sur dalle, fissures de surface, eau stagnante — a monté à 50-61 °C au lieu des ≤ 40 °C de la spec, devenu semi-thermophile, et émis davantage de méthane que l'andain témoin : la performance GES appartient à l'exécution (tassage + bâche + humidité), pas à la technique seule. À l'inverse, le même essai mesure un N₂O trois fois inférieur à l'andain et un puits de méthane au champ après épandage.
Instances : bokashi inoculé (lignée Higa/Agriton), compost Walter Witte fermier sans inoculum (Witte, agronome allemand ; réseaux FR/DE : pertes déclarées ~10 % vs >50 % en andains retournés, volume épandable ~triplé), lacto-fermentation en fosses (Andreev et al., 2016). Pertes d'azote réduites à la source : la fermentation préalable abaisse les flux d'ammoniac de 80-86 % (Gebiola et al., 2023, autre contexte). La lecture énergétique accompagne la thèse : la matière conservée est un stock d'énergie chimique réintroduit dans le système sol-plante plutôt qu'oxydé en chemin ; le découplage temporel production→épandage est la valeur logistique — stocker sans perte redonne du temps et de la maîtrise. Frontière de recherche : pratiques « understudied in Europe » (Legrand et al., 2026) ; l'acidification lactique (pH < 4,2) reste le garde-fou contre la méthanogenèse.
Cards en dialogue (5)
- Voir aussi (5)
-
- Amendements organiques : compostage aérobie thermophile vs fermentations vs autres voies
- Fermentations appliquées : bokashi, EM, KNF, JADAM, LiFoFer
- Cycle de l'azote : fixation, minéralisation, nitrification, pertes
- Successions microbiennes de la fermentation lactique : continuum sol -> récipient -> tube digestif
- Méthanogenèse
Réparer la base : équilibrer le milieu, laisser le vivant se réguler
Idée proposée : la santé du système sol-plante-microbes serait gouvernée par l'équilibre chimique du milieu — proportions entre carbone, azote, phosphore, soufre et oligo-éléments — plus que par le volume d'intrants correctifs. Des carences silencieuses (cobalt, bore, manganèse, et le trio fer-molybdène-cobalt) produisent des symptômes attribués à tort aux ravageurs ou aux maladies, alors que la cause est une base minérale déséquilibrée qui entrave l'humus et la vie microbienne. Un système vivant à base saine se régule seul. Prudence : c'est un cadre d'interprétation, pas une loi — les équilibres varient avec l'argile, l'acidité et l'oxygène.
Science
Une grille de lecture proposée : la santé du système sol-plante-microbiome serait gouvernée par l'équilibre stoechiométrique du milieu (ratios C:N:P:S, disponibilité des micronutriments), plus que par le volume d'intrants correctifs. Les carences silencieuses — cobalt, bore, manganèse, triade Fe/Mo/Co — s'expriment en symptômes attribués à tort à des agents (ravageurs, maladies, « mauvais sol »), alors que la cause est une base minérale déséquilibrée qui contraint l'humification (stoechiométrie CNPS) et la vie microbienne (écologie stoechiométrique). Le paradigme correctif intervient à grands coups de remèdes (NPK, pesticides, inoculants supposés) au lieu de réparer la base : l'auto-régulation suppressive, la capture indigène et la mémoire du sol montrent qu'un système vivant à la base saine se régule seul — l'arbre qui pousse à côté du champ sans besoin de personne en est la preuve quotidienne. Le principe est un cadre d'interprétation, pas une loi : les équilibres optimaux varient avec l'argile, le pH et le redox.
Cards en dialogue (2)
La MOS comme géo-batterie : le carbone, stock d'électrons
La matière organique stocke et redistribue des électrons, et ce flux d'énergie rythme la vie du sol au gré de l'oxygène.
Quand l'oxygène revient après une phase d'asphyxie, la batterie se recharge et le carbone se minéralise d'un coup — l'absence d'air prépare la grande combustion du retour d'air. C'est ce qui explique que l'acidité d'un sol soit une conséquence de sa vie biologique, pas une cause.
Conséquence pratique : on ne corrige pas l'acidité d'abord, on nourrit d'abord la matière organique et la biologie, et le pH suit. La batterie est une image pour penser, pas une mesure.
Science
Le carbone organique du sol n'est pas seulement un stock d'énergie : la matière organique agit aussi comme donneur et tampon d'électrons, une « géo-batterie » redox qui couple la minéralisation aux oscillations d'oxygénation. Le potentiel redox (Eh) et le pH gouvernent conjointement la solubilité des nutriments et le fonctionnement des systèmes sol-plante-microorganismes (Husson, 2012 ; Husson, 2023). Conséquence : le pH est une variable pilotée — le produit des dynamiques redox et microbiennes — plutôt qu'un pilote ; le gérer indirectement par la matière organique et la biologie inverse la logique corrective, et c'est l'homéostasie Eh-pH, entretenue par les plantes et les microorganismes, qui conditionne la santé du sol et, selon l'hypothèse des auteurs, sa suppressivité (Husson et al., 2021). Le priming fer-carbone illustre le mécanisme : les exsudats racinaires libèrent le carbone protégé par les minéraux (Keiluweit et al., 2015), et lors des oscillations redox, les phases de fer actives entraînent des transformations abiotiques du carbone organique — formation de radicaux hydroxyle et oxydation qui libèrent une part du carbone lié, davantage que ne le font les processus microbiens (Chen et al., 2021). L'anoxie dissout ainsi les associations fer-carbone et prépare une minéralisation au retour de l'oxygène : les oscillations redox commandent le devenir du carbone. Cadre d'interprétation — la géo-batterie est une métaphore de lecture, pas un mécanisme mesuré en tant que tel.
Cards en dialogue (6)
- Voir aussi (6)
-
- rH2, capacité redox et poising capacity : au-delà de l'Eh ponctuel
- Soil Continuum Model (SCM) : fin du paradigme de l'humification, necromasse microbienne et fractions fonctionnelles MAOM/POM
- Fenton-like et radicaux hydroxyles dans les sols : oxydation abiotique de la MAOM et flux CO₂ non microbien
- Mémoire redox et noyaux de réduction persistants : la dimension temporelle des microzones anoxiques
- Effet d’amorçage
- Croix redox : lire la santé végétale en diagonale (pe+pH)
Effondrement agraire : trajectoire cumulative, pas événement
Surexploitation, monoculture, sol poussé à bout : le même mécanisme d'épuisement progressif se répète depuis les premières agricultures.
Et on ne peut pas le réduire à une catastrophe naturelle — le Dust Bowl états-unien se lit mieux comme une crise sociale et économique, construite par les pratiques, que comme un simple aléa du climat.
L'histoire des effondrements devient alors une preuve par anticipation : ce qui a épuisé les sols hier est exactement ce que l'agriculture régénératrice cherche à inverser. Le passé agraire est l'argumentaire du changement de paradigme.
Science
Les effondrements agraires ne sont pas des événements mais des trajectoires cumulatives : depuis la préhistoire, le changement d'usage des terres et l'intensification des pratiques sont étroitement liés à une érosion accrue, et des changements de gestion sous un même usage peuvent faire basculer des systèmes durables vers des systèmes fortement dégradés (Vanwalleghem et al., 2017). Le Dust Bowl se lit ainsi comme une crise sociale et économique — construite par les pratiques, la surexploitation et la monoculture — plutôt que comme une catastrophe géomorphologique « naturelle » (Vanwalleghem et al., 2017), rappelant que les sols restent une frontière de la science (Baveye et al., 2011). L'histoire longue des agricultures du monde, du néolithique à la crise contemporaine, en porte l'argumentaire (Mazoyer et Roudart, 1997). La récupération, elle, exige du temps : aux États-Unis, les politiques de conservation des sols instaurées dans les années 1930 n'ont révélé leurs effets sur la restauration des prairies et l'érosion que progressivement, avec des effets persistants à long terme (Howlader, 2023). L'histoire des effondrements devient ainsi une preuve par anticipation de la nécessité de l'agriculture régénératrice : le passé agraire est l'argumentaire du changement de paradigme. Lecture historique, qualitative et cumulative — la causalité exacte des cas cités, dont l'Île de Pâques, débattue, reste à étayer source par source.
Cards en dialogue (5)
- Voir aussi (5)
-
- Histoire des sols : désastres et réussites (Croissant fertile, Nil, Terra Preta, Milpa)
- Cycle 5 étapes d'érosion civilisationnelle (200-2000 ans)
- Révolution verte : Haber-Bosch, blé nain et modernisation agricole
- Métabolisme sociétal : régimes minier vs circulaire
- Généalogie du terme agriculture régénératrice : de Bablot (1877) au greenwashing
L'agriculture permanente (King) : 4 000 ans de boucle fermée
Son récit, publié en 1911, parle d'« agriculture permanente » — une fertilité qu'il chiffre lui-même à quatre millénaires.
Le secret n'a rien d'exotique : tout ce que la culture retire au sol lui est restitué. Les nutriments, les matières organiques, les déchets — rien ne sort de la boucle. Une fertilité entretenue par recyclage, sans apport venu de l'extérieur.
Cette filière éclaire la suite : les fermentations et la gestion des matières organiques n'ont pas d'inventeur isolé, elles sont l'héritage d'un continuum millénaire. L'agriculture régénératrice y trouve sa préhistoire.
Science
L'« agriculture permanente » de l'Asie de l'Est, documentée par F.H. King après sa tournée de terrain de 1909 dans Farmers of Forty Centuries, ouvrage posthume paru en 1911 (King, 1911) : une fertilité maintenue quatre millénaires (chiffre de King lui-même) par recyclage fermé des nutriments (restituer au sol tout ce que la culture en retire) — preuve historique que la boucle fermée soutient la fertilité sur le temps long sans intrants exogènes. Dans cette lignée, Teruo Higa apparaît comme l'héritier d'un continuum asiatique millénaire de fermentations et de gestion des matières organiques, plus que comme un inventeur ex nihilo ; les lactofermentations se lisent comme la préhistoire de l'agriculture régénératrice. Lecture historique d'un précédent documenté (King, 1911) — les chiffres de rendements et durées relèvent de l'ouvrage et de sa réception, à vérifier pour un usage précis.
Cards en dialogue (5)
- Voir aussi (5)
-
- Fermentations appliquées : bokashi, EM, KNF, JADAM, LiFoFer
- Révolution verte : Haber-Bosch, blé nain et modernisation agricole
- Technologies paysannes ancestrales : fermentation, couplage et aménagements
- Généalogie du terme agriculture régénératrice : de Bablot (1877) au greenwashing
- Antifragilité des préparations microbiennes paysannes
Les 4 stades culturaux à dominance hormonale
Cette grille propose d'accompagner chaque stade avec les bons microbes, plutôt qu'un engrais uniforme.
L'idée directrice : les minéraux sans biologie donnent de la force brute ; la biologie sans minéraux donne un signal sans exécution — il faut les deux. Ce qui suppose de nourrir la plante au bon moment, pas seulement de la gaver.
Prudence : ces fenêtres hormonales restent un cadre de lecture, pas un protocole calibré. Une façon de penser le rythme de la plante, à ajuster au champ.
Science
La croissance végétale se déroule en quatre stades culturaux à dominance hormonale — cytokinines/auxines, auxines/gibbérellines, éthylène régulé, puis ABA — chacun pouvant être soutenu par des préparations microbiennes ciblées (biofertilisants × régulateurs) plutôt que par une fertilisation uniforme. La formulation doctrinale qui accompagne cette grille : « des minéraux sans biologie = de la force ; de la biologie sans minéraux = un signal sans exécution » — la complémentarité microbe-minéral comme principe, et la préférence de l'azote aminé aux pics de nitrates comme rupture assumée avec la fertilisation nitrique conventionnelle. Grille d'interprétation issue de la littérature d'orchestration microbienne ; les fenêtres hormonales précises restent un cadre de lecture, pas un protocole calibré.
Cards en dialogue (5)
- Voir aussi (5)
-
- Immunité nutritionnelle : forme d'azote (NH₄⁺/NO₃⁻) → protéosynthèse → signalisation JA-SA
- Crosstalk JA-SA : le dispatcher hormonal de la défense végétale
- Phytohormones : le langage moléculaire de la plante
- Séquence des formes d'azote : du nitrate à l'azote organique le long du gradient de carbone
- Réparer la base : équilibrer le milieu, laisser le vivant se réguler
Le cycle endophytique : une continuité, pas un compartiment
L'intérieur de la plante n'est pas un compartiment à part, mais la suite du sol.
Ce cycle fait de ces hôtes intérieurs une plateforme d'intrants vivants : fertilisants, stimulants, protections — de quoi remplacer une part des produits de synthèse.
Une idée va plus loin : la plante minerait ses propres symbiotes pour se nourrir — la rhizophagie. Séduisante, mais encore débattue et généralisée à toutes les plantes sans consensus. Une hypothèse de lecture, pas un fait établi.
Science
Le cycle fonctionnel endophytique boucle la rhizosphère et l'intérieur de la plante en un seul système : les microorganismes pénètrent, se transmettent (graines, descendants), et la plante « mine » les nutriments de ses propres symbiontes — la rhizophagie (digestion d'endophytes) comme charnière entre compartiments plutôt que frontière. L'endosphère n'est pas un compartiment isolé : c'est la continuité du continuum sol-plante. Les endophytes forment une plateforme d'intrants multiples (biofertilisants, biostimulants, biopesticides, bioprotection) substituable aux intrants de synthèse. Prudence : la rhizophagie est présentée dans certaines sources comme une « découverte majeure de la dernière décennie » mais reste débattue et généralisée à toutes les plantes sans consensus — hypothèse de lecture, pas fait établi.
Cards en dialogue (5)
Le résistome du sol : la RAM est indigène, l'agriculture la sélectionne
L'agriculture ne la crée pas — elle la sélectionne.
Dès la plantule, la plante recrute ses protecteurs mais, chemin faisant, trie aussi un lot de gènes de résistance. Les amendements et les pratiques pèsent sur ce tri.
Une piste de recherche relie ces échanges aux conditions d'oxygène du sol — mais les observations se contredisent encore, front de science à ne pas figer. Le constat, lui, est net : le sol, la plante et l'humain partagent le même résistome en circulation.
Science
La résistance aux antibiotiques n'est pas une invention moderne : le sol est un « continent invisible » de la résistance antimicrobienne, un réservoir ancien — la résistance précède largement l'usage clinique des antibiotiques (D'Costa et al., 2011), et des gènes de résistance existent aussi dans les environnements naturels non agricoles et non cliniques (Allen et al., 2010). L'agriculture ne crée pas la résistance : elle la sélectionne et la propage. Le sol est un habitat hétérogène qui favorise le transfert horizontal de gènes entre bactéries (Nesme et Simonet, 2014) ; les pratiques agricoles pèsent sur cette sélection, et le risque porté par les gènes de résistance du sol s'accroît au fil du temps, avec une connectivité croissante avec le résistome humain (Zhao et al., 2025). Les métaux lourds y ajoutent une co-sélection ancienne : ils ont façonné l'évolution microbienne bien avant les antibiotiques et entretiennent, avec les microplastiques, des mécanismes de résistance croisée et des foyers de transfert de gènes (Balta et al., 2025). L'axe redox ouvre une piste de recherche : les conditions d'oxydoréduction et le transfert de plasmides seraient couplés — mais les observations restent explicitement contradictoires dans la littérature ; front de recherche, à ne pas figer en consensus. Lecture One Health : le sol, la plante et l'humain partagent le même résistome circulant.
Cards en dialogue (5)
- Voir aussi (5)
Procédés doux et matrices complexes : la synergie plutôt que l'isolat
Le procédé doux garde tout ; le procédé dur détruit.
Une fermentation tranquille à température ambiante, où le sucre attire les substances hors des tissus sans chauffer, préserve toute la richesse — acides aminés, oligo-éléments, métabolites des microbes. La chaleur industrielle, elle, disloque cette complexité.
L'argument est que le tout vaut mieux que n'importe quel fragment isolé — un effet de synergie. Mais la supériorité sur les produits industriels repose encore sur des généralités, débattues : à confirmer étude par étude.
Science
La douceur du procédé et la synergie de matrice priment sur la fraction isolée. Les préparations fermentaires douces — jus de plantes fermentés au sucre, engrais foliaires fermentés issus de ressources végétales ou animales, pratiques de l'agriculture naturelle coréenne — conservent la complexité de la matrice : nutriments, micronutriments et composés de croissance libérés par la fermentation (Rahman et Ahmad, 2025 ; Cho et Koyama, 1997 ; Ebel et Kissmann, 2019). Le sucre concentré agit comme opérateur biotechnologique doux : la pression osmotique extrait sans chauffer. Les microorganismes indigènes, consortiums natifs des sols et des surfaces, sont collectés, cultivés et réintroduits pour la fertilité et la dégradation des déchets (Kumar et Gopal, 2015), une pratique répandue mais encore peu étayée scientifiquement (Park et DuPonte, 2008), certains isolats montrant en laboratoire une forte activité antagoniste contre des champignons pathogènes (Xa et Nghĩa, 2020). La synergie des composants — l'effet matrice — est l'argument de supériorité des procédés doux face aux extractions industrielles et aux isolats purifiés, mais elle est fragilisée par le découplage observé entre activité microbienne et action des métabolites : un extrait acellulaire peut reproduire à lui seul les effets d'un consortium vivant (Stojkov et al., 2025). La bioactivité supérieure des procédés doux reste donc argumentée sur des généralisations — débattue, à confirmer étude par étude.
Cards en dialogue (5)
- Voir aussi (5)
-
- Biostimulation indigène KNF/JADAM et thermodynamique redox
- Fermentations appliquées : bokashi, EM, KNF, JADAM, LiFoFer
- Chélation organique et biostimulation foliaire : acides aminés, hydrolysats et mobilité des oligoéléments
- Doctrines fermentaires KNF vs JADAM : matrice des oppositions de Cho Han Kyu et Cho Youngsang
- Antifragilité des préparations microbiennes paysannes
Antifragilité des préparations microbiennes paysannes
Un même geste, décliné selon les cultures.
L'idée qui les relie est celle de l'antifragilité : non pas résister au stress, mais sortir renforcé de l'épreuve. C'est une métaphore pour penser, pas une science établie.
Une nuance de taille : l'effet viendrait surtout des nutriments dissous et des métabolites produits par la fermentation, plus que des microbes vivants eux-mêmes — le liquide filtré suffit parfois à stimuler. Quant aux performances chiffrées, elles restent à auditer une à une.
Science
Les préparations microbiennes paysannes (EM japonais, MM andins, LiFoFer français, JMS/IMO coréens) relèvent d'une même logique : la capture de vitalité du milieu — une « universalité » déclinée culturellement. Leur lecture robustesse→antifragilité (Taleb — cadre conceptuel, métaphore non scientifique) déplace l'enjeu : non pas résister aux stress, mais faire sortir le système renforcé de l'épreuve. Le découplage métabolites/vivants nuance le mécanisme : l'effet agronomique tiendrait surtout aux nutriments solubilisés et métabolites produits par la fermentation, plus qu'aux microorganismes vivants eux-mêmes (appuyé par Stojkov et al., 2025 : l'extrait cell-free d'EM suffit à biostimuler). Cadre de lecture ; les performances chiffrées (ex. NPK −50 %, essai unique) restent à auditer cas par cas.
Cards en dialogue (7)
- Voir aussi (6)
-
- Fermentations appliquées : bokashi, EM, KNF, JADAM, LiFoFer
- Capture indigène vs inoculum standardisé : doctrine de l'origine du consortium microbien
- Doctrines fermentaires KNF vs JADAM : matrice des oppositions de Cho Han Kyu et Cho Youngsang
- Autonomie et low-tech : réduire la dépendance aux intrants et technologies externes
- L'agriculture permanente (King) : 4 000 ans de boucle fermée
- Procédés doux et matrices complexes : la synergie plutôt que l'isolat
Mégabassines et réserves de substitution : anatomie d'un conflit
D'un côté, sécuriser la ressource en gardant l'eau quand elle tombe ; de l'autre, réduire la demande plutôt que d'étendre le stockage. Entre les deux, le droit a tranché plusieurs fois : des projets annulés parce qu'ils prélevaient plus que ce que la rivière peut supporter, des autorisations retoquées pour des volumes trop généreux.
Le conflit ne porte donc pas seulement sur un chiffre, mais sur la façon de décider qui a droit à l'eau — et sur ce que l'on accepte de laisser au milieu aquatique. Les retenues ne sont ni neutres pour le climat, ni la seule réponse possible à la sécheresse.
Science
En France, la conflictualité sur l'eau s'est cristallisée sur les retenues de substitution, qui stockent l'eau hivernale pour l'irrigation estivale. Le Marais poitevin en offre l'analyse la plus documentée : leur trajectoire conflictuelle résulte d'un enchaînement de choix techniques, de dispositifs de gestion et de rapports de force, non d'un simple désaccord sur un volume (Carrausse, 2022). La qualification juridique a été construite par le juge administratif, qui a annulé plusieurs projets au motif de volumes prélevés incompatibles avec une gestion équilibrée de la ressource, dont quinze retenues en Charente, Vienne et Deux-Sèvres et l'autorisation unique de prélèvement de Nouvelle-Aquitaine (Grimonprez, 2022 ; Grimonprez, 2023) — bilan établi par l'analyse juridique des décisions, non par une revue scientifique. Les mobilisations de Sainte-Soline ont donné à ce conflit une visibilité nationale, analysées comme un rassemblement situé autour d'un problème public (Cazaux, 2025 ; Texier, 2026 ; Baudry, 2026). Les petites retenues se multiplient en contexte de sécheresse et leur impact cumulé sur les débits et le partage de l'eau est mesurable (Lemaire et al., 2023) ; les petits plans d'eau artificiels émettent en outre du méthane (Grinham et al., 2018). Le débat oppose deux philosophies de l'adaptation — stocker l'offre ou réduire la demande — dont aucune ne se réduit à un ouvrage (Habets & Demorcy, 2024).
Cards en dialogue (4)
Accaparement de l'eau : réallocations mondiales
À l'échelle mondiale, l'eau d'irrigation s'achète avec la terre, et sa valeur reste mal évaluée. Les nappes profondes, qui ne se rechargent pas à l'échelle humaine, sont pompées plus vite qu'elles ne se reconstituent. Ce qui circule ainsi, ce ne sont pas seulement des litres : c'est aussi la possibilité pour un territoire de se nourrir.
D'où l'idée que l'eau ne serait pas une marchandise comme les autres, mais un bien commun dont l'accès se règle à plusieurs niveaux.
Science
La concurrence pour l'eau ne se joue pas seulement entre usages locaux : elle se joue aussi sur les marchés mondiaux. L'accaparement de l'eau — l'appropriation de l'eau d'irrigation couplée à l'accaparement des terres — a été formalisé comme un syndrome à la fois biophysique et éthique, dans des régions où la production alimentaire est contrainte par la disponibilité en eau (Dell'Angelo et al., 2018). La valeur économique de l'eau en agriculture a été cartographiée à l'échelle mondiale, ce qui pose la question des mécanismes d'allocation et du prix implicite de la ressource (D'Odorico et al., 2020). Les villes, en croissance, déplacent des volumes d'eau rurale vers l'urbain : une revue systématique documente ces réallocations et l'économie politique de la concurrence entre agriculture et villes (Garrick et al., 2019). Les nappes profondes non renouvelables sont surexploitées dans les régions semi-arides, où l'irrigation dépend de plus en plus des prélèvements souterrains (Bierkens & Wada, 2019). C'est pourquoi la gestion de l'eau a été proposée comme un bien commun, dont les règles d'accès se pensent à plusieurs échelles (Bouguerra, 2003 ; Defeuilley, 2023). Ces dynamiques dépassent le cadre de la ferme : elles mettent en jeu la souveraineté alimentaire, la justice sociale et la durabilité des aquifères.
Cards en dialogue (1)
Le marché de la résilience : produits miracles, gourous du sans-arrosage et promesse sans preuve
D'un côté, des produits — biostimulants (qui stimulent la plante), extraits d'algues, champignons du sol vendus comme inoculants. Les mécanismes existent, mais les preuves viennent surtout du laboratoire ou de la serre ; au champ, les résultats sont incertains. De l'autre, l'idée de cultiver sans arroser : la culture sèche existe, mais elle repose sur des conditions précises — sol profond, pluie suffisante, variétés adaptées — et ne pardonne pas un épisode extrême.
Le point commun, c'est le glissement : un résultat « dans certaines conditions » devient une garantie générale. Demander les conditions avant le produit, c'est déjà reprendre la main.
Science
Le mot résilience est devenu un argument de vente, sur deux marchés distincts : un secteur industriel — biostimulants, inoculants, mycorhizes contre la sécheresse — et un marché de discours, la posture agronomique du jardin censé pousser sans eau.
Côté produits, les extraits d'algues sont une opportunité commerciale (El Boukhari et al., 2020) ; les rhizobactéries promotrices de croissance comme les champignons mycorhiziens sont vendus comme inoculants de tolérance à la sécheresse (Basu et al., 2021 ; Abdalla et al., 2023). Le cadre réglementaire borne ce qui peut être revendiqué (Rouphael & Colla, 2020), pas l'efficacité au champ : l'essentiel des preuves vient d'essais contrôlés et des souches performantes en serre déçoivent au champ (de Vries et al., 2020 ; Basu et al., 2021).
Côté gourous, l'intuition légitime — un sol couvert retient l'eau — glisse vers l'idée d'une nature autosuffisante. Ce glissement n'est pas anodin : la cooptation narrative du vocabulaire de la résilience est déjà documentée pour l'agriculture dite régénérative, où le récit de restauration sert d'argument commercial (Bless et al., 2023 ; Wilson et al., 2024).
Le point commun : transformer une observation conditionnelle en promesse générale en effaçant la modalité qui porte l'information ; ce brouillage rejoint l'extractivisme vert, qui ouvre des marchés sous couvert de durabilité (Dunlap et al., 2024), et promettre une abondance sans réduire les prélèvements déplace le problème (Perrot et al., 2026).
Cards en dialogue (4)
PTGE : gouverner le partage de l'eau : du temps long à la négociation
Le principe est simple : réunir autour d'une même nappe ou d'une même rivière les agriculteurs, les collectivités et les usagers, et négocier un partage durable plutôt que de laisser chacun pomper. L'enjeu n'est pas seulement le volume disponible, mais la règle elle-même : qui la fixe, qui la respecte, et comment on la corrige quand le climat change.
Ces démarches avancent à des rythmes inégaux selon les territoires, et la négociation ne suffit pas toujours : elle doit s'appuyer sur des comptages, des diagnostics et des canaux qui redistribuent l'eau dans le temps.
Science
Le partage de l'eau n'est pas neuf : la géographie de l'irrigation collective et l'histoire du droit des cours d'eau montrent que les sociétés ont tôt institutionnalisé l'accès à l'eau (Brunhes, 1902 ; Jullien, 1868 ; Godoffre, 1867). En France, les projets de territoire pour la gestion de l'eau (PTGE) visent un accord d'acteurs à l'échelle d'un bassin. Instaurés en 2019, ils visent l'équilibre quantitatif entre besoins et ressources dans une logique de sobriété ; en mai 2026, la France compte 124 PTGE couvrant 21 % du territoire (David et al., 2026 ; Loubier et al., 2021). Les instruments économiques — redevances, bonus-malus, régulations décentralisées — ont été testés, avec des réceptions contrastées (Figureau et al., 2014). La gestion volumétrique par comptage et quotas a été préférée à la création de ressource dans certains bassins (Loubier et al., 2008), tandis que la gouvernance inclusive de l'eau agricole reste un chantier (Boche et al., 2021). Le diagnostic agraire nourrit les prospectives territoriales en éclairant les trajectoires des exploitations (Degroote et al., 2025) ; les canaux d'irrigation collectifs redistribuent l'eau dans le temps et l'espace et restent des outils d'ajustement (Aspe & Jacqué, 2023). L'eau y est pensée comme un bien commun (Bouguerra, 2003 ; Boussard & Bories, 2023 ; Blanchon, 2013), et réussir un partage ne dépend pas des seuls volumes disponibles : il dépend de la légitimité des règles et de la capacité à les ajuster (Mazeaud, 2011 ; Perrot et al., 2026).
Cards en dialogue (4)
Eutrophisation et zones mortes : du double effet azote-phosphore à l'hypoxie
En se décomposant, elles consomment l'oxygène de l'eau. Quand la chaleur s'installe et le débit baisse, l'eau se réchauffe et se renouvelle moins : elle capte moins d'oxygène, au moment où il en faudrait le plus. Les poissons étouffent, et des portions de cours d'eau deviennent des zones sans vie.
Ce n'est pas qu'une affaire de pollution rejetée : c'est aussi une affaire de quantité d'eau. À débit faible, la même charge polluante devient plus concentrée et plus dangereuse. Protéger la qualité de l'eau, c'est donc aussi protéger les débits qui la maintiennent vivante.
Science
L'eutrophisation naît d'un déséquilibre : l'enrichissement des eaux en azote et phosphore dérègle leur biologie et déclenche des proliférations algales dont la décomposition consomme l'oxygène. Le paradigme du phosphore limitant, longtemps dominant pour les eaux douces, est discuté : son réexamen invite à considérer la co-limitation azote-phosphore, que les modèles à un seul nutriment ignorent — sans en faire une généralité (Sterner, 2008). Dans les bassins agricoles, lixiviation des nitrates et érosion apportent les deux éléments, tandis que les apports diffus, les rejets urbains et la modification du régime hydrologique se combinent (Akhtar et al., 2021).
Le déficit quantitatif referme le cercle. À l'étiage, l'eau se réchauffe, se renouvelle moins et se réoxygène moins (Cacas & Dumont, 1985) ; rejets organiques et nutriments entretiennent alors une demande en oxygène, si bien que l'oxygène dissous peut devenir limitant pour la vie aquatique — sa restauration passe par une intervention active (Baldwin et al., 2022). La décomposition des proliférations consomme alors l'oxygène déjà raréfié, jusqu'à l'hypoxie — zones mortes et appauvrissement des biocénoses. La qualité du milieu dépend de la continuité du régime hydrologique et de la température autant que de la charge polluante (Walsh et al., 2016), et l'efficacité des pratiques varie selon les conditions hydroclimatiques : un même effort peut être efficace en année humide et rester insuffisant en année sèche (Canning, 2026).
Cards en dialogue (4)
L'héritage azoté : lixiviation des nitrates et pollution différée des nappes
Une partie reste dans le sol sous forme organique, puis se transforme lentement en nitrate : une forme très soluble, que le sol retient très peu. À chaque grosse pluie, l'eau qui s'infiltre l'emporte plus bas, sous les racines, jusqu'à la nappe. Le nitrate s'y accumule et y séjourne très longtemps — des décennies. C'est ce qu'on appelle l'héritage : même si l'on arrête d'en apporter, l'eau continuera d'en recevoir pendant des années, et les nappes mettront du temps à se nettoyer. La pollution d'aujourd'hui est aussi celle d'hier. Réduire les apports est nécessaire, mais ne suffit pas : le sol et l'eau répondent avec un retard considérable.
Science
L'héritage azoté est le versant lent de la pollution de l'eau. Une partie importante de l'azote épandu n'est pas utilisée par la culture l'année où elle le reçoit : elle alimente un réservoir organique qui se minéralise et se lixivie progressivement (Anas et al., 2020). Les pluies intenses changent la destination de cet azote : elles l'entraînent vers les nappes et les cours d'eau. Couvrir les sols réduit la lixiviation des nitrates, mais peut augmenter la volatilisation ammoniacale et les émissions de protoxyde d'azote en conditions sèches : l'arbitrage entre pertes par l'eau et pertes par l'air dépend de l'état hydrique (Xia et al., 2018). À l'échelle globale, la fertilisation azotée reste une source majeure de protoxyde d'azote, puissant gaz à effet de serre dont les pics d'émission sont sensibles à l'humidité du sol (Tian et al., 2020).
Le nitrate entraîné s'accumule dans l'aquifère, où il séjourne des décennies : l'azote stocké dans les sols et les eaux souterraines superficielles continue d'alimenter la pollution des nappes après que les apports ont diminué, et l'amélioration de la qualité de l'eau est retardée d'autant (Basu et al., 2022). Réduire les doses aujourd'hui ne produira donc d'effet visible sur les nitrates qu'à horizon de générations. À l'étiage, un même flux polluant au débit réduit se concentre ; gestion qualitative et gestion quantitative doivent donc être traitées ensemble.
Cards en dialogue (6)
Sécheresse structurelle : de l'aléa au régime
Une part en est produite par nos décisions, l'état du sol module les dégâts.
Des épisodes plus rapides, combinés, volatils : des bascules brutales entre sécheresse et déluge. Le sol s'en souvient : l'effet hérité change la réponse à l'épisode suivant et la dégradation s'accumule d'une année sèche à l'autre. Les moyennes du passé ne décrivent plus le climat à venir — c'est la non-stationnarité — et la variance, l'écart entre les années, devient le critère.
La réponse n'est pas de prévoir mais de rendre le système résistant : un sol qui stocke l'eau, de la diversité — la résistance aux extrêmes est un constat d'écosystèmes, à étendre prudemment — et la diversification, qui tient le rendement moyen.
Science
La sécheresse cesse d'être un aléa qu'on anticipe par les seules séries historiques : elle devient un processus dont une part est produite par les décisions humaines, l'état du sol modulant l'ampleur des impacts (AghaKouchak et al., 2021 ; Vicente-Serrano et al., 2020). Le régime change de nature statistique — événements plus rapides (Yuan et al., 2023), plus composés (Tripathy et al., 2023 ; Barriopedro et al., 2023), plus volatils (Swain et al., 2025) — et la mémoire pluriannuelle des bassins versants rend chaque année sèche plus pénalisante que la précédente (Pelletier & Andréassian, 2020).
Ce régime s'inscrit dans les corps : le sol se souvient des sécheresses. Sous sécheresse, l'activité microbienne ne se contente pas de ralentir : elle se confine à quelques taxa distincts, tandis que la majorité des populations cesse de se diviser à des teneurs en eau encore supérieures aux seuils agronomiques classiques — la biologie décroche avant la plante (Metze et al., 2023). Les effets hérités modifient la réponse à l'épisode suivant et produisent une dégradation cumulée plutôt qu'une simple alternance (Metze et al., 2023 ; Ali et al., 2025) ; chaque averse teste l'infiltration sur un milieu que la phase sèche a pu rendre hydrophobe. La non-stationnarité ruine le raisonnement sur les moyennes : le rendement moyen devient la statistique d'un climat qui n'existe plus (Zhao et al., 2017 ; Ortiz-Bobea et al., 2021) et la variance devient le critère — la diversité augmente la résistance de la productivité des écosystèmes aux extrêmes (Isbell et al., 2015), et la diversification agricole augmente les services rendus sans compromettre le rendement moyen (Tamburini et al., 2020).
La sécheresse structurelle nomme ce retournement : non pas un accident à attendre, mais un régime — dont les mécanismes long terme (mémoires, héritages, boucles de rétroaction) appellent une réponse structurelle : résilience hydrique du sol, diversité, pilotage par la variance.
Cards en dialogue (5)
Lixiviation : le retournement d'un enjeu
Cinq siècles durant, on a craint d'y perdre une ressource. Dès 1525, Fitzherbert voit la pluie d'hiver « laver la terre » ; en 1860, Boussingault appelle l'eau de drainage la « véritable lessive du terrain ».
Vers 1900, l'azote est rare et compté : on l'enseigne à l'école primaire. Le nitrate (nitrate) est soluble, les eaux de pluie peuvent l'entraîner « dans les profondeurs du sol où ils sont perdus » (Barillot, 1896). D'où un code de bonnes pratiques, vers 1905, en six règles : sol couvert en hiver, pas d'engrais minéraux à l'automne, apports fractionnés au printemps suivant les besoins de la végétation.
Puis l'oubli : après 1918, l'azote fabriqué (procédé Haber-Bosch — Haber-Bosch process) devient bon marché. Un demi-siècle après, la pluie n'enlève plus une ressource mais emporte un polluant : les nitrates gagnent les nappes là où les prairies retournées pour le maïs laissent le sol nu l'hiver.
Le vieux code revient sous d'autres noms : CIPAN (nitrate catch crop), couvert végétal intermédiaire (cover crop), fractionnement. L'image à retenir : un sol nu en hiver laisse fuir ses nitrates ; un couvert qui prélève l'azote les retient dans l'écosystème.
Science
La lixiviation (lixiviation) est l'entraînement en profondeur des ions solubles par l'eau qui draine à travers le profil — lorsque la pluviométrie excède les prélèvements des plantes et l'évaporation, et qu'aucune racine ne reprend les nutriments pour les maintenir dans l'écosystème (Baize et Morlon, 2026). Les nitrates, peu retenus par le complexe d'échange, y sont les plus vulnérables.
1525 : la pluie d'hiver sur sol nu « lave la terre » (Fitzherbert, 1525) ; 1563 : les eaux emportent le salpêtre (Palissy, 1563) ; 1729 : labourer nu l'hiver, c'est « appauvrir notre terre » (Mackintosh, 1729) ; 1712-1759 : les sels nutritifs descendants s'imposent (Angran de Rueneuve, 1712 ; Quesnay, 1759) ; 1860 : l'eau de drainage d'un sol fumé, « véritable lessive du terrain » (Boussingault, 1860).
L'apogée : l'azote rare. Rothamsted chiffre les pertes des sols nus (Sabatier, 1890 ; Dehérain, 1892). Vers 1905, un code de bonnes pratiques fixe six règles (Morlon, 1998) : (1) sol couvert en hiver, cultures intermédiaires ; (2) pas d'engrais minéraux à l'automne ; (3) apports minéraux au printemps, fractionnés suivant les besoins de la végétation ; (4) fumure organique raisonnée sur une série d'années ; (5) sols filtrants et peu profonds, fumier à doses faibles mais fréquentes ; (6) récupérer les eaux de drainage nitratées pour irriguer les prairies. À l'école primaire, les nitrates solubles descendent « dans les profondeurs du sol où ils sont perdus », et il ne faut « qu'une petite quantité d'engrais à la fois » (Barillot, 1896). La Seine en emporte 19 000 t d'acide nitrique, plus du tiers des importations françaises de nitrate de soude (Barillot, 1896), épandu au printemps, jamais à l'automne (Dutilleul et Ramé, 1910).
L'oubli (1918-1960). La synthèse industrielle de l'ammoniac — Haber-Bosch (Haber-Bosch process), procédé Claude — rend l'azote bon marché : les recommandations sont « oubliées », et les stations agronomiques des compagnies de chemin de fer « se gardèrent de les diffuser » (Baize et Morlon, 2026).
Le retournement : ne plus polluer. Deux faits : la fertilisation « d'assurance » et le retournement des prairies pour le maïs — minéralisation brutale, sol nu en hiver. Là où ils coïncident, à la fin des années 1960, les nitrates des eaux d'alimentation flambent : l'étude de l'Yonne le documente (Chrétien et al., 1974 ; Morlon et al., 1998). Le savoir revient : Hénin (1980), Sebillotte (1992), directive nitrates de 1991. Le code de 1905 revient en CIPAN (nitrate catch crop) et fractionnement : les cultures intermédiaires multi-services — couvert végétal intermédiaire (cover crop) — réduisent les pertes jusqu'à 90 % face au sol nu (Constantin et al., 2017). Les pertes d'azote (NO3, NH3, N2O) : diagnostic au niveau du système de culture (Reau et al., 2015).
Le versant positif : la désalinisation (soil desalinization). L'eau d'irrigation laisse ses sels ; un lavage à l'eau douce désalinise — naturel en climat humide, artificiel (sur-irrigation et drainage) en zone aride, impossible dans les dépressions fermées, condamnées à la salinisation.
Lixiviation et lessivage : deux processus distincts. Lixiviation : les éléments solubles entraînés dissous (nitrates) ; lessivage (leaching) : les particules solides, argiles — d'où « illuviation d'argile » ou « argilluviation » pour lever l'ambiguïté (Baize et Morlon, 2026).